Polímeros Biológicos
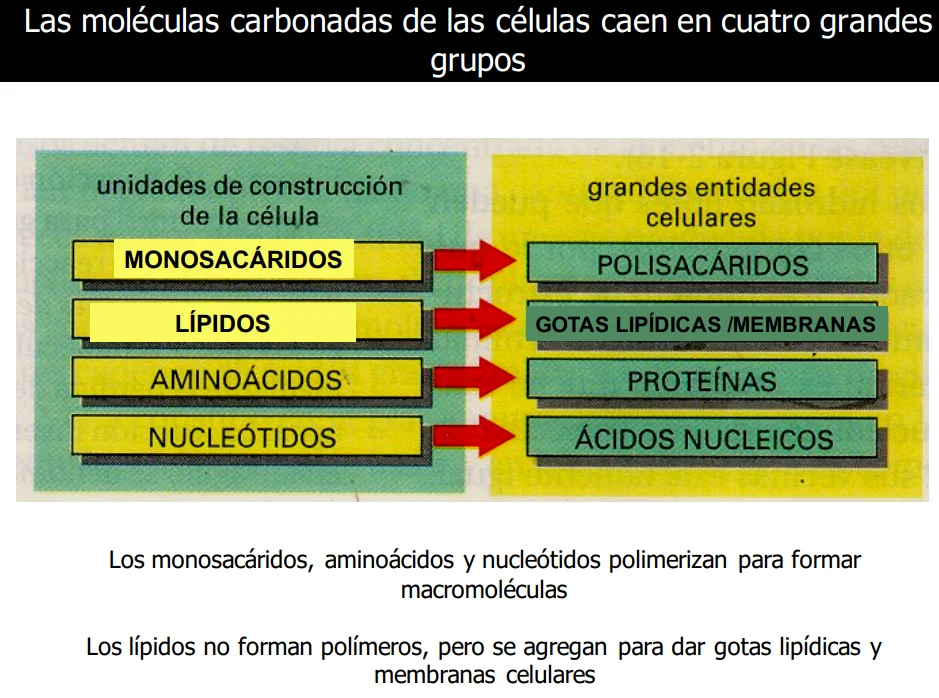
Azúcares, glúcidos y carbohidratos son sinónimos.
Tienen a los monosacáridos como unidad mínima.
Monosacáridos se componen de 1 Aldehido o Cetona(C=O) y 2 o+ Alcohol(C-OH) .
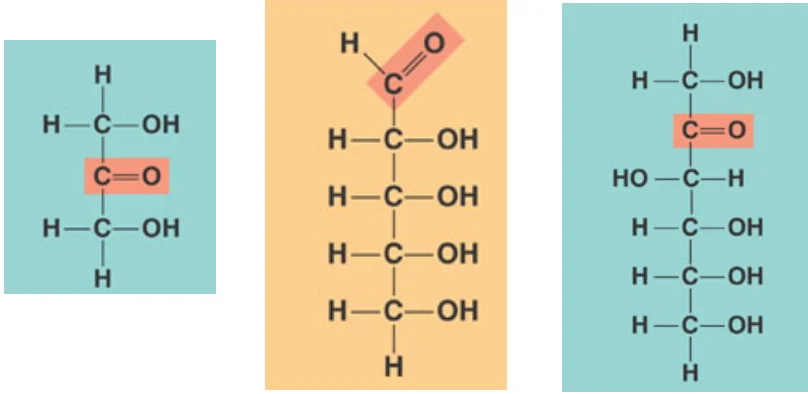
Son muy Polares. El Carbono con el anomérico es el Anomérico marcado en rojo arriba.
Si son de :
Aldehído son Aldosas (Se cuentan desde el Anomérico, y son reductoras.(Puede transformarse en ácido carboxílico.))
Cetona son Cetosas (Se cuentan desde el más cercano al Anomérico, no son reductoras.)
Tienden a existir en forma cíclica. El anomérico se distingue por estar unido a 2 O
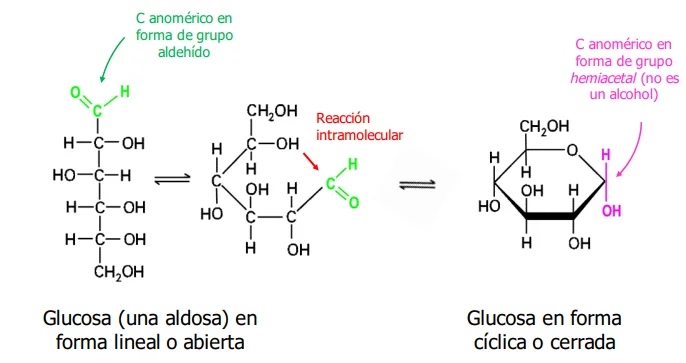
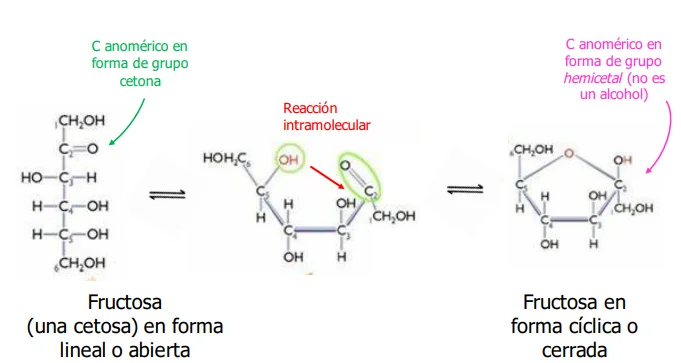
Se pueden formar dos configuraciones cíclicas diferentes:
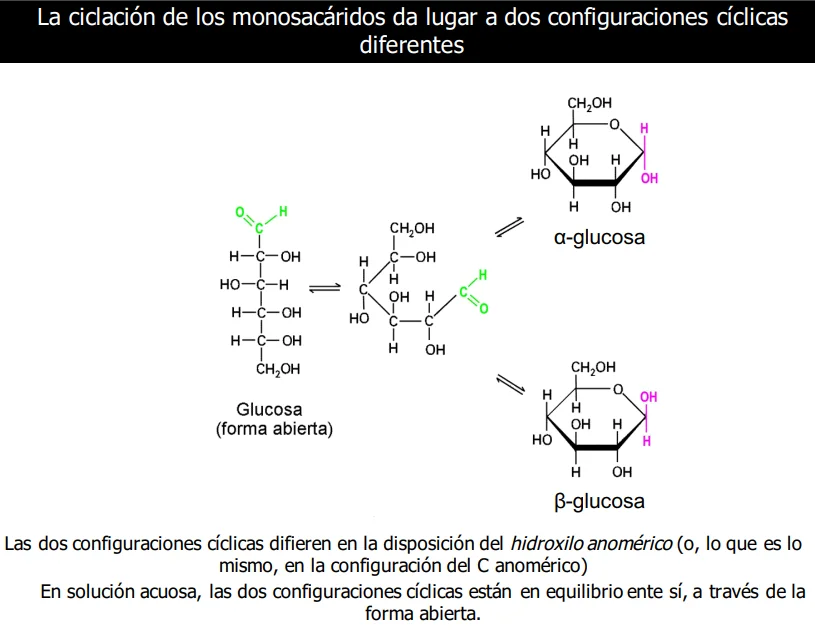
Las diferencias en los demás alcoholes no anoméricos también dan lugar a carbohidratos diferentes, y estos cambios no pueden ser modificados facilmente.
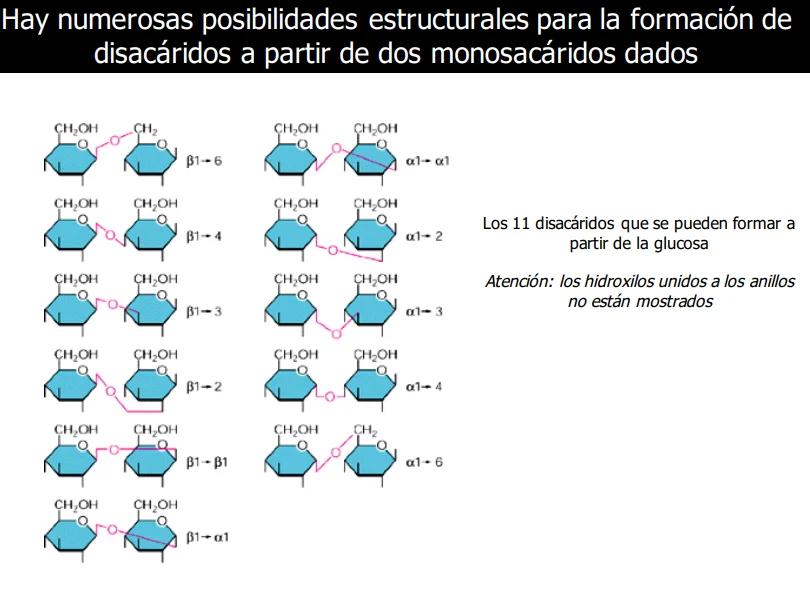
***Unión entre azúcares.
Unión O glucosídica 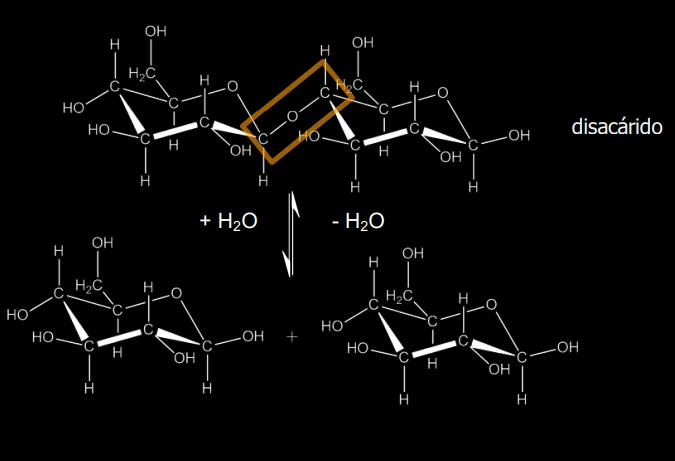
Desaparece el equilibrio entre formas alfa y beta para la que une su Carbono anomérico, que queda fija en la forma que toma.
Para diferenciar fácil aldosas y cetosas:
Aldosas no tienen enlace con C en el anomérico
Cetosas si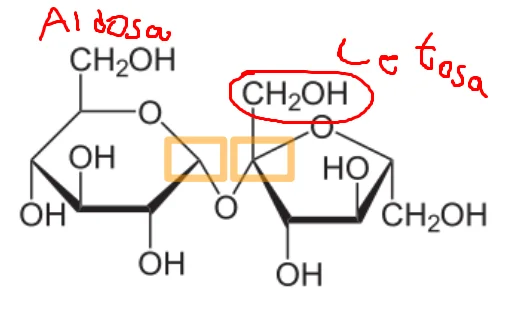
Los Polisacáridos son los únicos polímeros que se ramifican
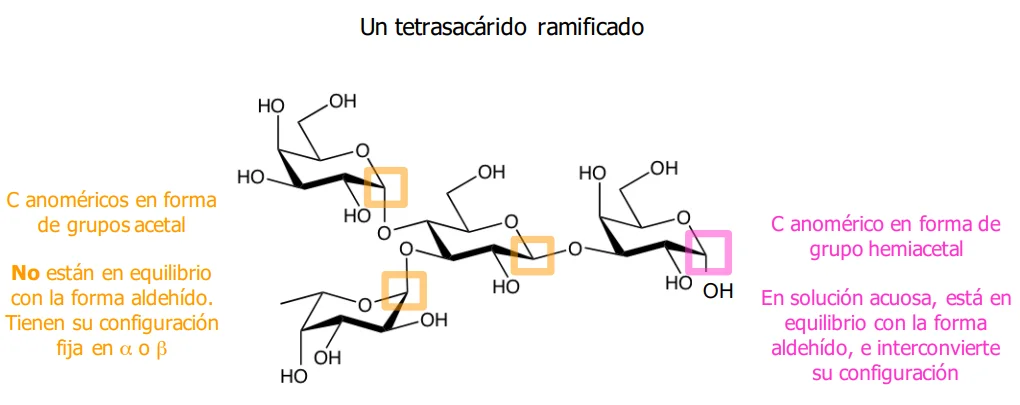
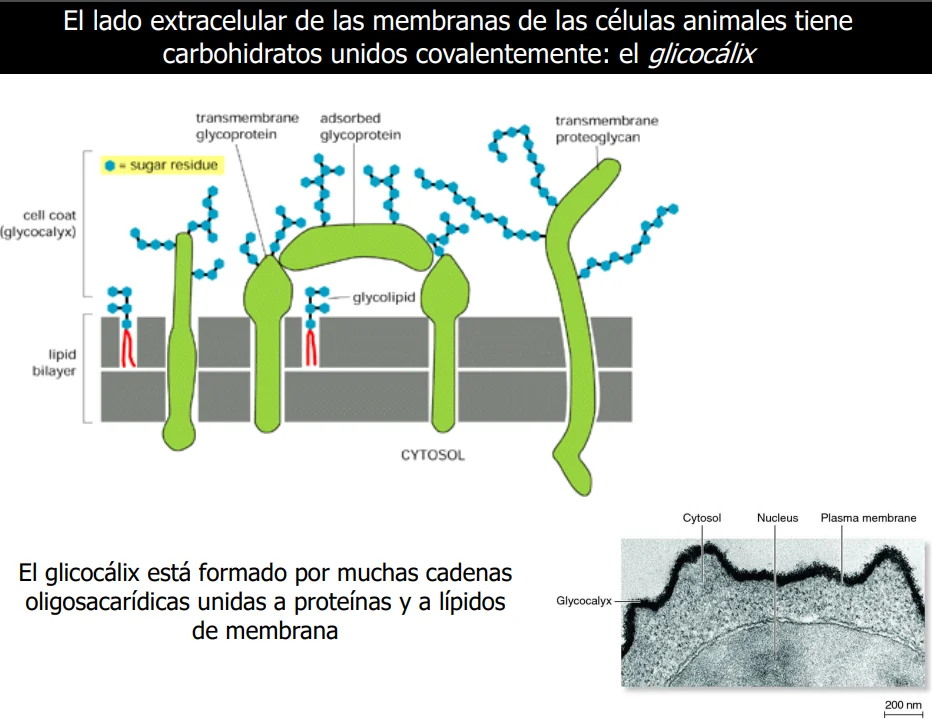
Oligosacáridos complejos (Polisacáridos sin estructuras repetitivas) casi siempre unidos por uniones O glicosidicas a Proteínas o Lípidos.
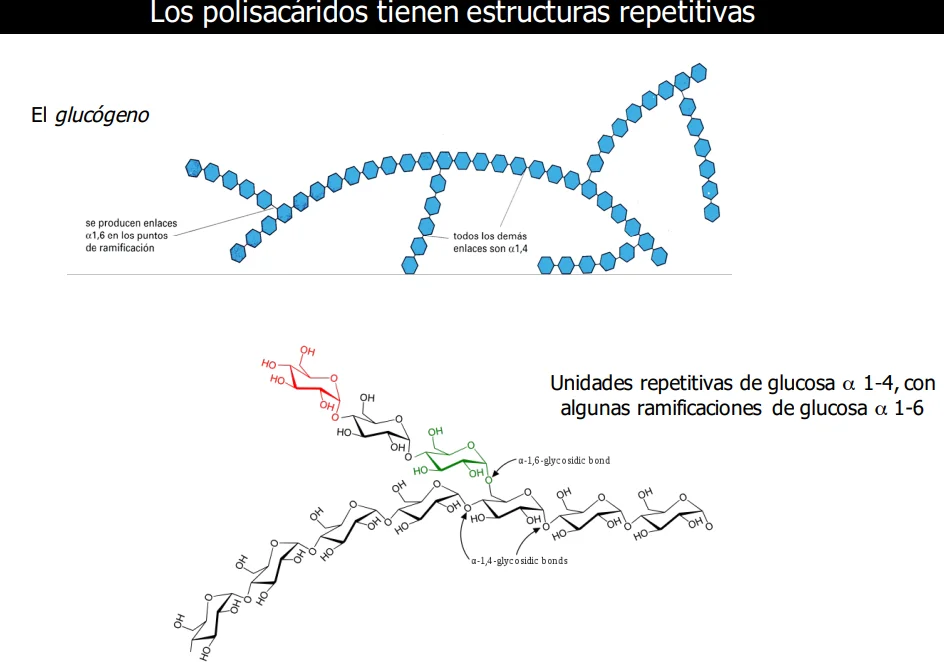
Mientras que los polisacáridos, tienen estructuras repetitivas en cadenas, con algunas ramificaciones también repetitivas.
Nucleótidos y Ácidos nucleicos.
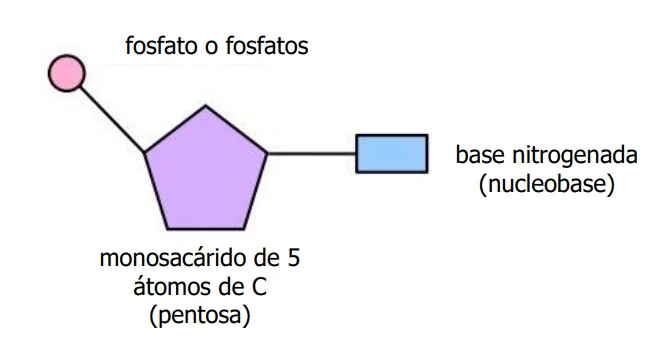
Cada nucleótido está formado por una base Nitrogenada(Nucleobase), un monosacárido, y uno o más fosfatos.
***Nucleobases
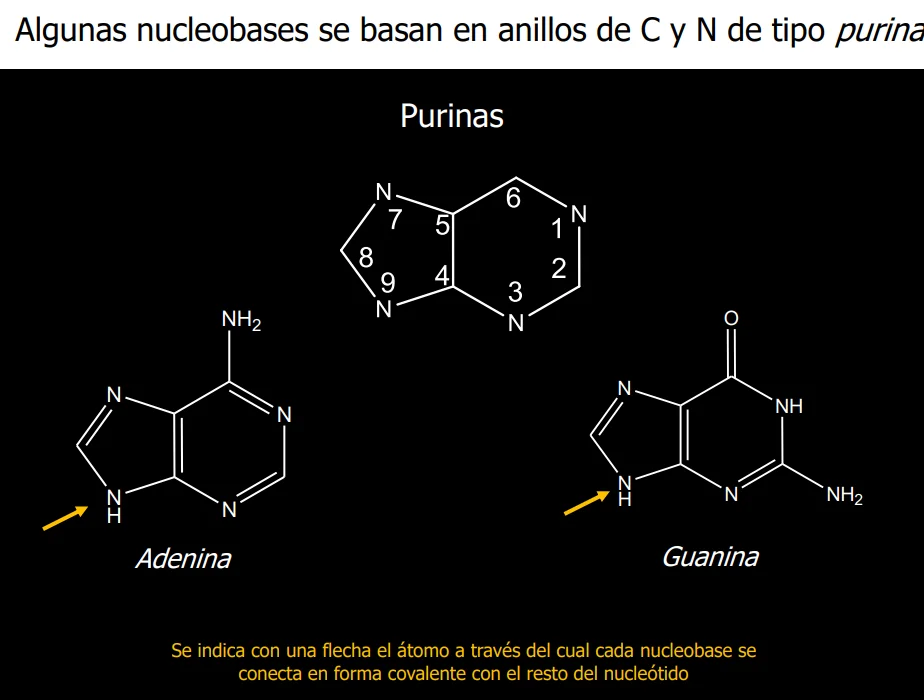
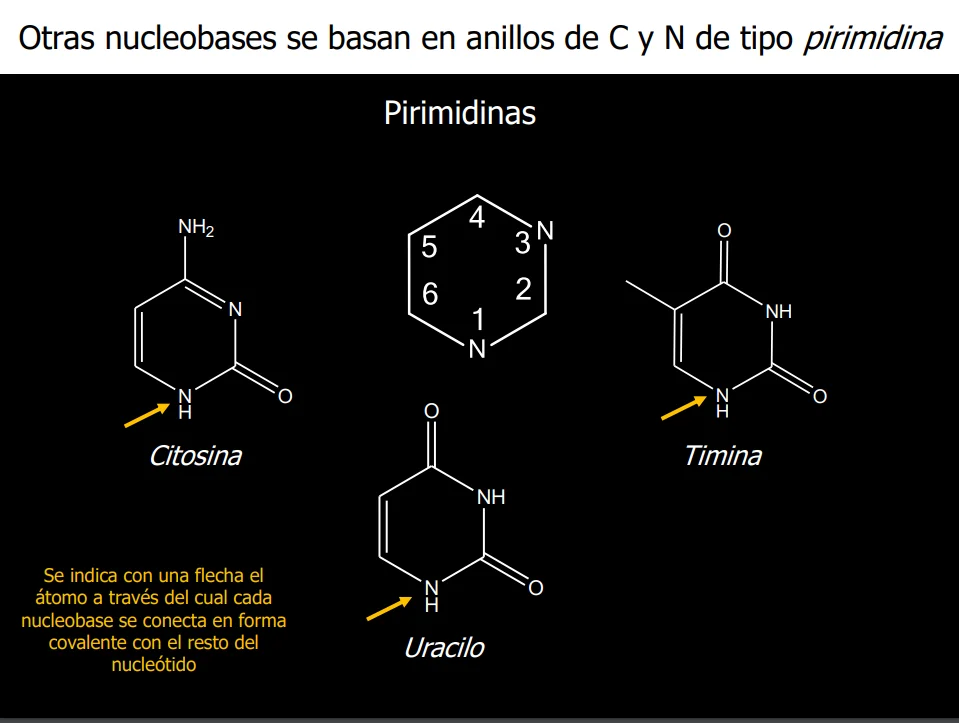
Ambos tipos de Nucleobases son Rígidas y planas por la multitud de doble enlaces y su forma cíclica.
***Nucleósidos
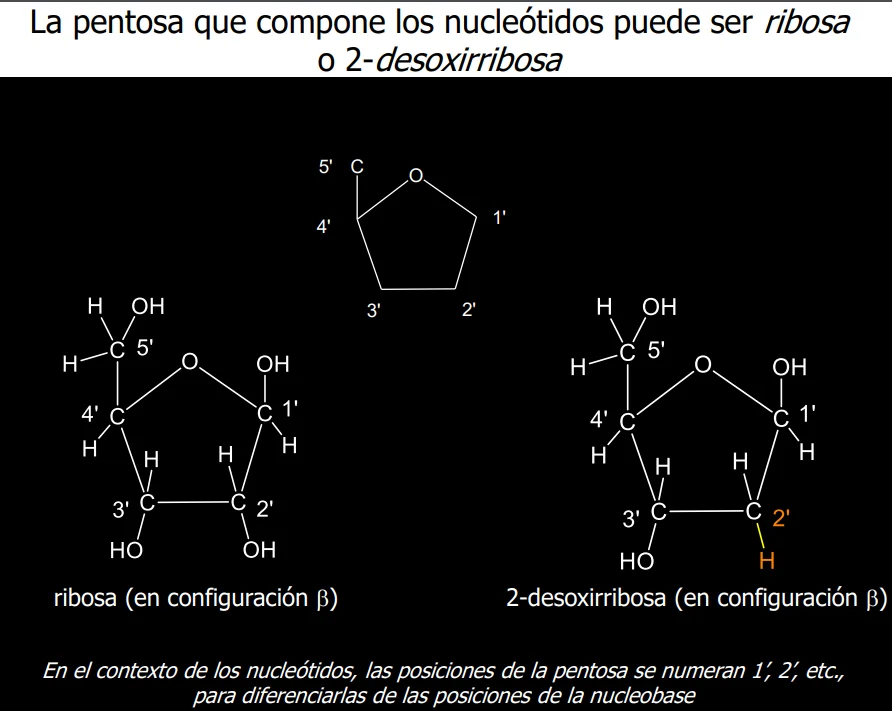
Y se unen a las bases por uniones N- Glicosidicas. Dando lugar a los Nucleósidos.
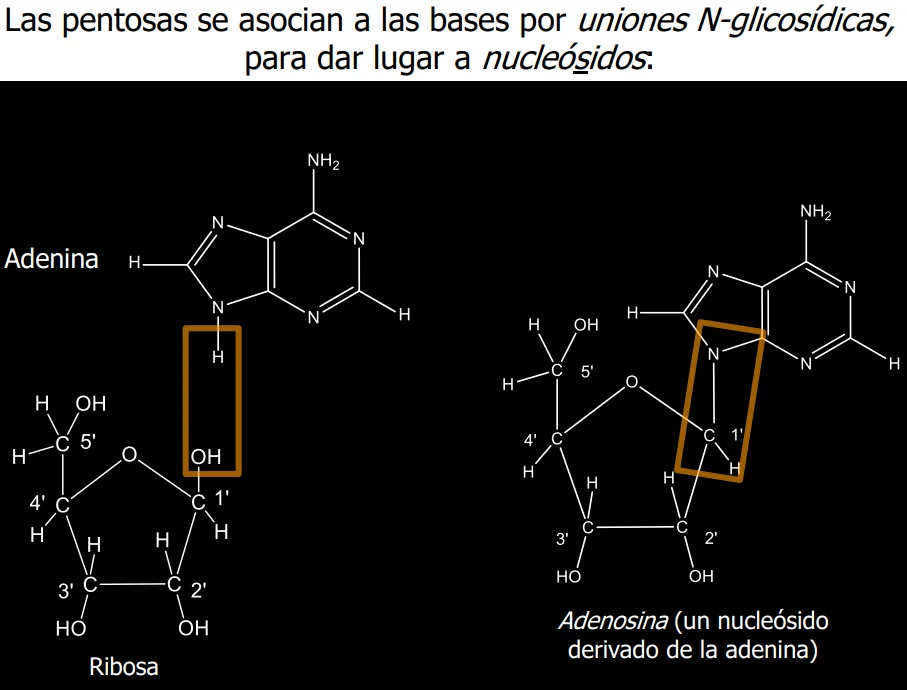
El Carbono anomérico queda unido a un átomo de O y uno de N, quedando fijo en la configuración dada.
En los nucleósidos la ribosa y desoxirribosa siempre está en posición beta.
***Fosfatos.
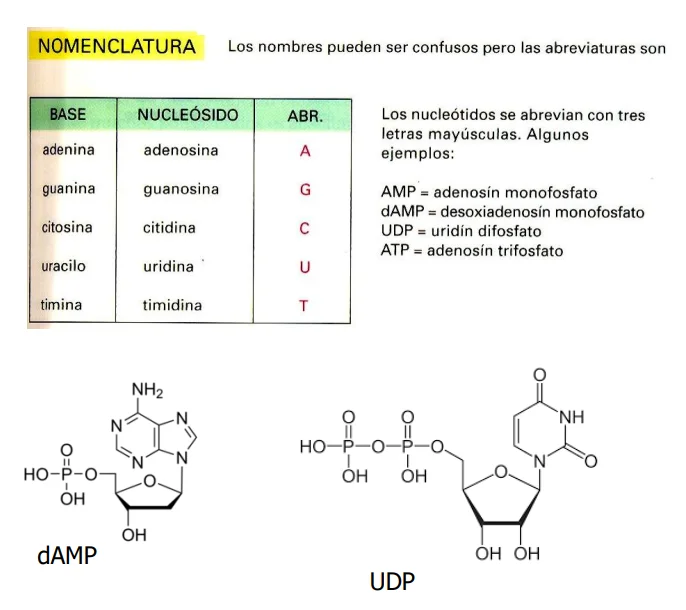
Pueden tener uno o varios fosfatos unidos por fosfoester y fosfoanhídrido.
(Generalmente son 1,2 o 3 fosfatos en la posición 5)
ATP: adenosina trifosfato
Algunas de las funciones de los nucleótidos individualmente (como Monómeros) son:
Transporte de energía en sus fosfoanhídridos. (ATP)
Combinarse con otros grupos para formar coenzimas.
Como moléculas señalizadoras.
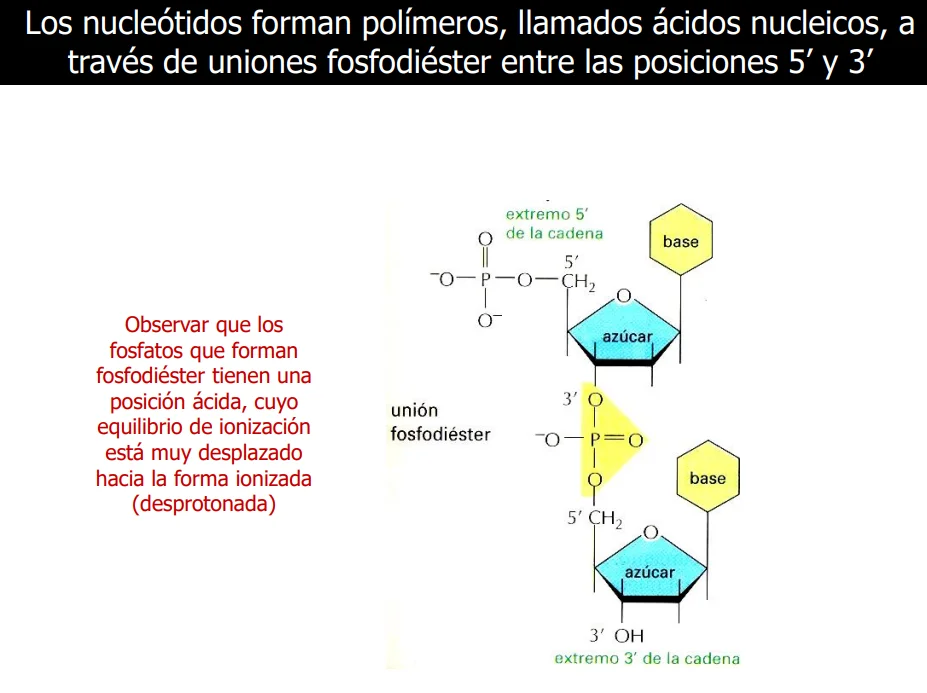
Como las uniones entre nucleótidos no dependen de las bases nitrogenadas, se unen formando un Esqueleto azúcar Fosfato.
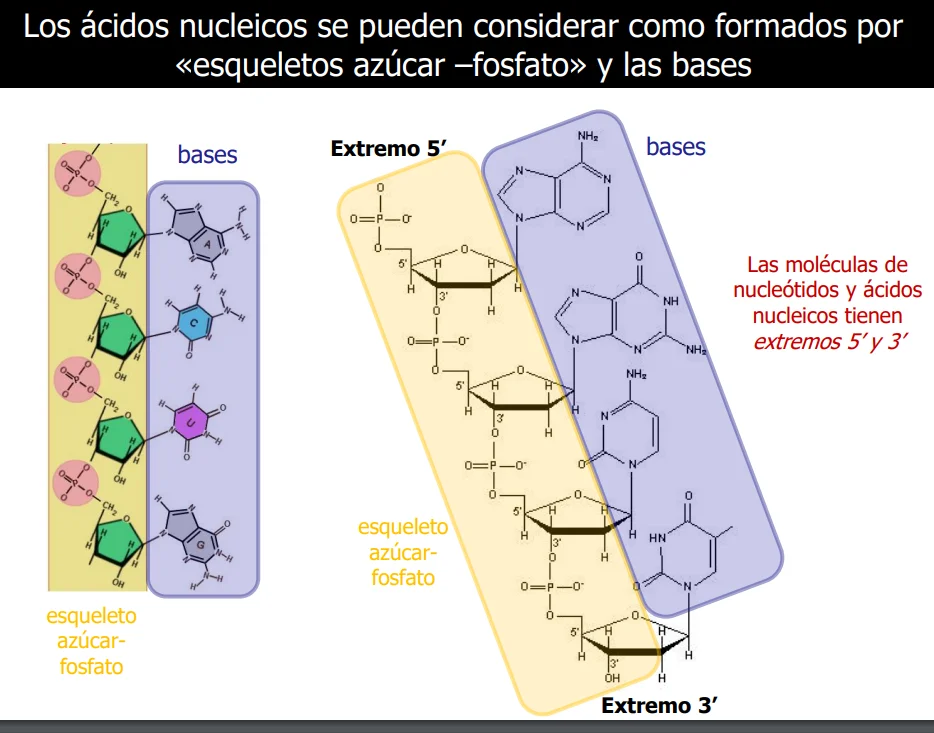
Por lo que podemos identificar los diferentes Ácidos nucleicos. simplemente por sus secuencias de bases. EJ: 5' AGTC 3'
Dos cadenas de nucleobases pueden aparearse mediante enlaces de hidrógeno.
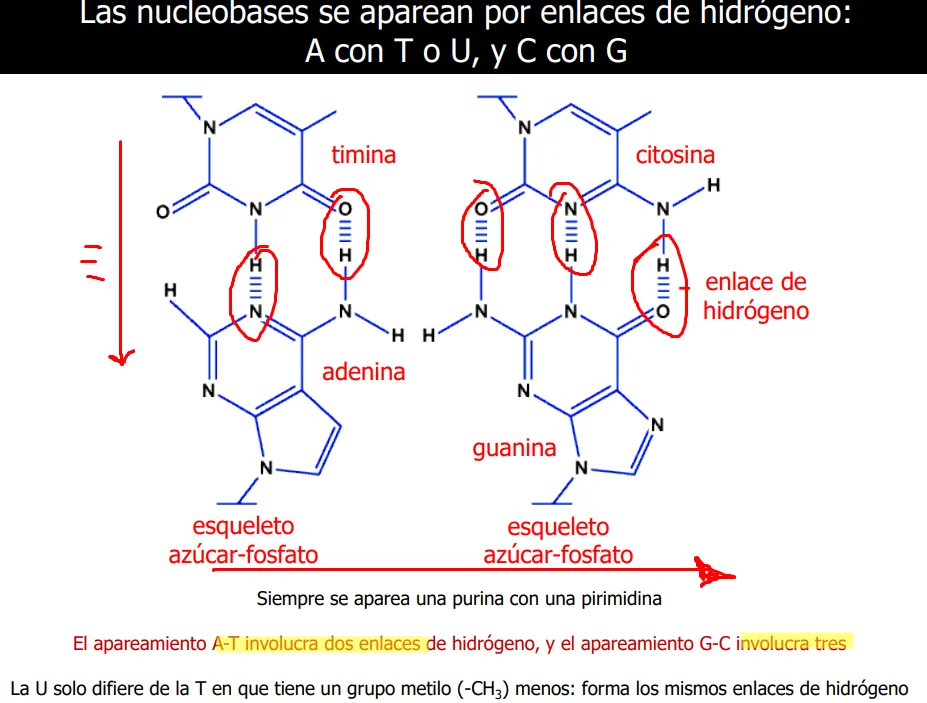
Los pares de nucleobases también son rígidos, pero como los enlaces entre azúcar fosfato son covalentes simples pueden rotar, lo que le da la forma al ADN que es 2 hebras de ácidos nucleicos antiparalelas enlazadas.
Al formarse miles de enlaces de hidrógeno simultáneos, el agua no puede competir y disolverlos, ya que entre ellos se "ayudan".
Para secuenciar el ADN basta con secuenciar una hebra, porque la otra siempre va a ser su par.
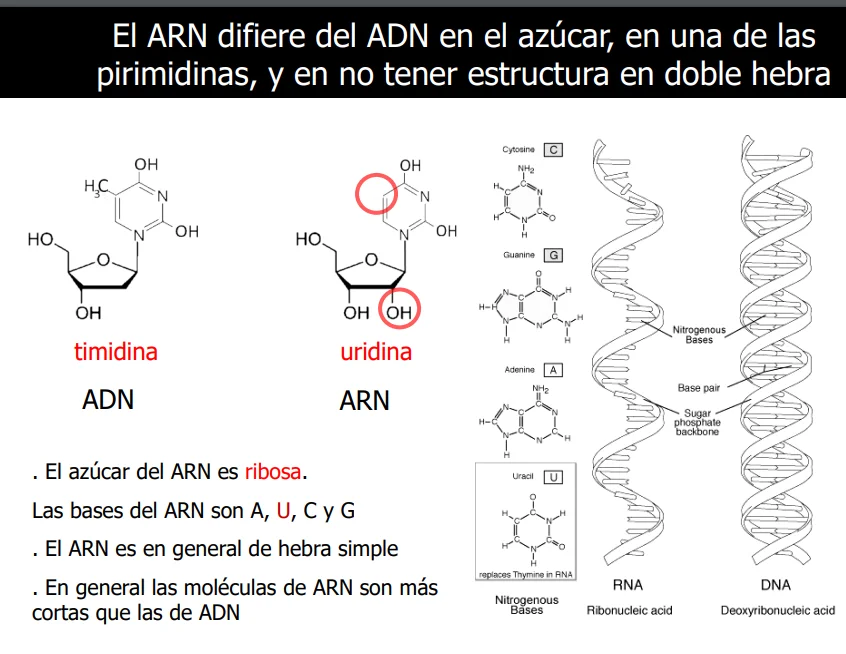
El ARN puede plegarse sobre sí mismo por apareamiento de bases.
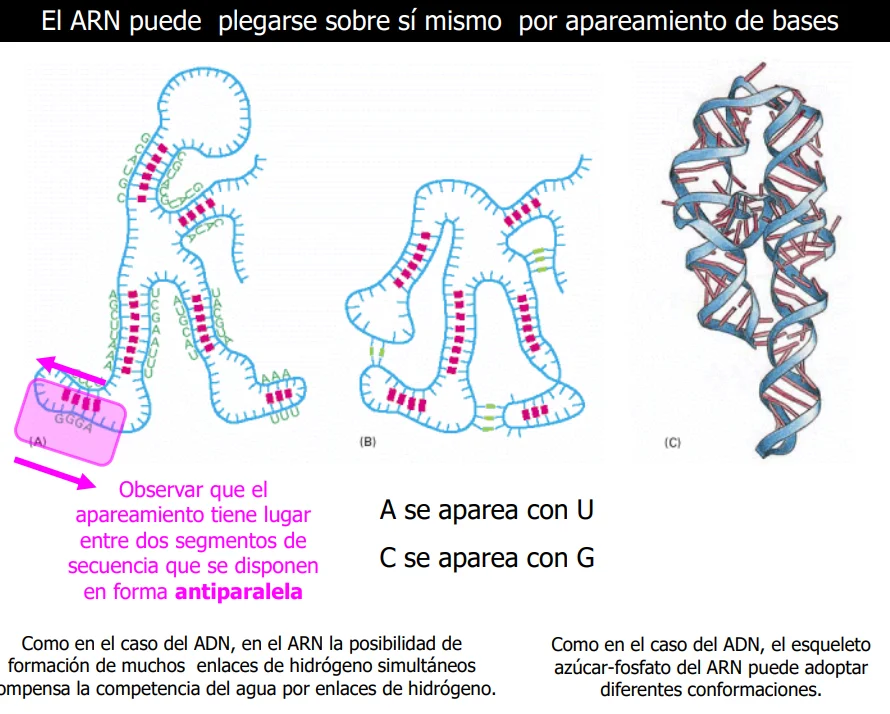
Como funcionan de una manera similar a las Proteínas se les da también 3 niveles de estructura.
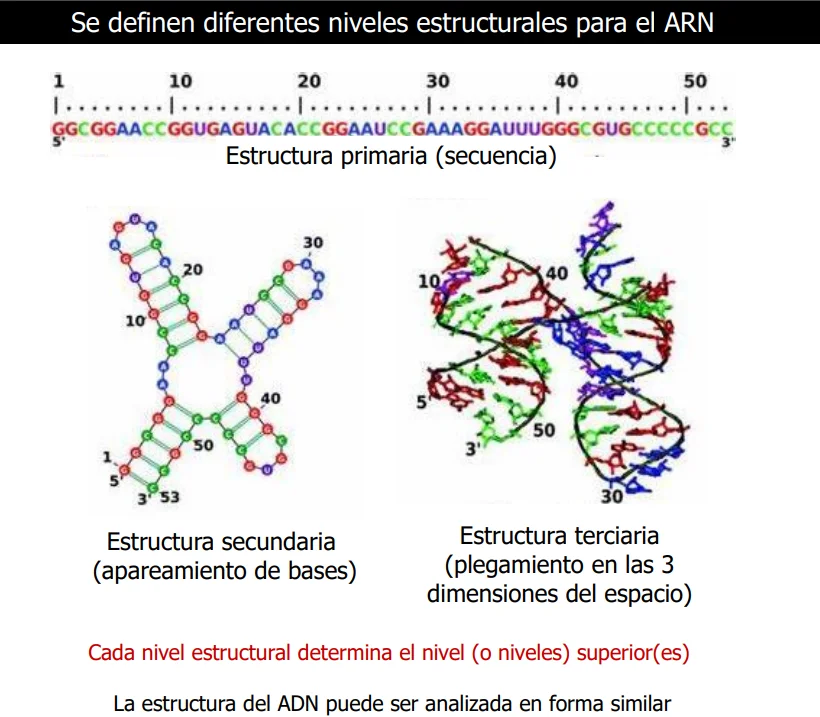
El ARN puede funcionar como el ADN (transportando información en su secuencia.) o como proteínas, realizando una función según su estructura tridimensional.
PROTEINAS.
Las proteínas son los "personajes principales de todos los procesos celulares."
Su gran variedad de funciones se debe a la gran cantidad de formas que puede tomar. Una encima típica suele tener unos 5nm de Diámetro.
Están compuestas de miles de átomos, y su forma está definidas según la posición de cada uno de esos átomos.
Cada proteína puede ser vista desde varios sitios con diferentes propiedades químicas.
Son Polímeros de entre 20 tipos de aminoácidos. (moléculas con un grupo amino y un ácido carboxílico) Deben estar unidos al mismo carbono alfa
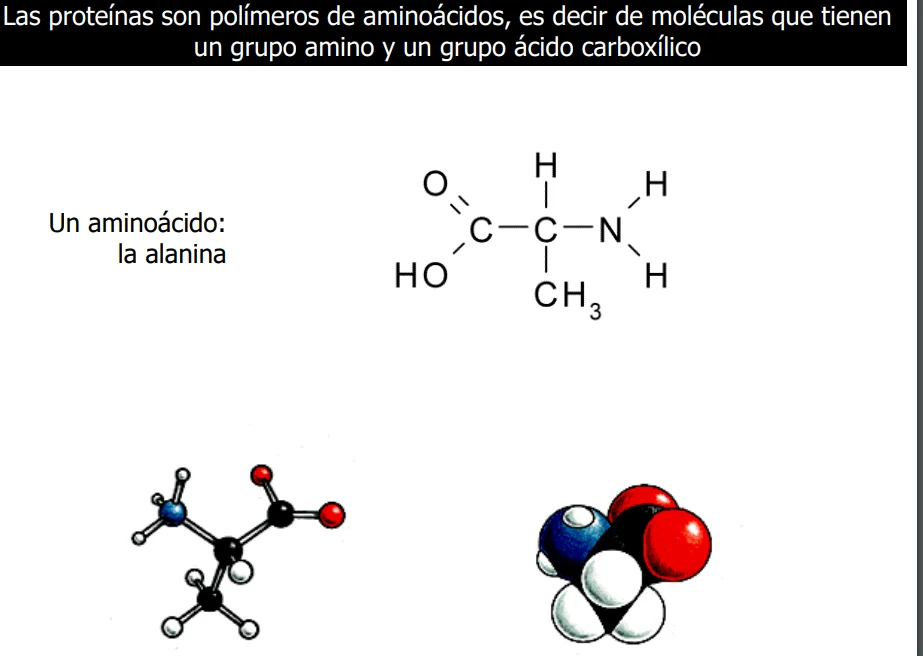
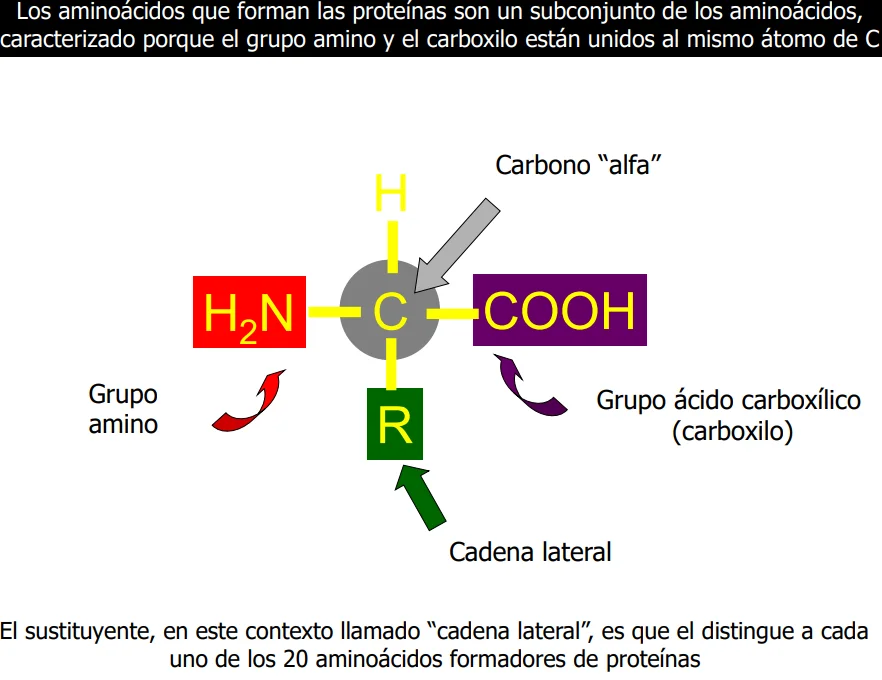
Los aminoácidos se conectan entre sí mediante uniones amida, formando péptidos. 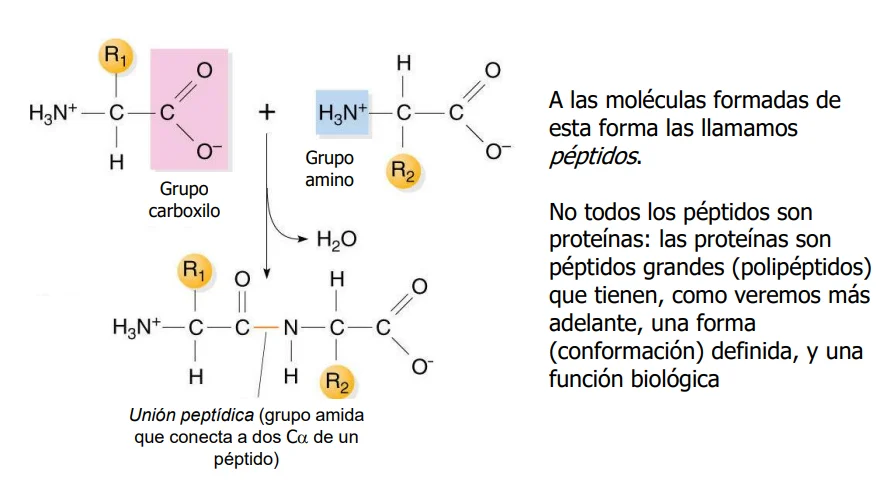
A partir de 2 aminoácidos se pueden formar 2 dipéptidos diferentes según cuál esté primero
Los péptidos tienen un extremo amino (N terminal), y un extremo carboxilo (C terminal)
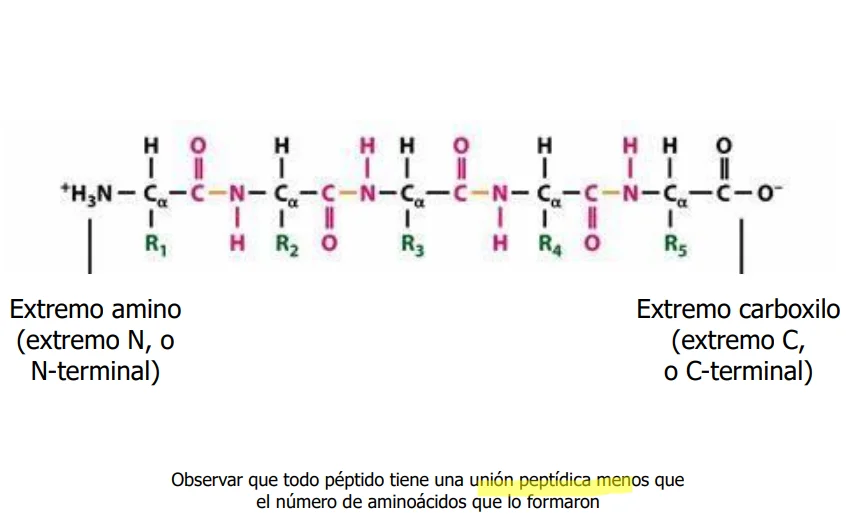
Al igual que en los ácidos nucleicos, se forma un esqueleto principal, y las diferentes cadenas laterales. 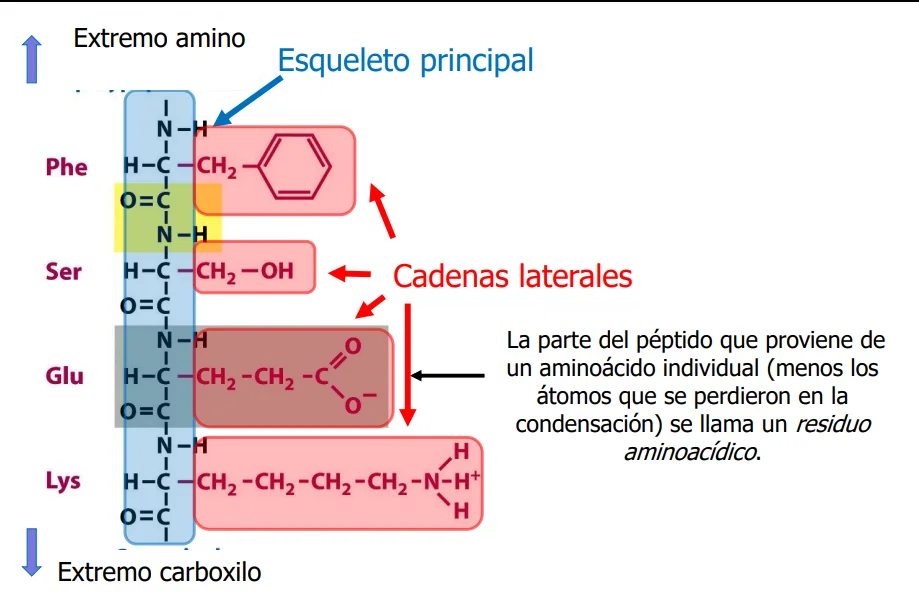
Por lo tanto, cada péptido se caracteriza por sus cadenas laterales, y se escribe de extremo amino a extremo carboxilo. La mayoría está entre 100 y 2000 residuos.
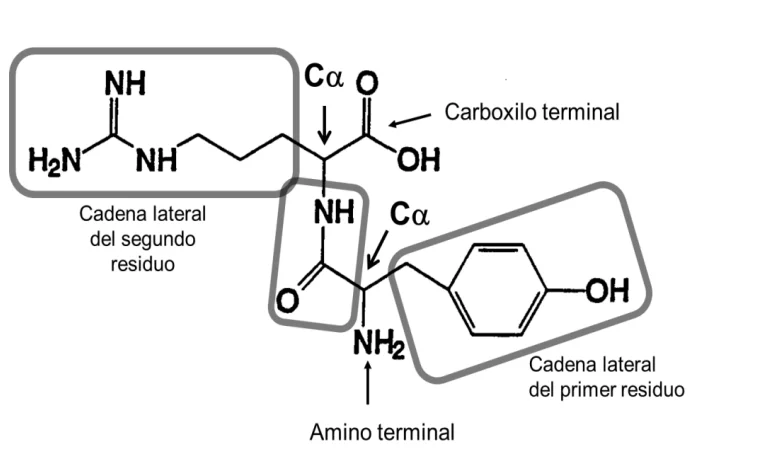
Cada secuencia de aminoácidos corresponde con una forma, y por lo tanto función, proteica.
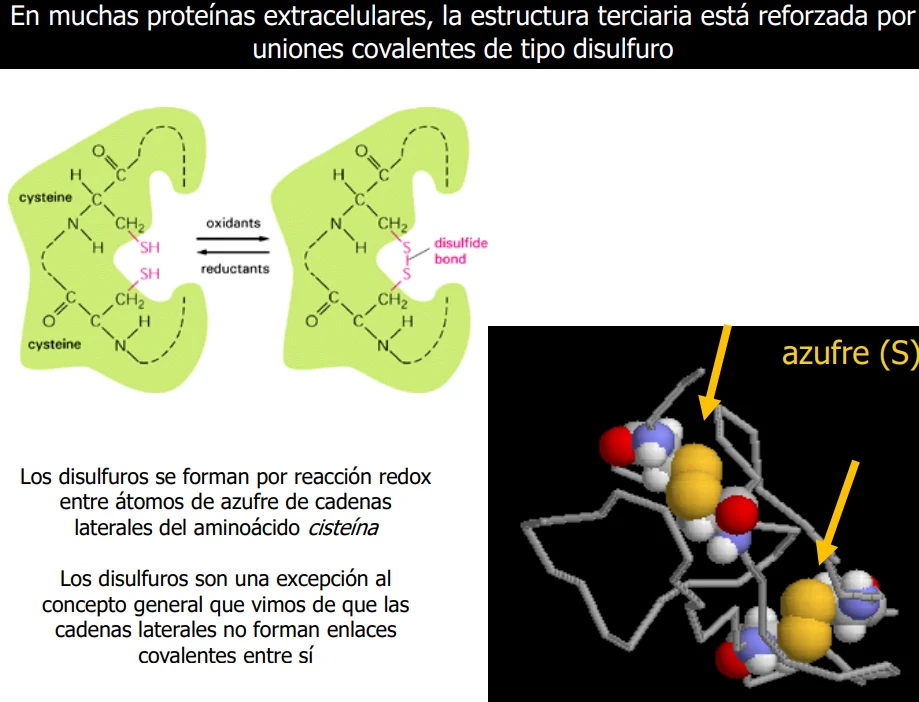
Su conformación va a estar dada por el plegamiento de su esqueleto principal formado por enlaces covalentes simples.
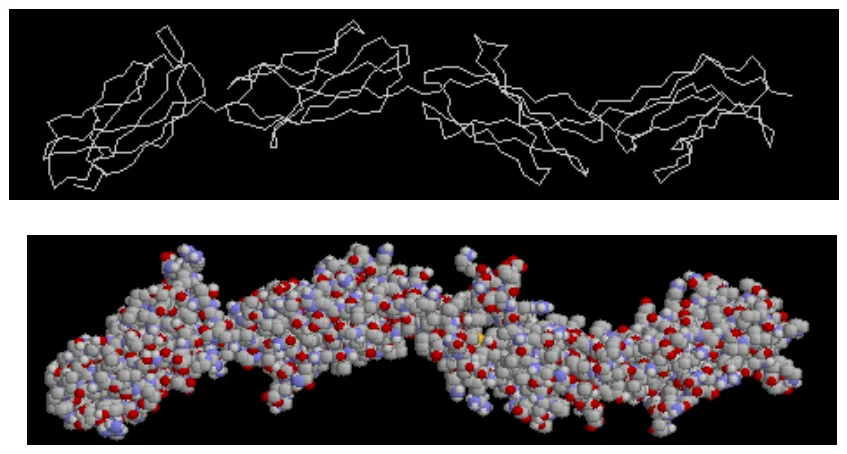
La evolución ha ido seleccionando las proteínas con una conformación más estable y definida.
Pero si las exponemos a cambios de ph, temperatura etc, podemos desnaturalizarlas haciéndolas perder su conformación nativa.
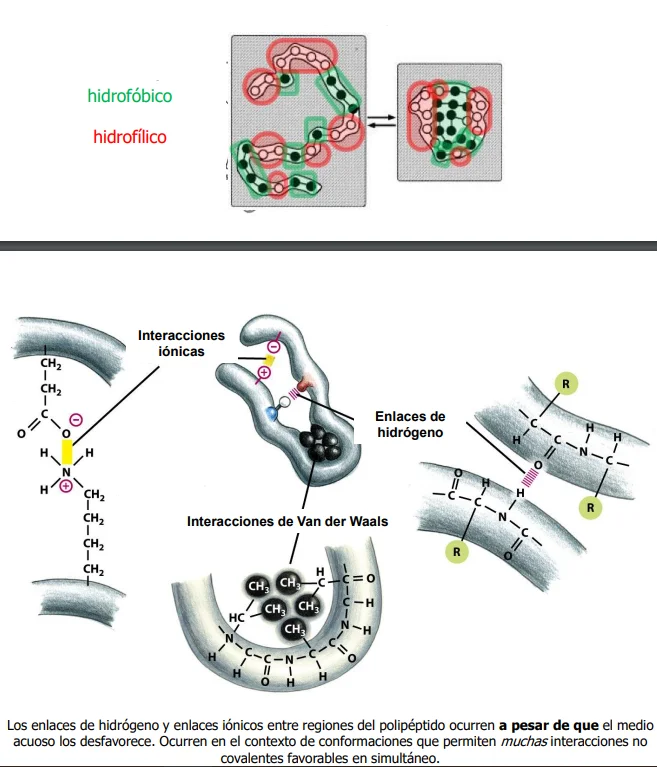
En su plegamiento buscan "esconder" las partes hidrofóbicas, y maximizar los enlaces de hidrógeno, atracciones iónicas de Vander Waals etc.
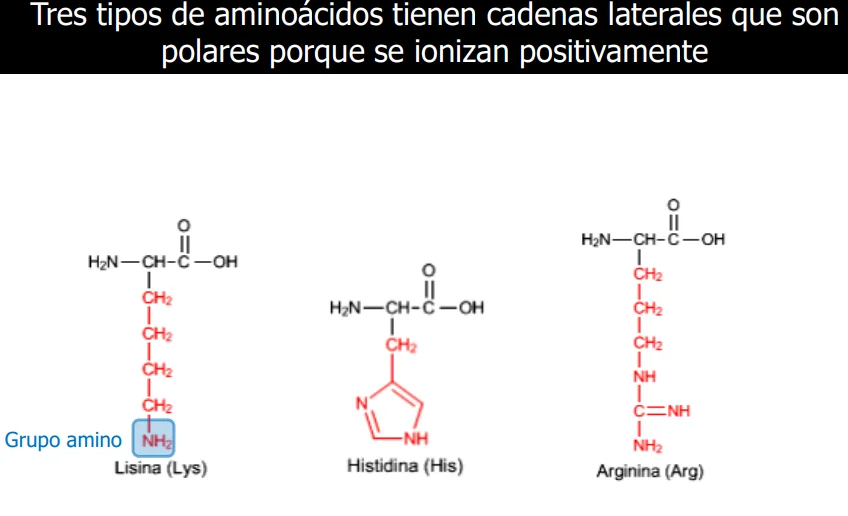
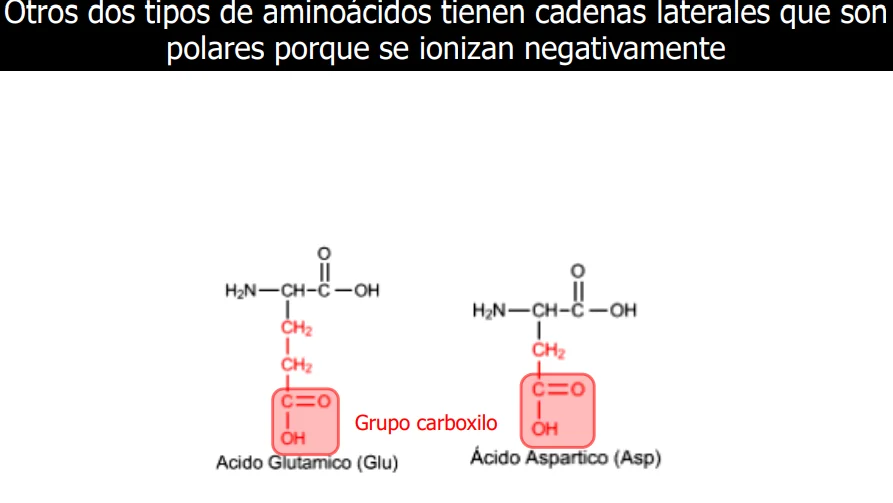
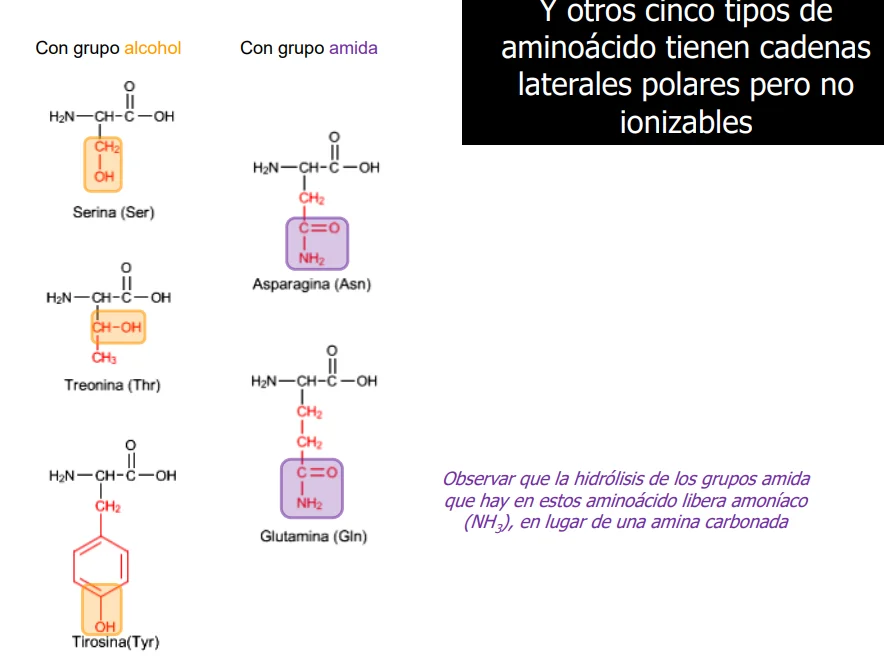
El resto son apolares.
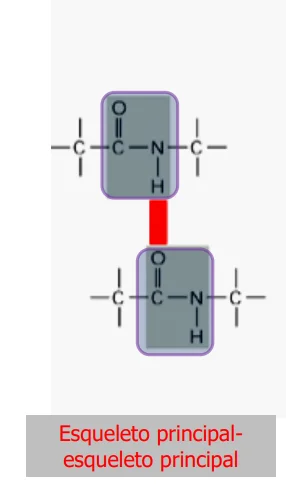
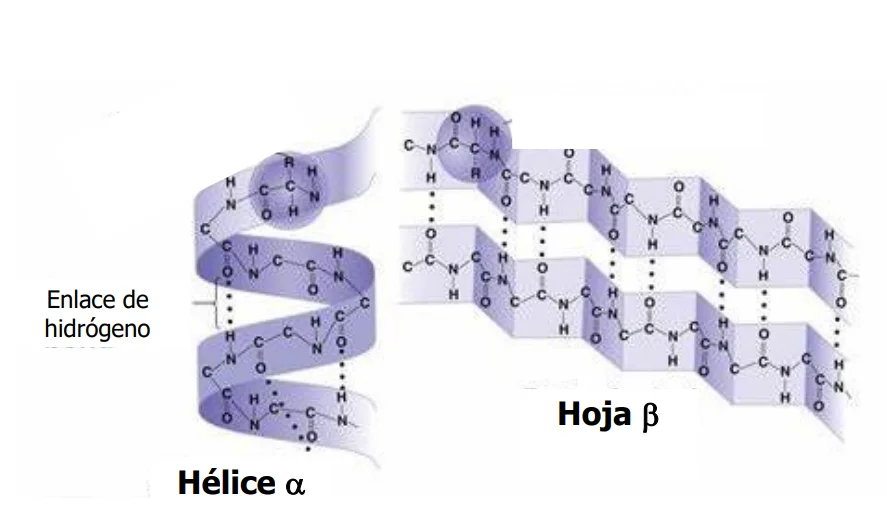
Como los elementos capaces de formar enlaces de hidrógeno del esqueleto principal están siempre, independientemente de la secuencia, y son los que dan forma a las estructuras repetitivas entre diferentes proteínas.
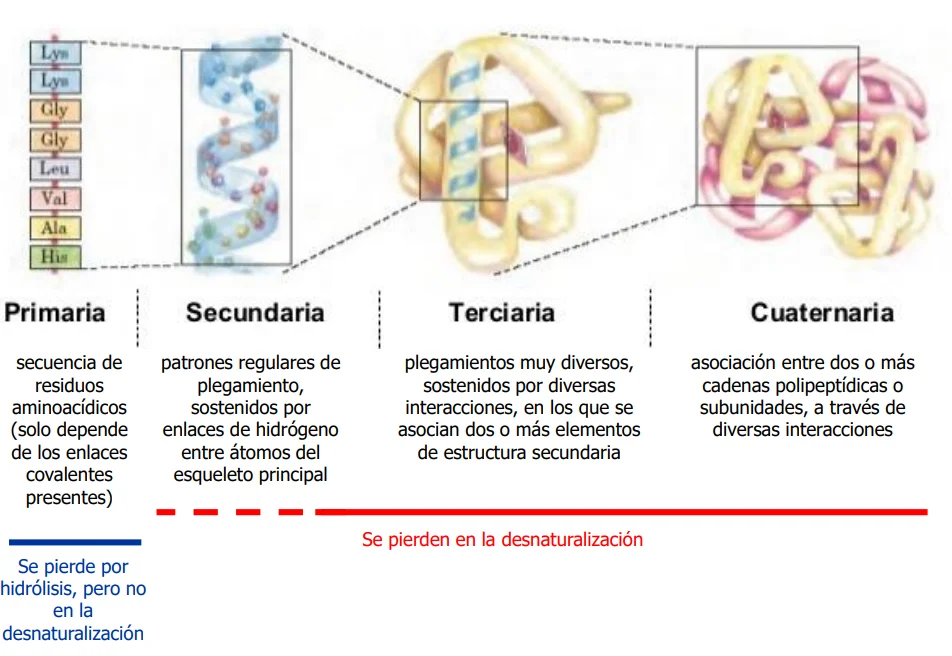
Al estudiar la proteína podemos "separar " su estructura en 3 niveles:
Primaria es la secuencia,
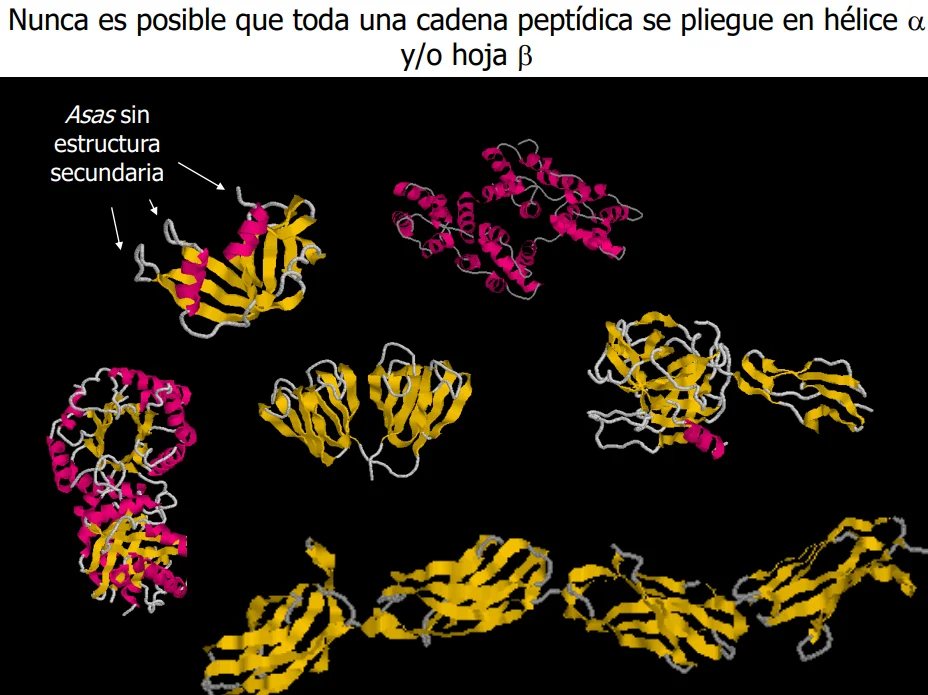
Secundaria es El plegamiento en Ha y Hb
Terciaria son las asociaciones entre Ha y Hb (Mediante todas las interacciones, y en todas las partes, no solo el esqueleto.)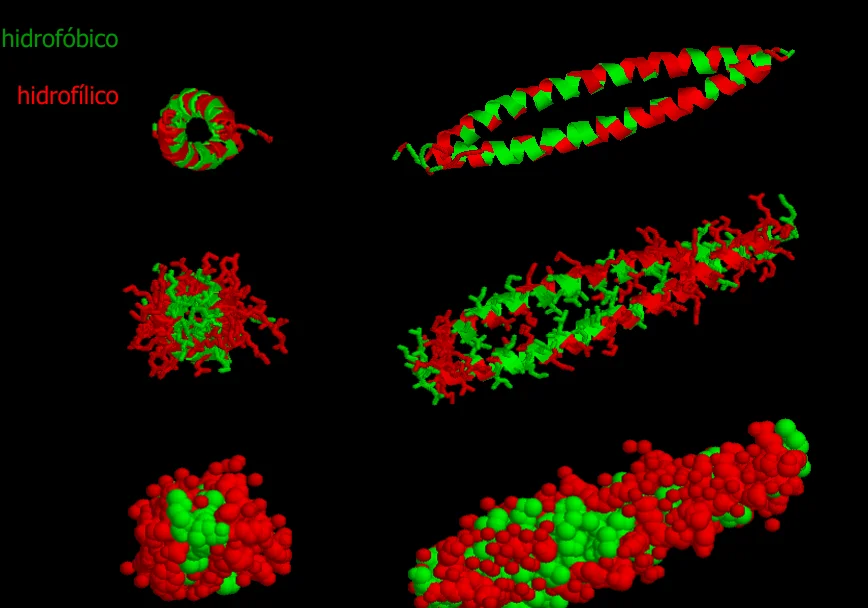
La estructura cuaternaria es la unión de varias "subunidades proteicas" mediante las mismas fuerzas que la terciaria)
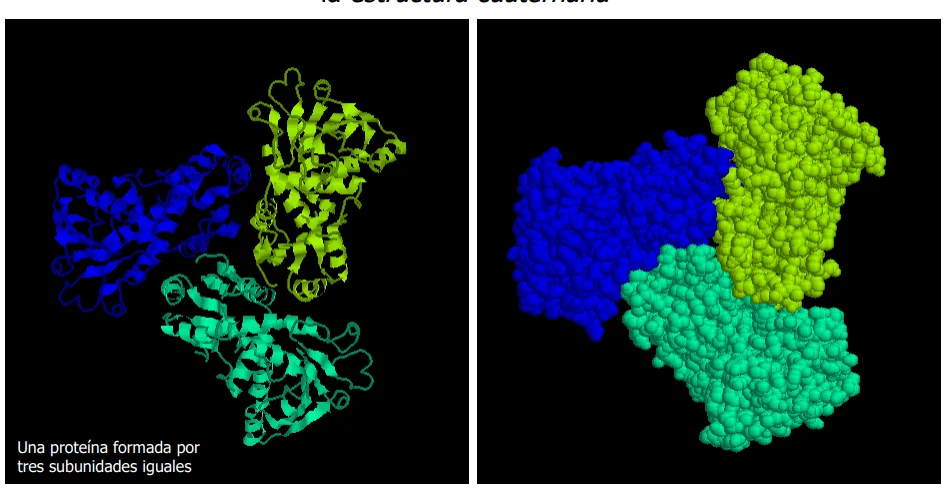
(pueden ser iguales o diferentes.)
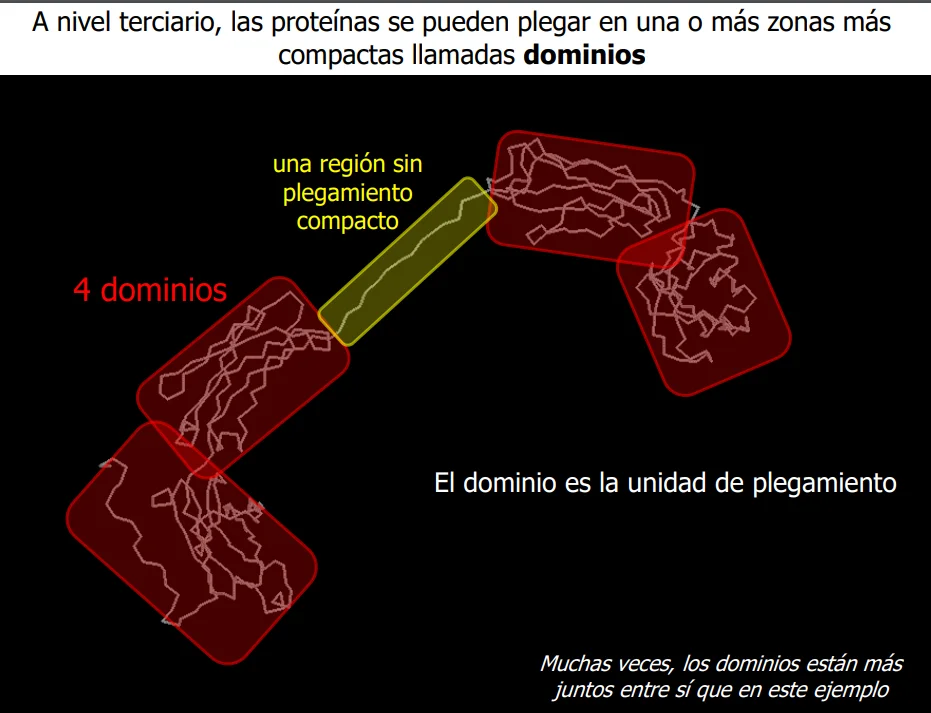
Las interacciones entre dominios son mucho menores que las intradominios.
Las partes sin plegamiento sirven como "bisagra".
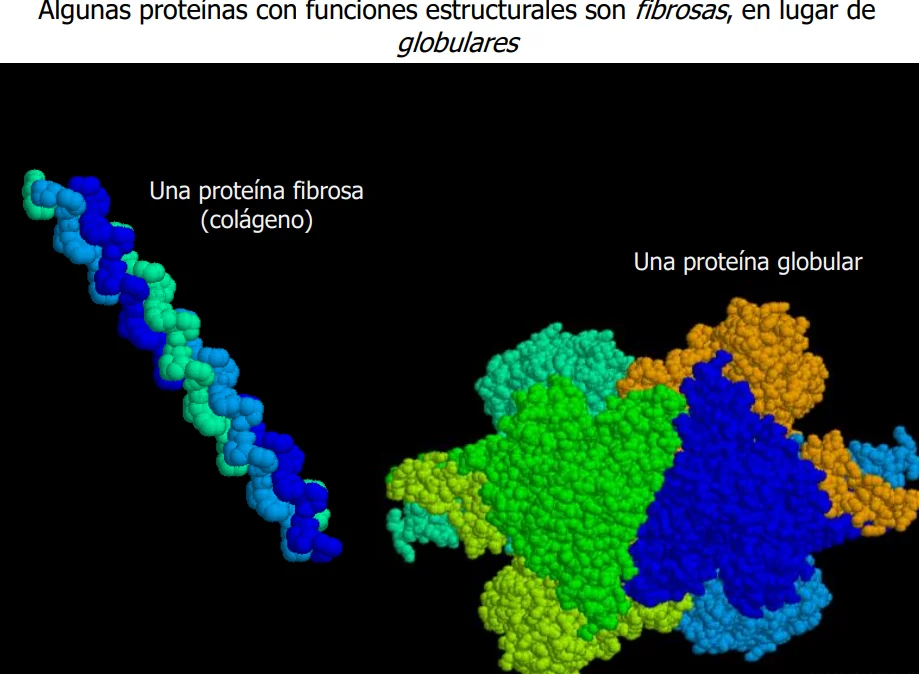
Además las proteínas pueden tener dominios fibrosos y dominios globulares.
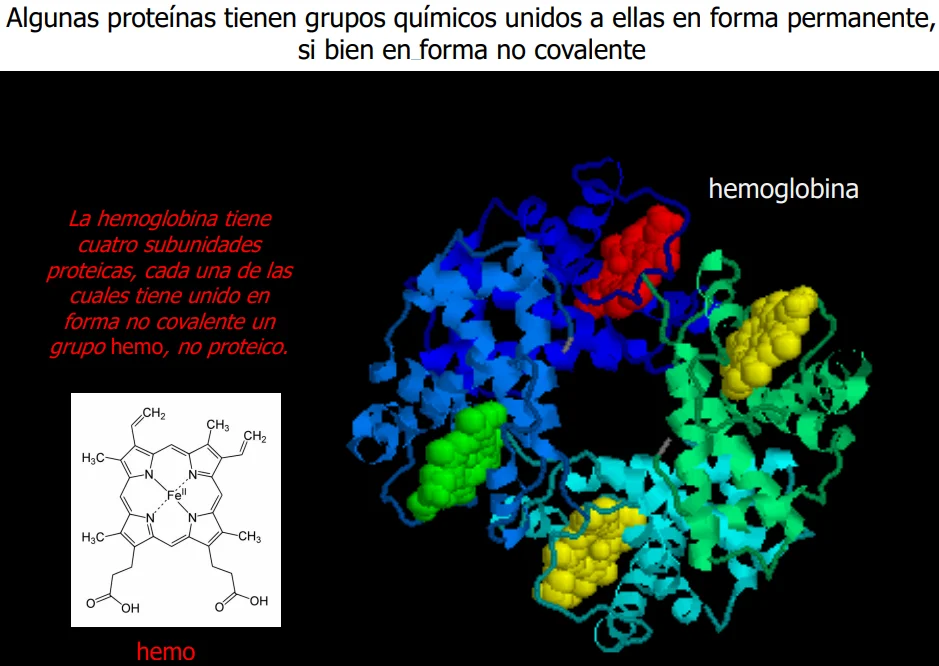
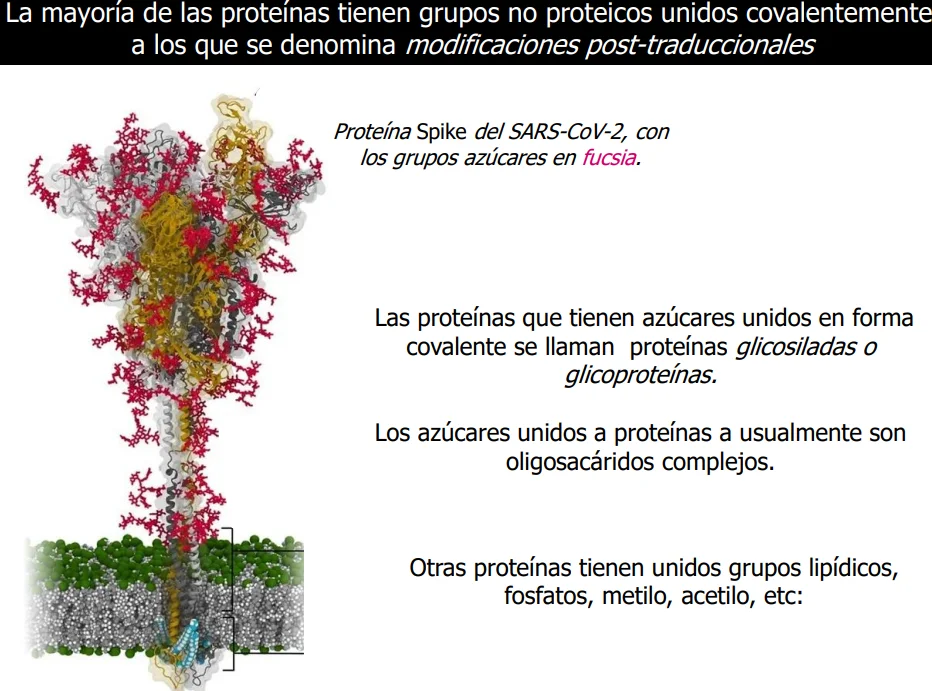
Las proteínas que tienen grupos no proteicos unidos covalentemente, decimos que tienen modificaciones post-traduccionales.
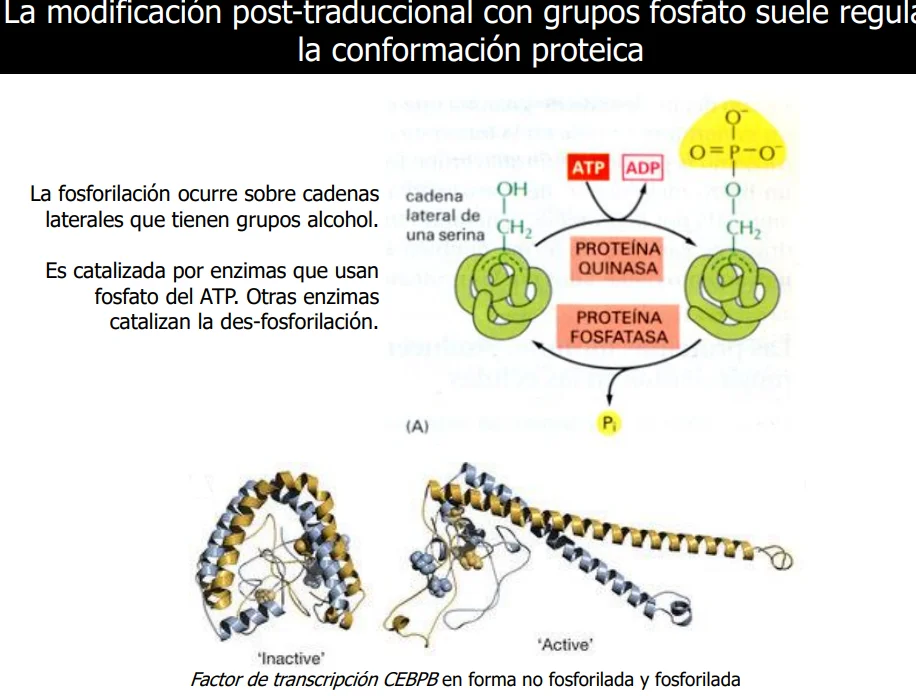
Cambios conformacionales.
La mayoría de las proteínas son capaces de hacerlos, según diferentes factores, ejemplo: recibir luz, o asociarse en algún sitio específico.
Estos cambios llevan también a cambios de función.
La modificación Post traduccional con fosfatos suele regular la conformación proteica.
FUNCIONAMIENTO DE LAS PROTEINAS
Cumplen sus funciones gracias a la especificidad de sus uniones con otras moléculas.
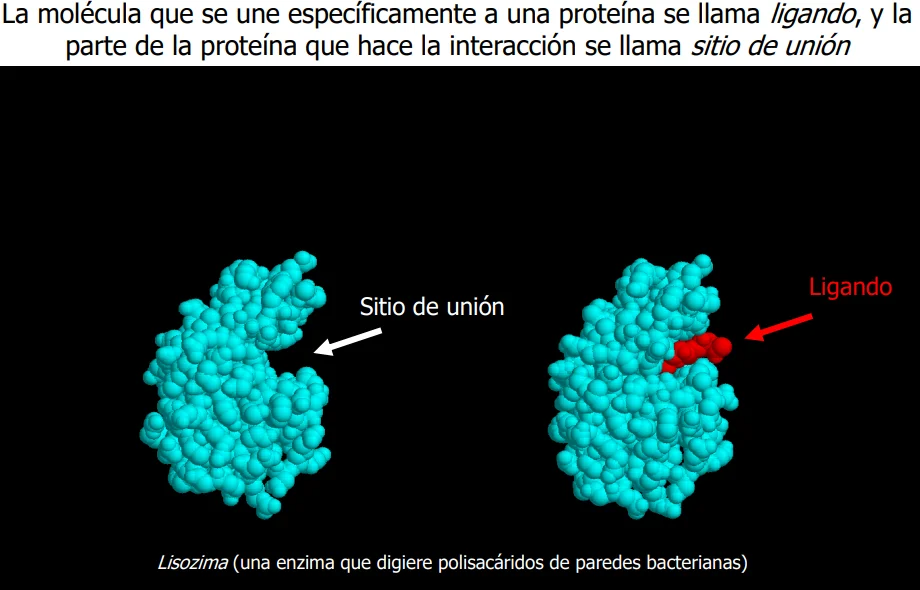
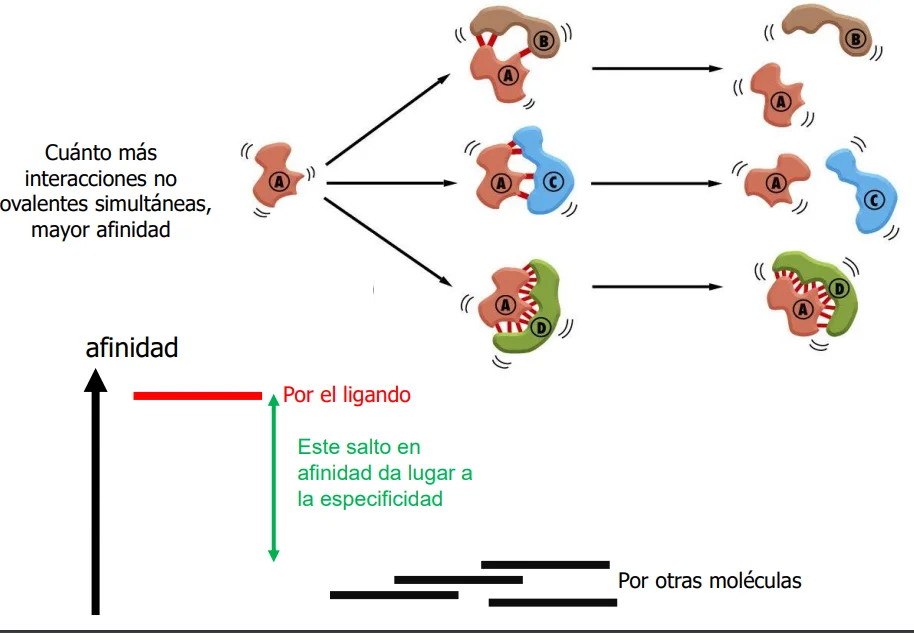
La especificidad se basa en la formación de múltiples interacciones no covalentes simultaneas.
Estas interacciones tanto con cadenas laterales como con el esqueleto, y con todos los tipos de interacción no covalente.
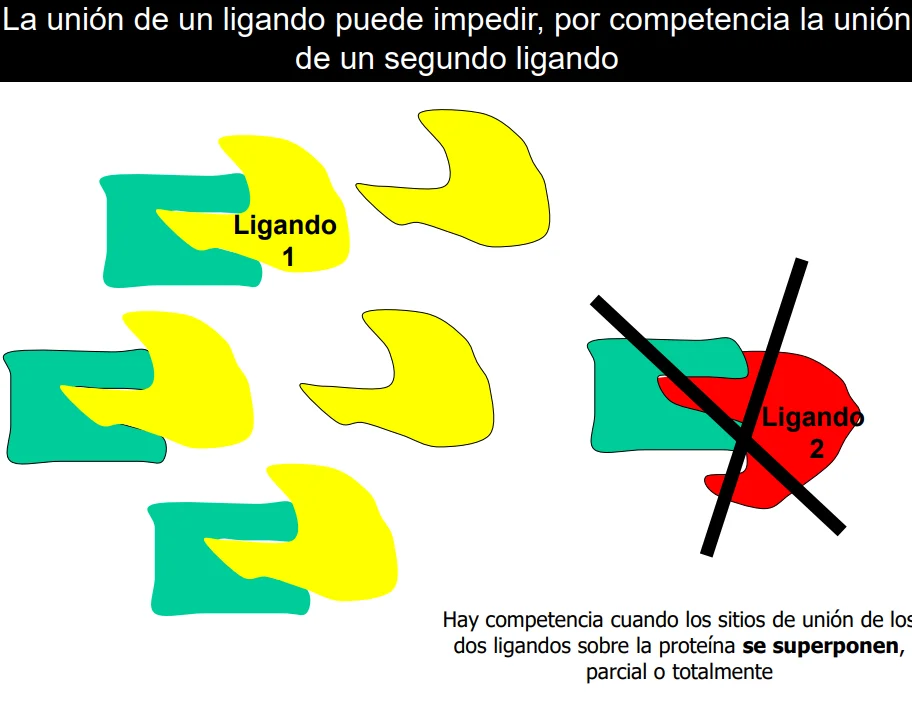
Entre el sitio de unión y el ligando específico hay complementariedad de forma y propiedades químicas: esto hace posible la formación de numerosas interacciones no covalentes simultáneas. Esto no es posible si en lugar del ligando hay otra molécula. Tampoco es posible si la proteína está desnaturalizada.
En muchos casos el ligando de una proteína es otra proteína.
Hay 4 TIPOS DE UNIÓN PROTEÍNA-LIGANDO
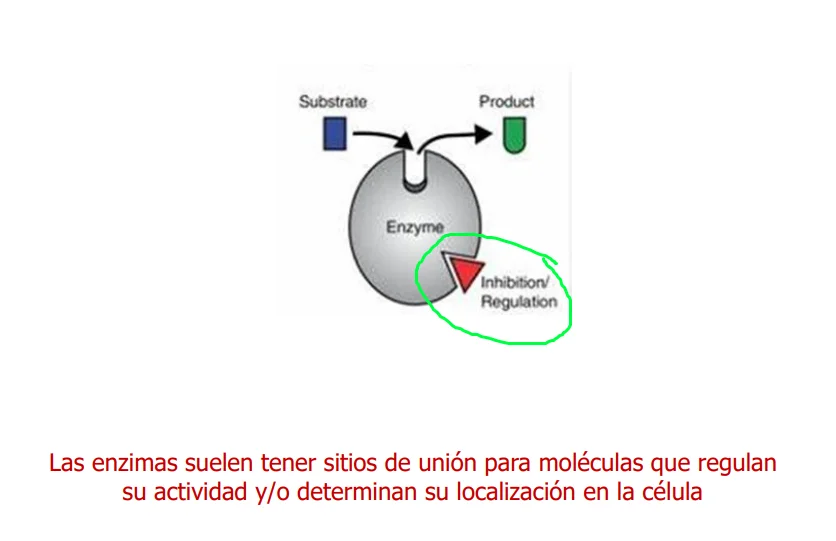
Catálisis enzimática (Modificación del Ligando,(en este caso llamado sustrato), resultando en un producto.) 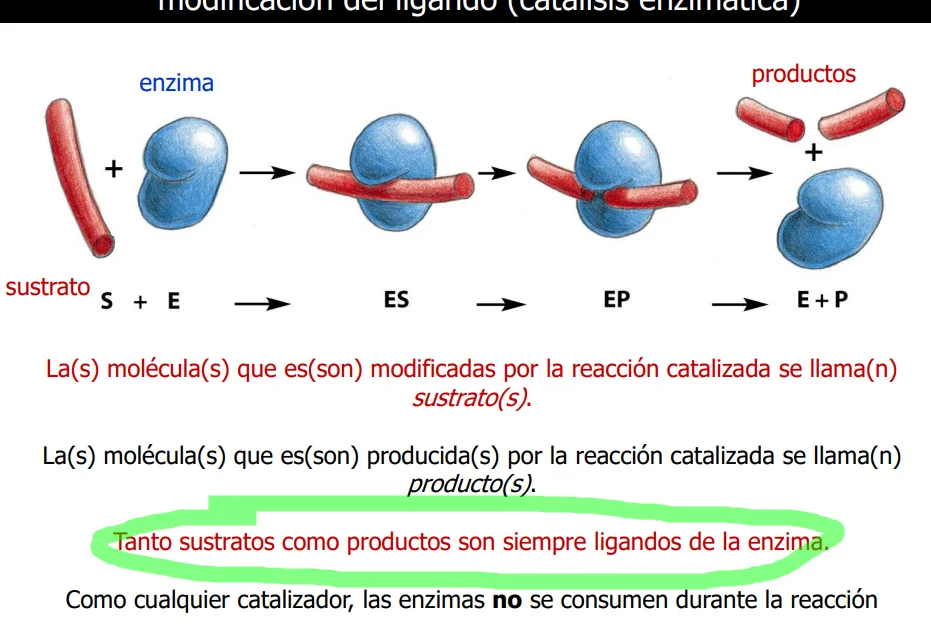
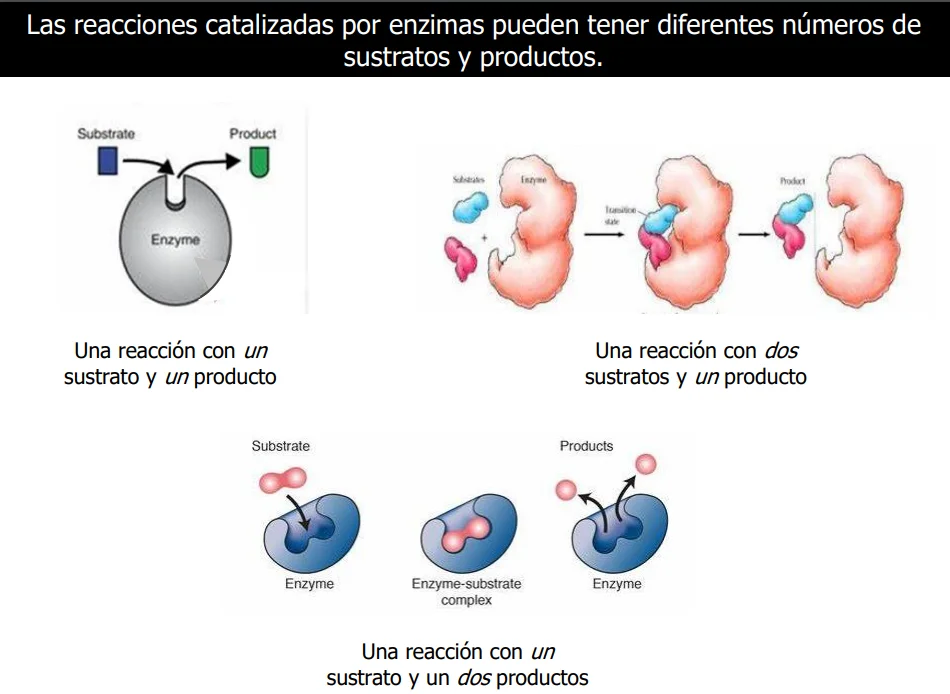 El sitio de la enzima se llama sitio activo
Otro tipo es el CAMBIO DE LOCALIZACIÓN.
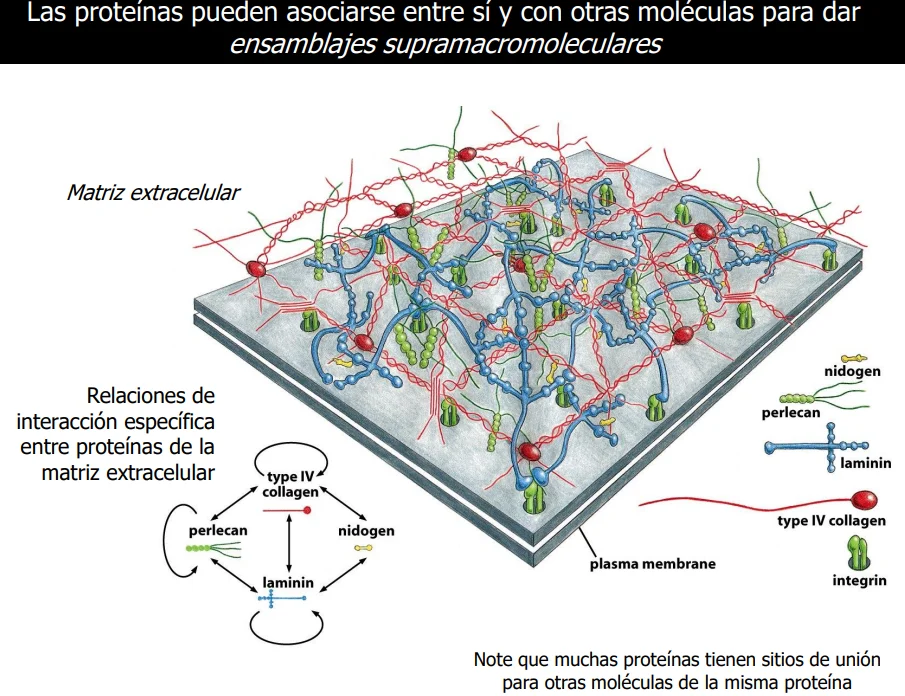
Proteínas quedan "pegadas" al ligando. También pueden asociarse entre si para fijar su localización en redes de ensamblaje supramoleculares.
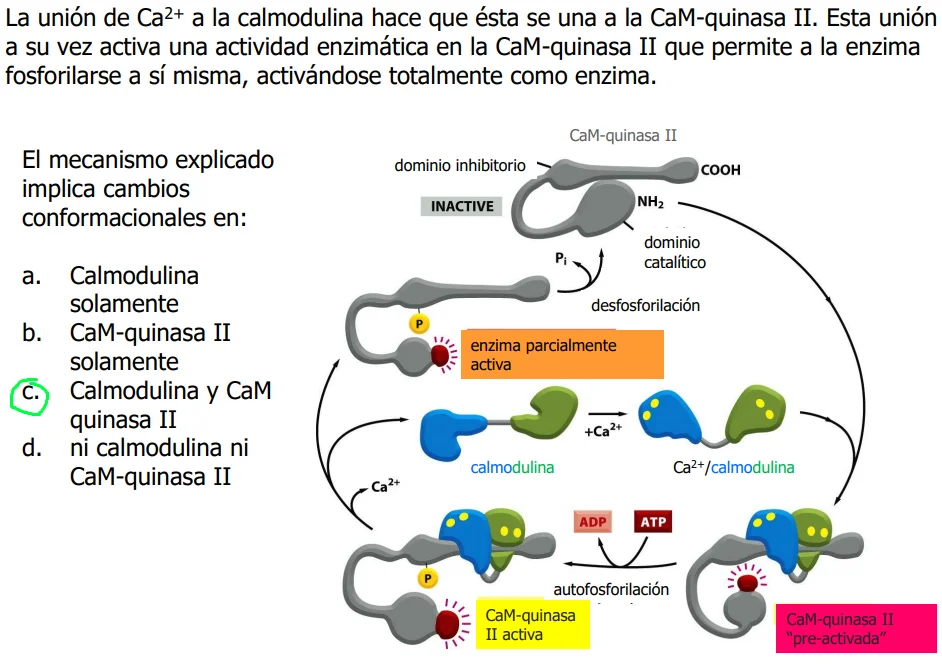
Otro tipo es el CAMBIO de CONFORMACIÓN
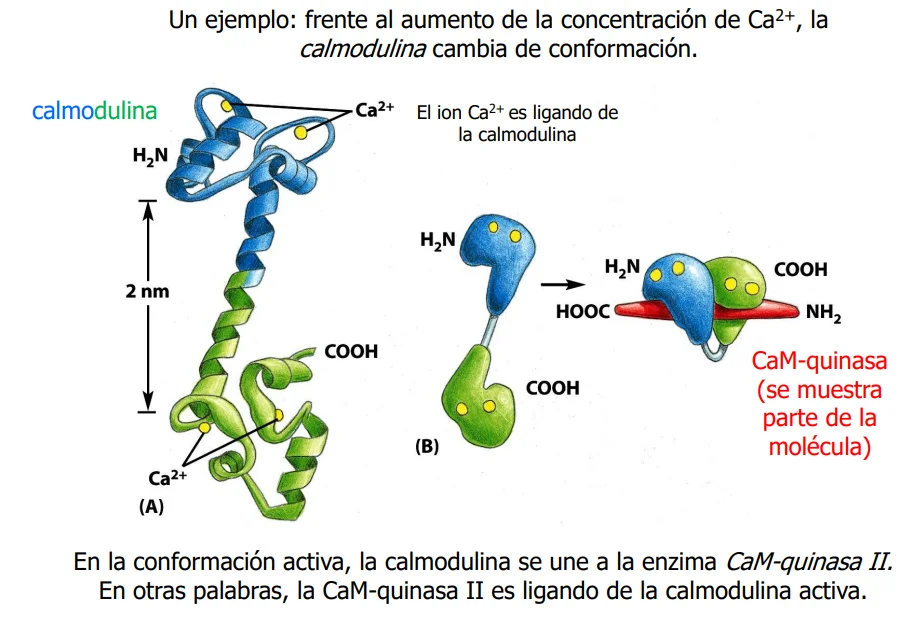
Puede llevar a ciclos enzimáticos.
Son las moléculas que son enteramente, o casi enteramente Hidrofóbicas. 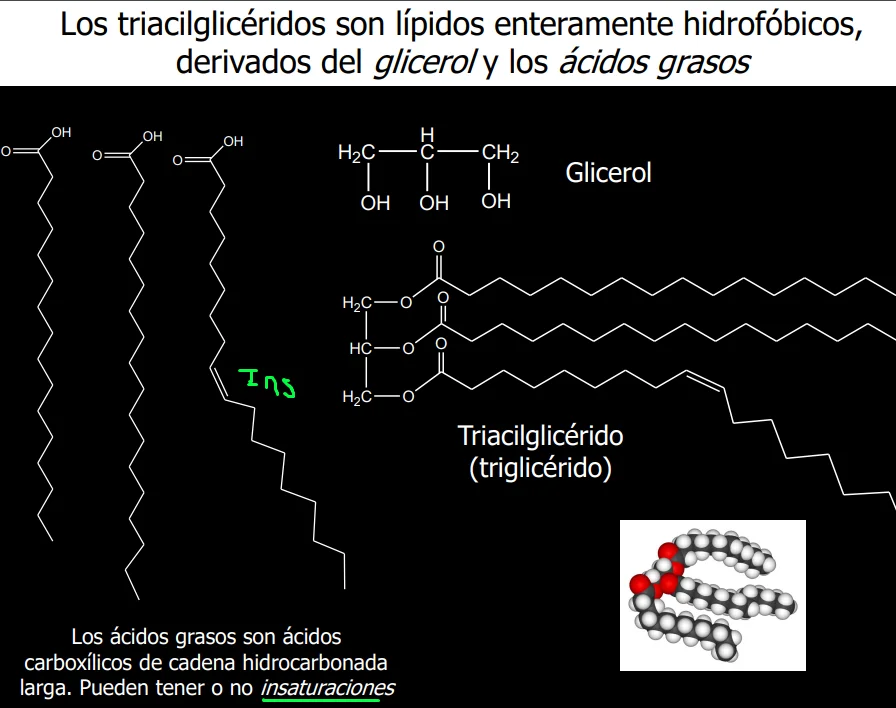
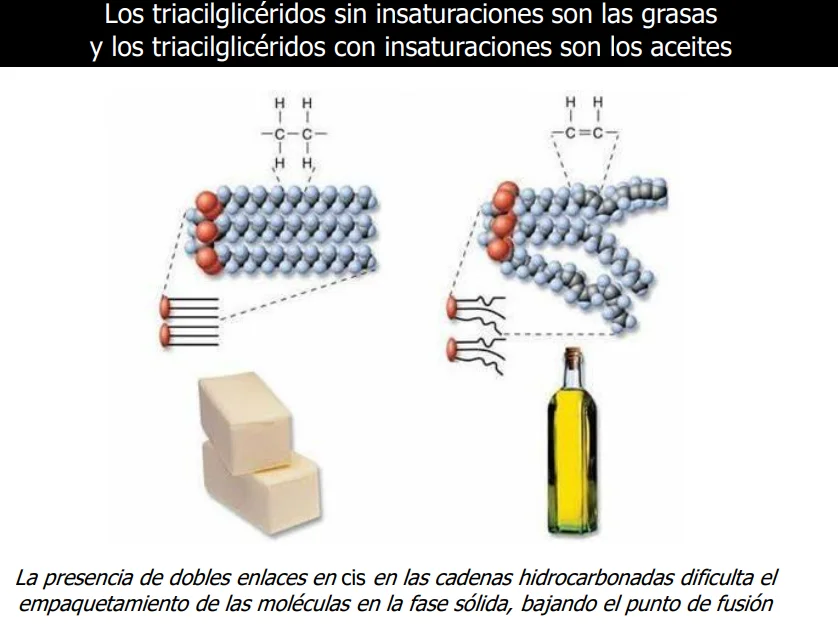
Los Triacilglicéridos forman gota lipídicas en medio acuoso.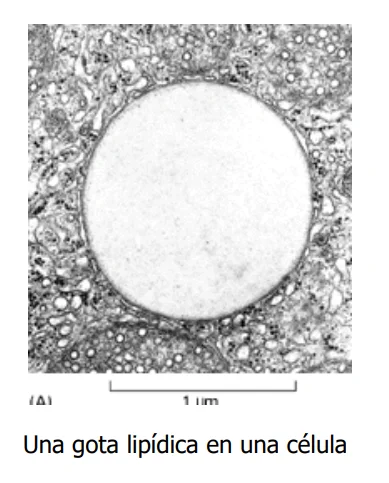
Los fosfoglicéridos son como los triacilglicéridos, pero una de sus "patas" está esterificada con un fosfato, y este unido a una cabeza polar.
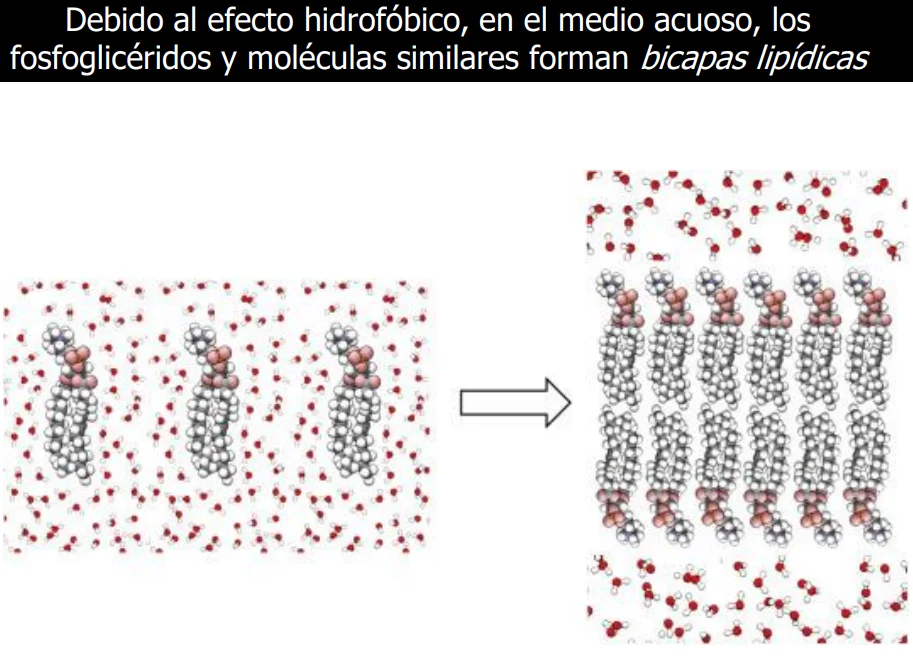
Los anfipáticos de una sola cola hidrofóbica forman Micelas 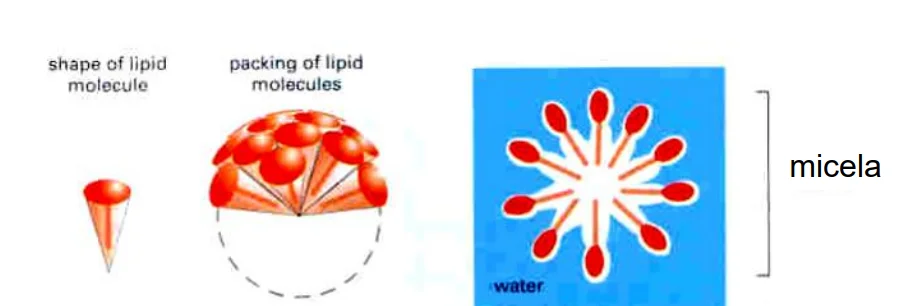
Las Bicapas lipídicas tienden a cerrarse sobre si mismas, separando dos espacios de agua.
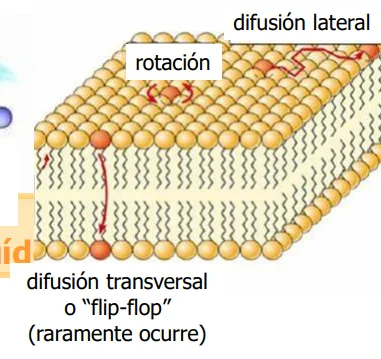
Los fosfolípidos en una capa lipídica pueden moverse y rotar, pero solo en la capa en la que se encuentran. Por su capacidad de movimiento las membranas no son rígidas.
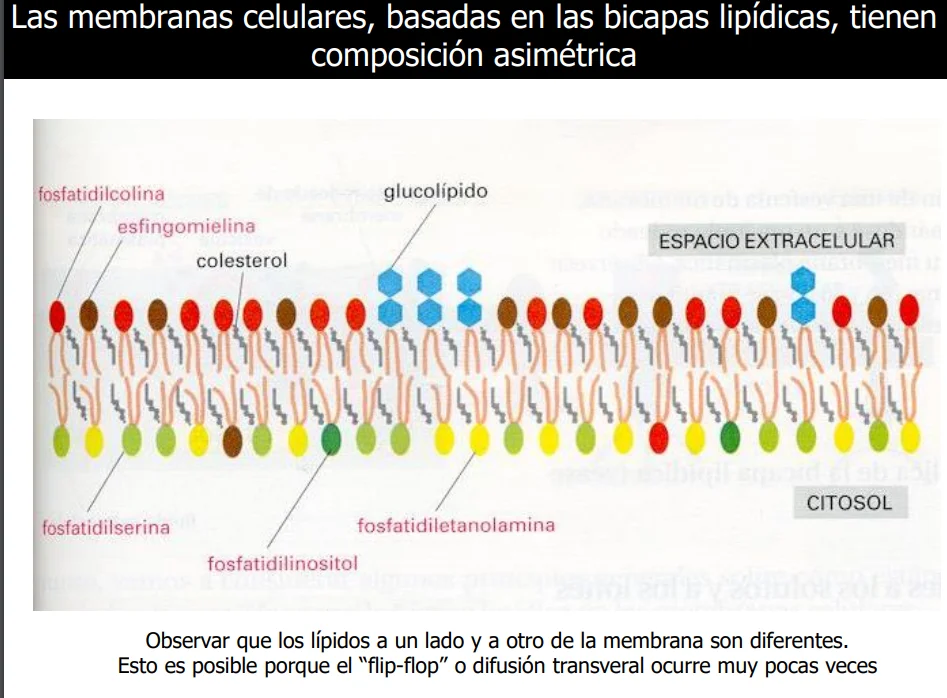
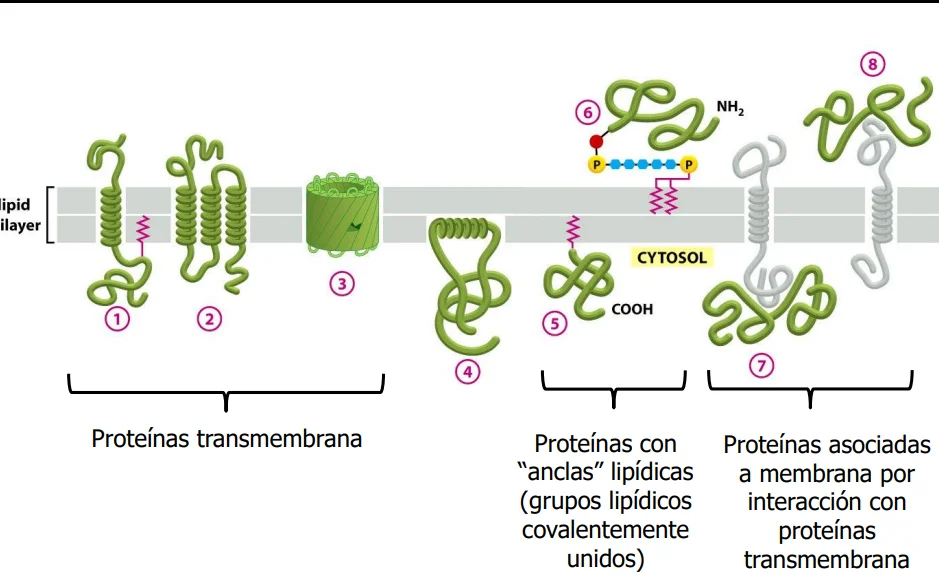
Las membranas celulares, además de fosfolípidos tienen proteínas de varios tipos, las que son transmembranas exponen una superficie hidrofóbica. Aunque no todas las proteínas asociadas a la membrana son transmembrana.
Son estas proteínas las que le otorgan muchas de sus funciones a la membrana.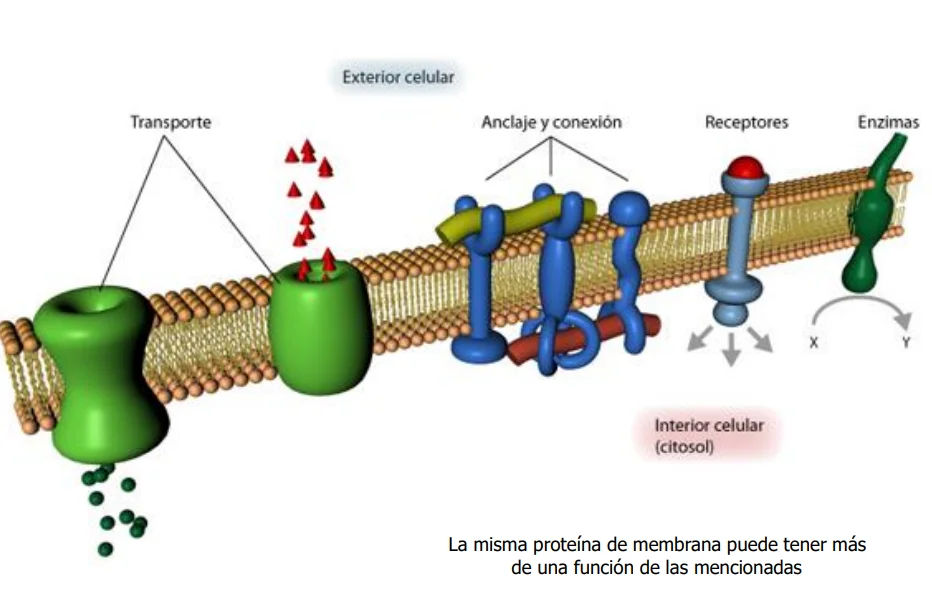
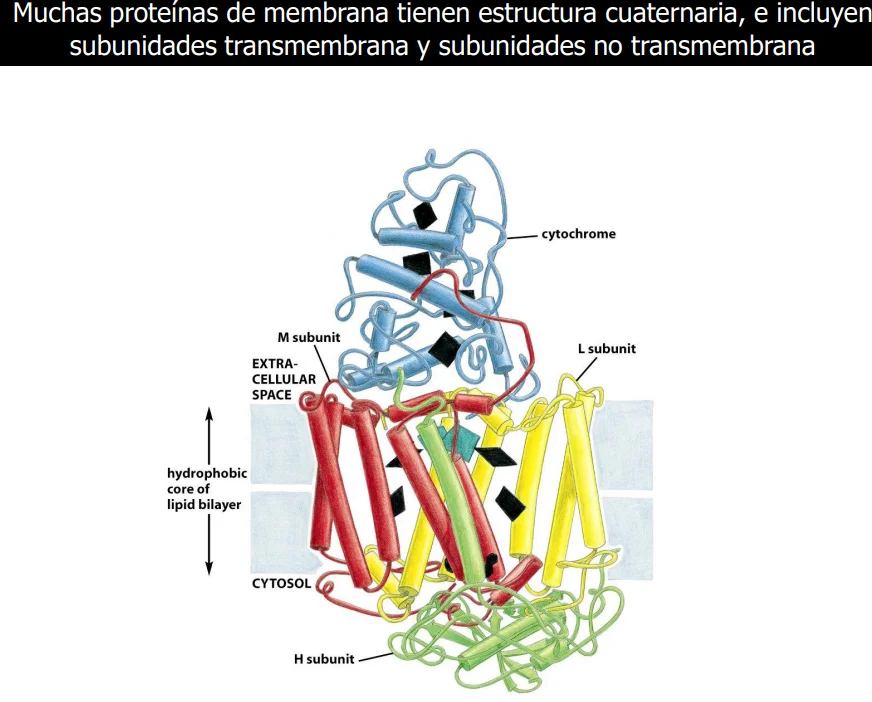
Muchas de ellas además tienen estructura cuaternaria, y tienen partes transmembrana y no transmembrana, con diferentes funciones.
El lado extracelular de las membranas tiene carbohidratos unidos covalentemente, el glicocálix, "como pelitos útiles para el reconocimiento de células."
Generalmente las proteínas tienen cierto movimiento por la capa, pero está limitado por la interacción con otras proteínas.