Bioquímica 2
Cadena Respiratoria
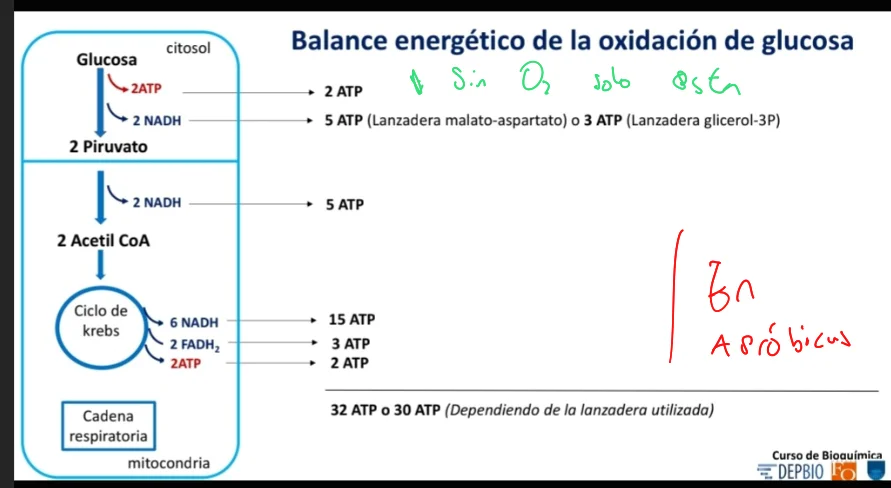
Todos los pasos oxidativos de la Glucolisis, degradación de Ácido Graso y aminoácidos, convergen a la Cadena Respiratoria ya que todas genera FADH2 y NAD-H.
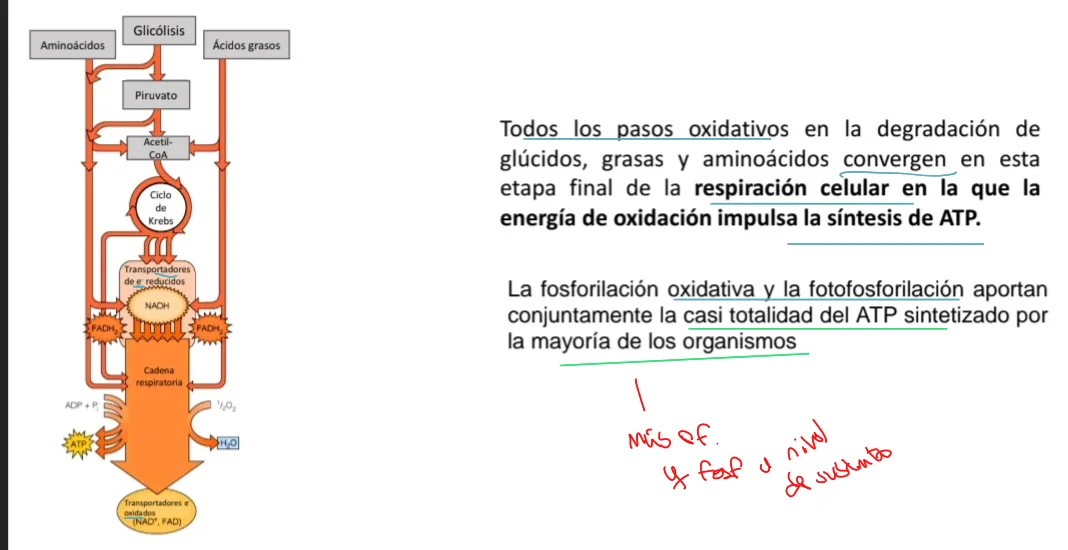
Esto lleva a la Fosforilación Oxidativa que da la mayor cantidad de ATP en los organismos.
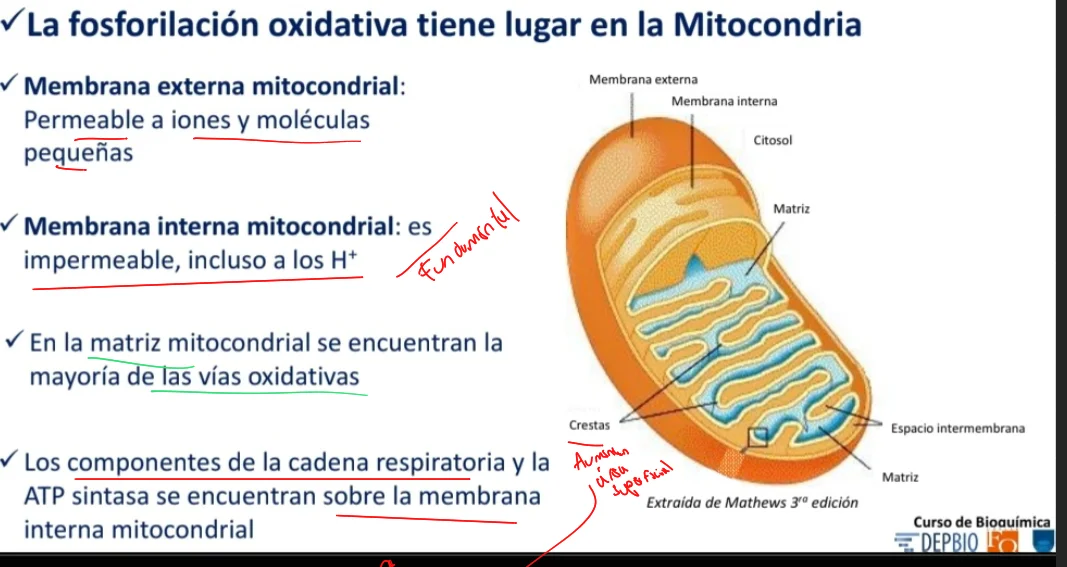
Tiene lugar en la Mitocondria, los componentes de la cadena respiratoria y la ATP Sintasa están en la Membrana, y se aprovechan de que es impermeable, incluso aProtones.
Para poder hacer la Fosforilación Oxidativa se requiere un Gradiente de Protones, que se consigue con la Cadena Respiratoria:
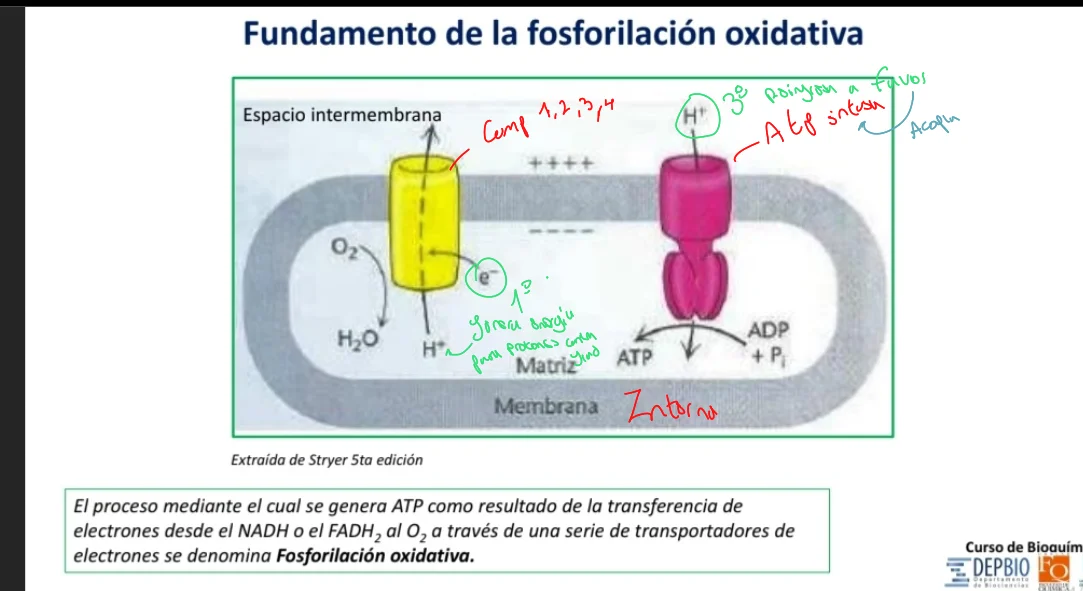
La Cadena Respiratoria básicamente recibe los Electrones de las vías oxidativas, y los aprovecha para bombear protones:
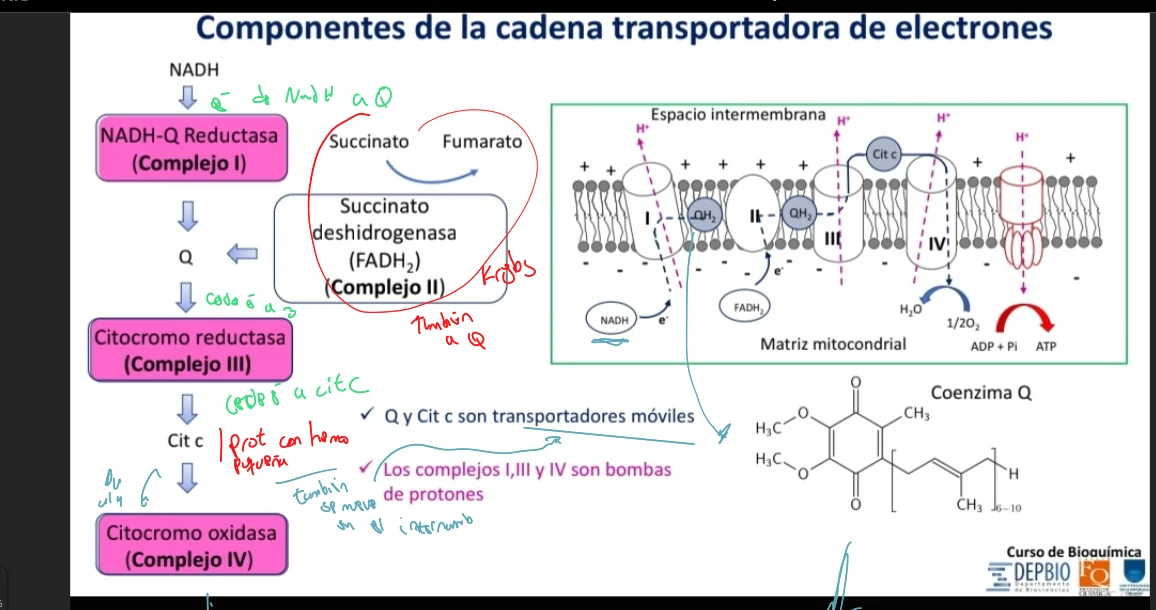
Y como aceptor final tiene al Oxígeno que lo reduce a Agua.
Hay varios Transportadores de electrones, como NAD-H, Coenzima Q, Citocromos, o FADH2:
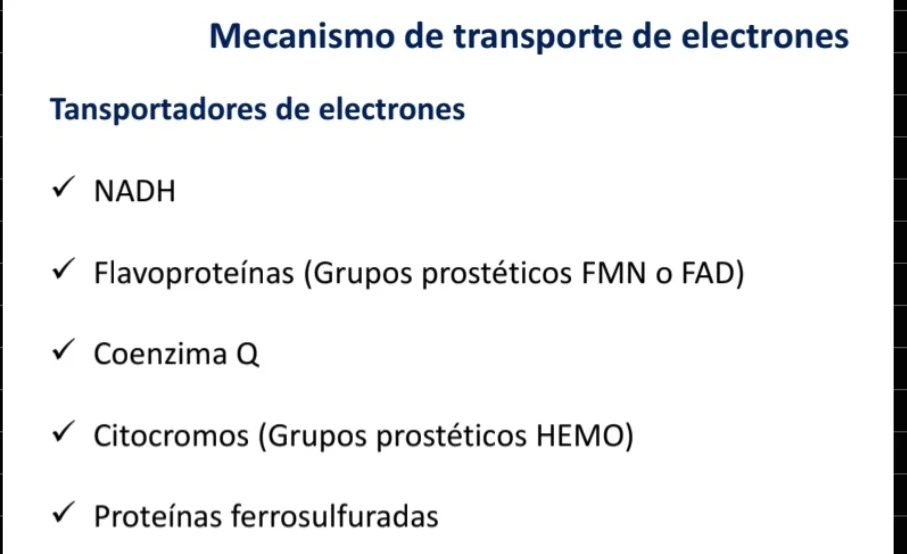
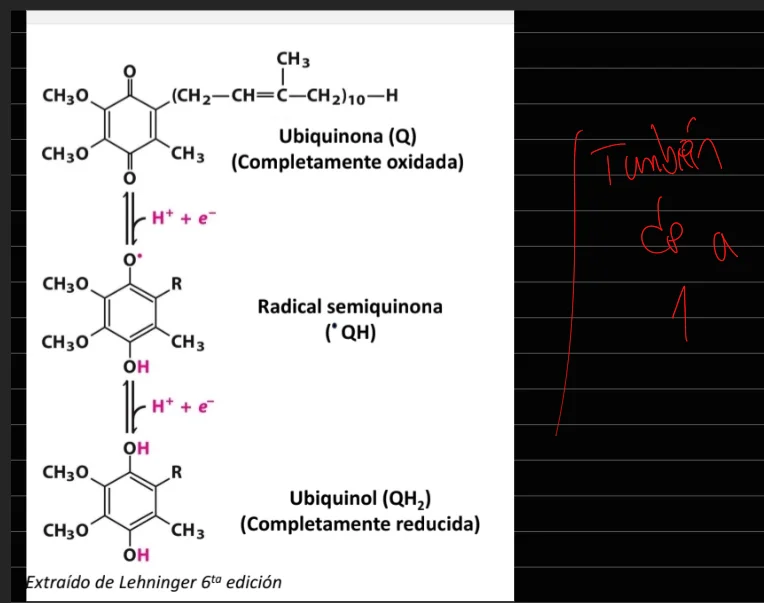
El NAD-H puede intercambiar 2 electrones, el FADH2 de a 1, pero también intercambia 2, igual que la Ubiquinona
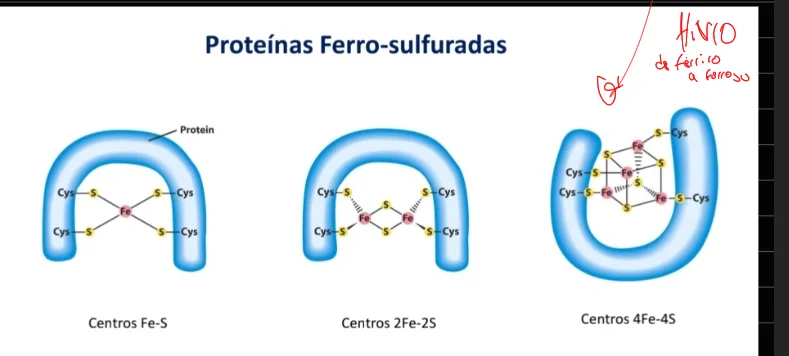
Sin embargo los Citocromos se basan en Grupo Prostético Hemo, por lo que cada uno solo mueve 1 Electrones. Esto va a tener importantes consecuencias.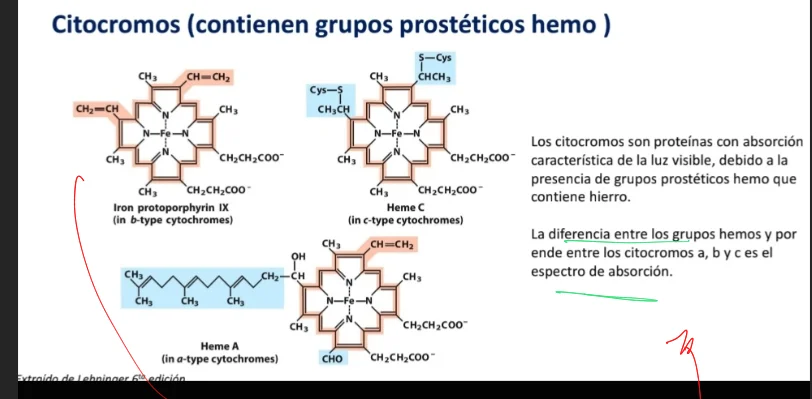
Los Electrones siempre van hacia donde hay mayor Potencial de Reducción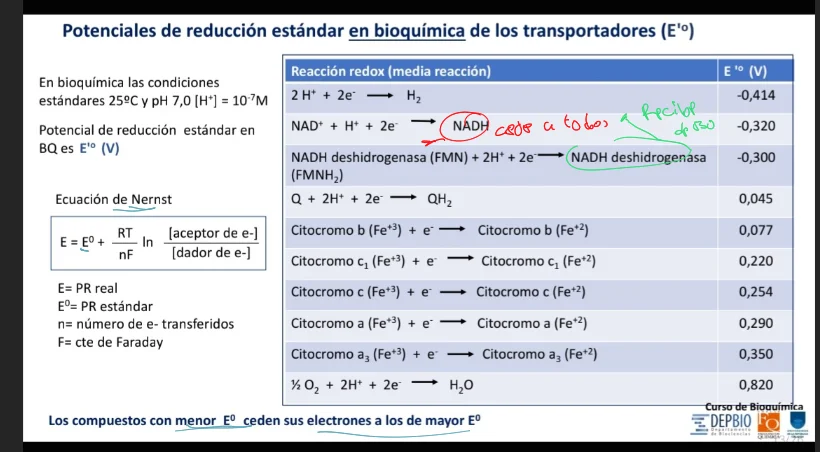
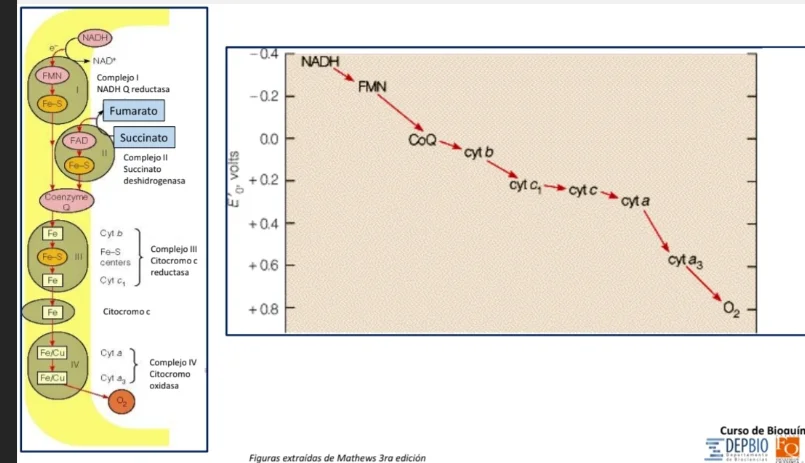
Esto hace que el cambio en Energía Libre de Gibbs sea positivo:
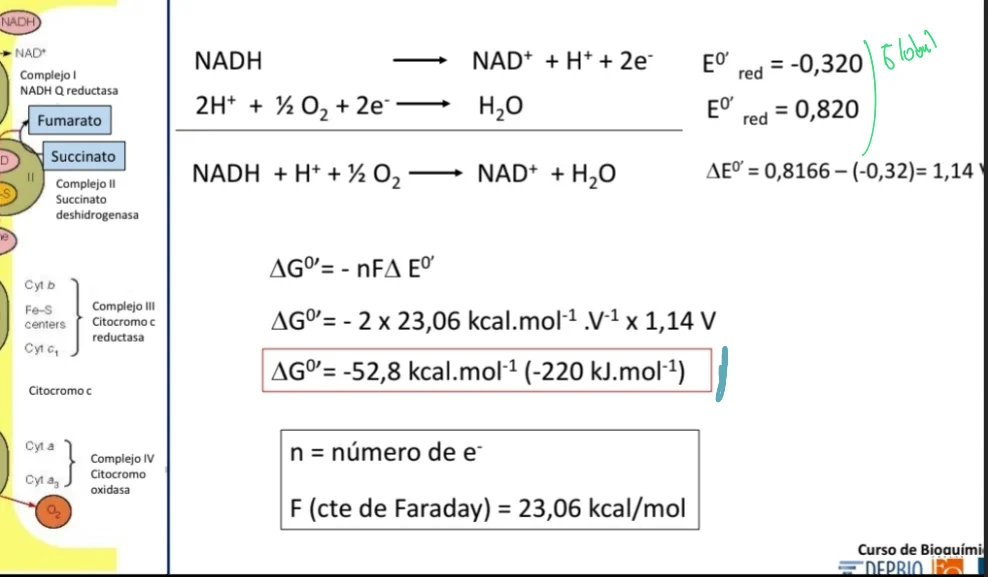
Y por lo tanto se pueda usar para bombear protones en contra del Gradiente.
El primer complejo involucrado en la Cadena Respiratoria es el encargado de recibir el NAD-H.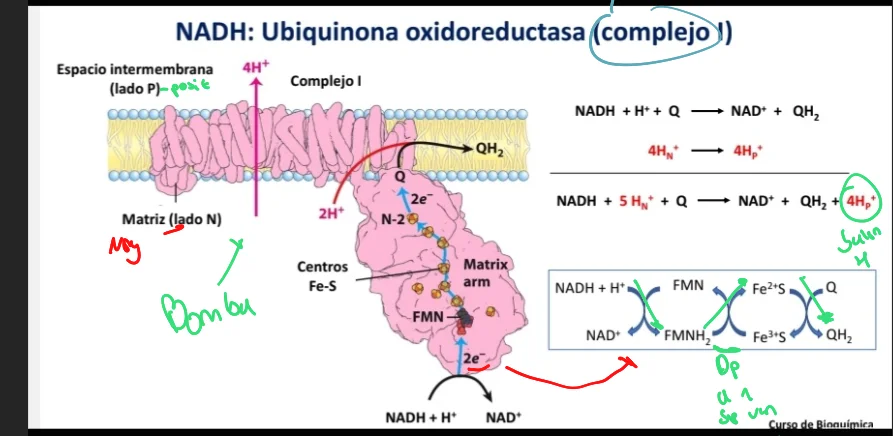
Como resultado bombea protones, y cede los electrones a una Coenzima Q.
El complejo 2 también se encarga de recibir Electrones, en este caso del FADH2, pero no bombea protones. También los cede a Coenzima Q.
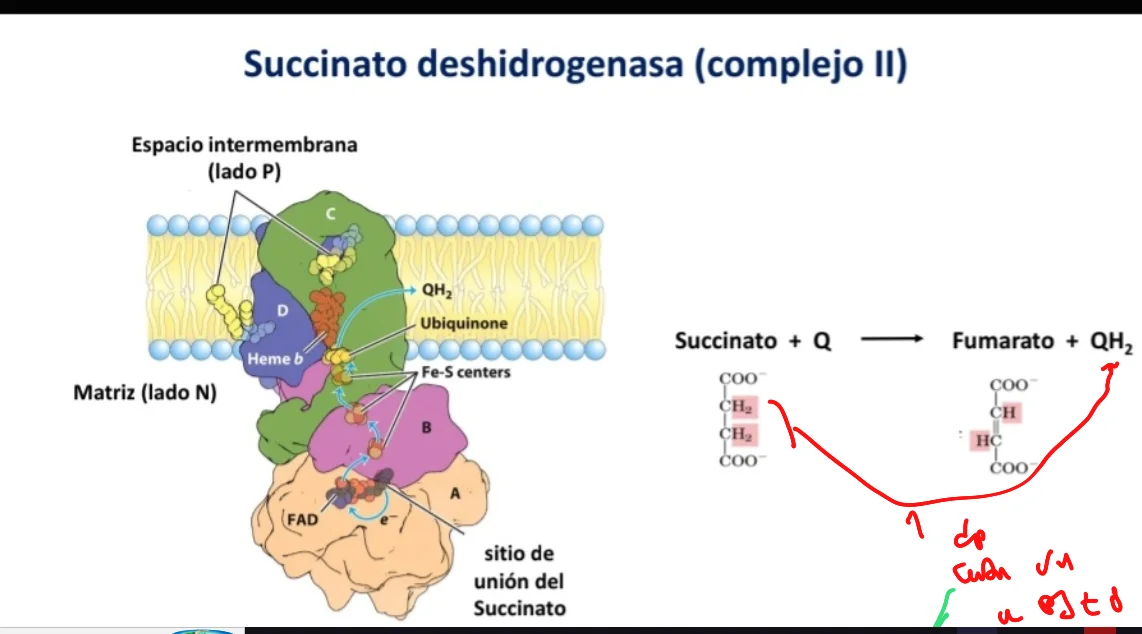
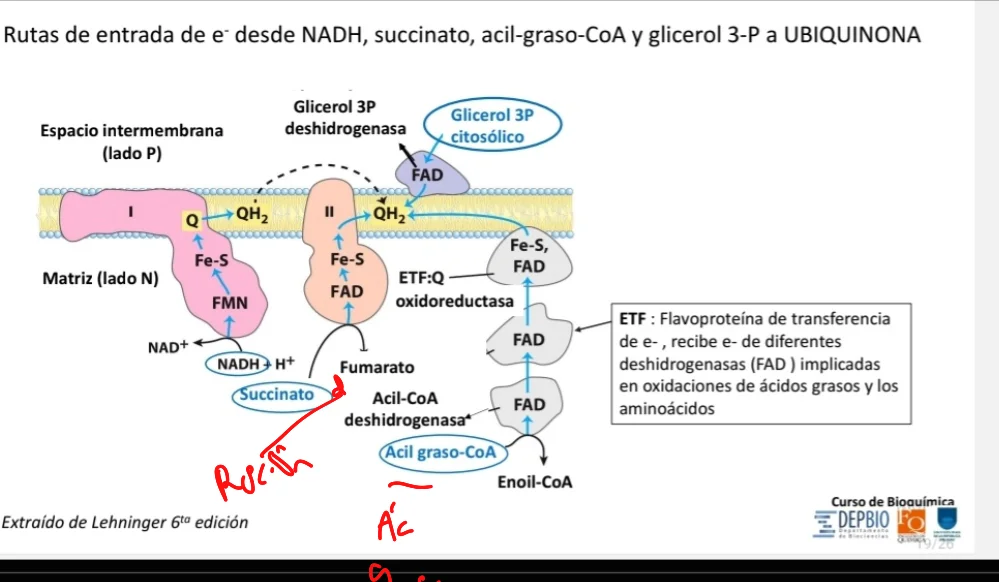
Hay varias enzimas que pueden ser tomadas como complejo 2, no solo la que recibe fadh2. Pero básicamente hacen lo mismo pero con otros metabolitos.
Luego en el complejo 3, llegan las Coenzima Q y se transportan sus Electrones a Citocromo C, Bombeando protones.
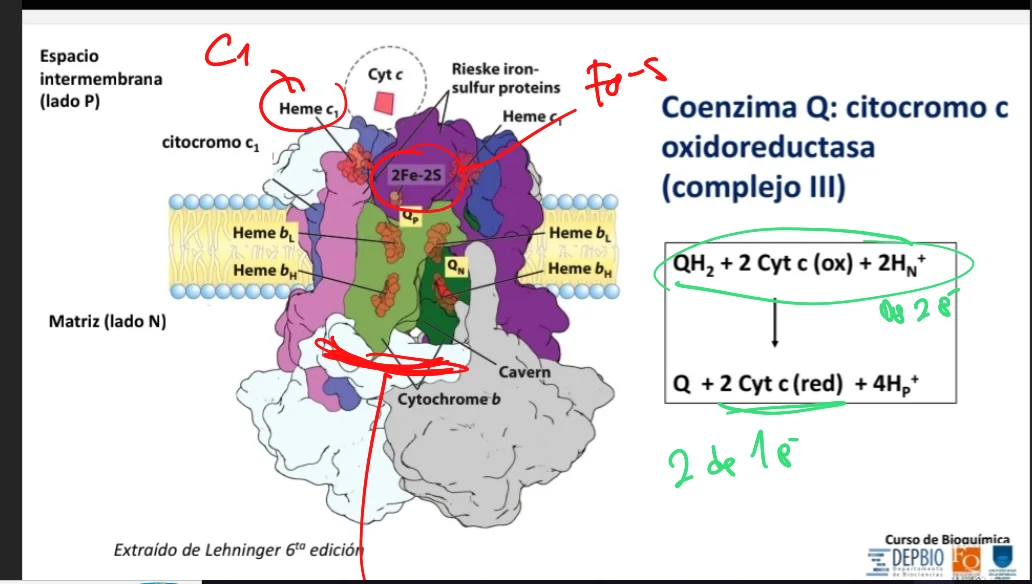
Pero como la Ubiquinona tranpsorta de a 2 y el citocromo de a 1 se da el Ciclo Q:
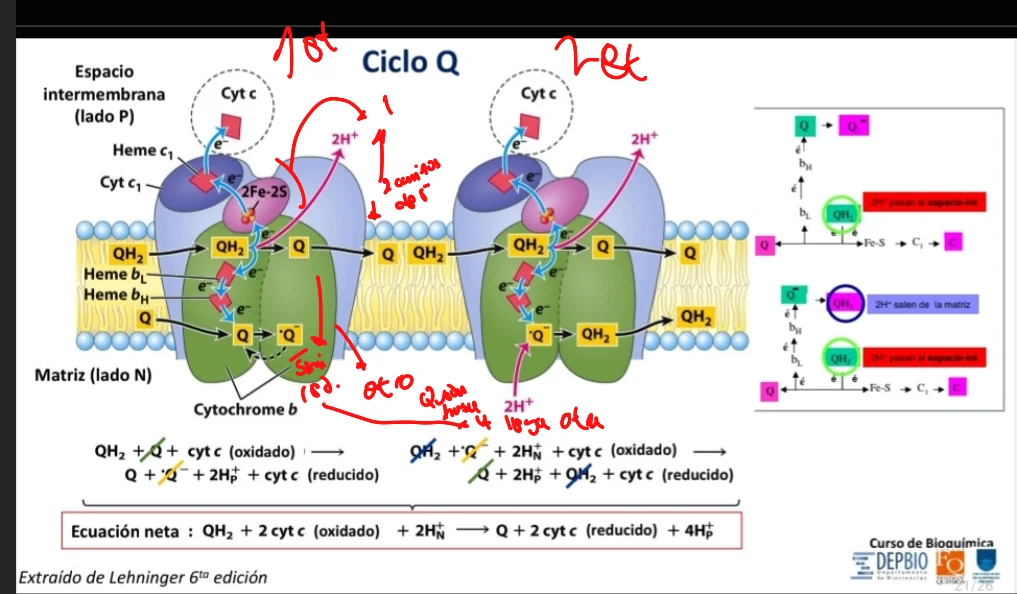
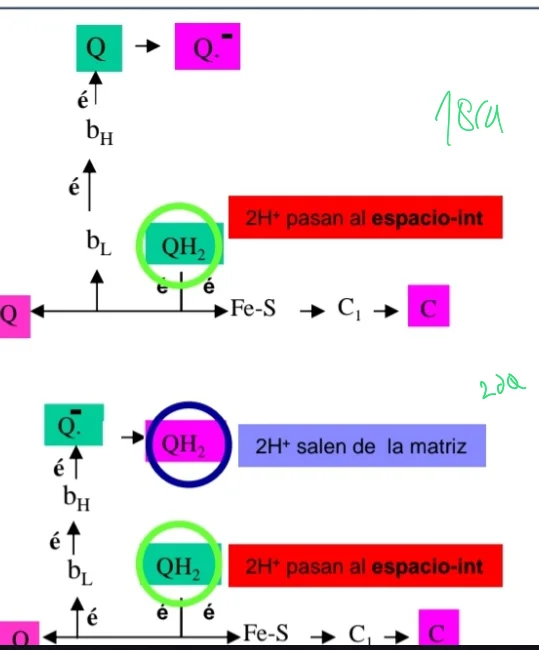
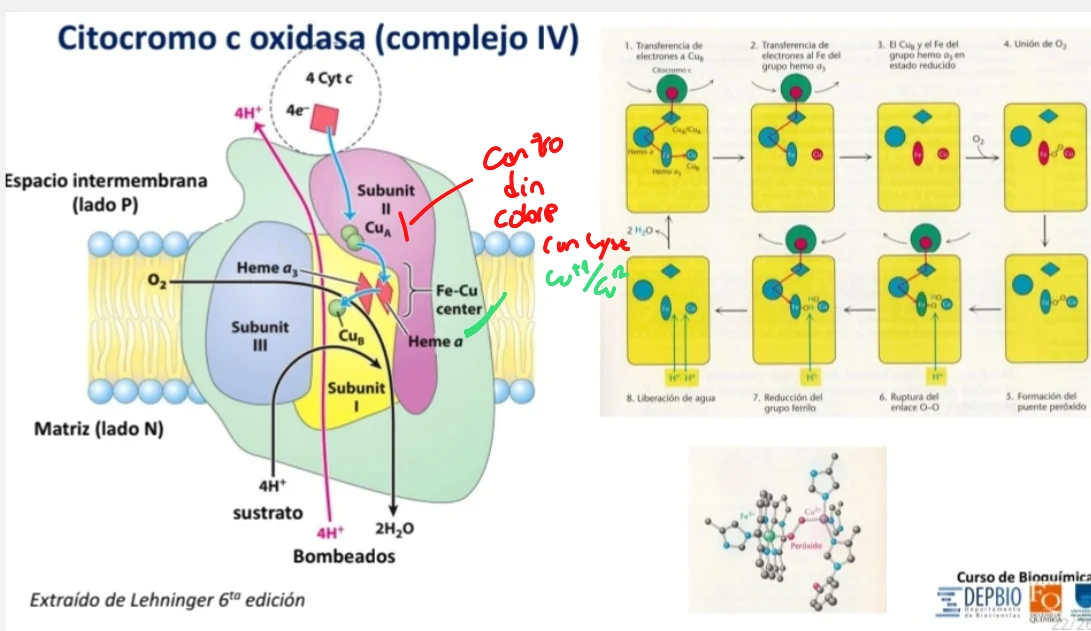
Y luego el complejo 4 recibe los electrones del Citocromo c y los cede al agua, también bombeando protones.
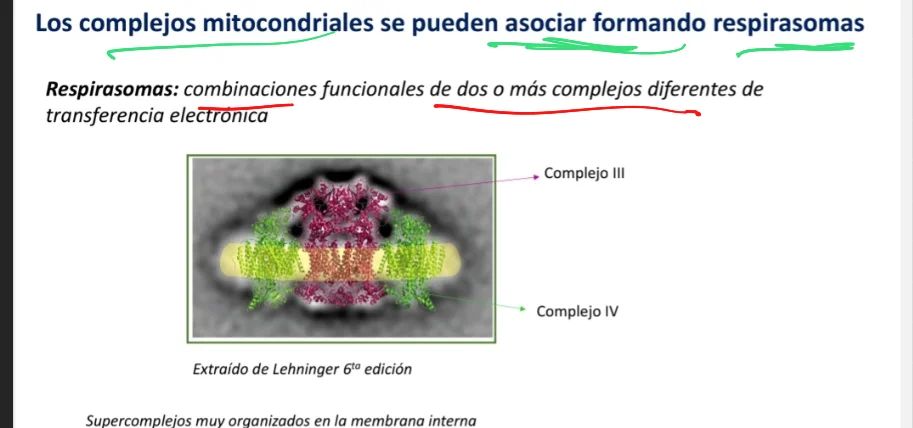
Los diversos complejos se asocian lo que aumenta mucho la velocidad, ya que disminuye la Difusión necesaria:
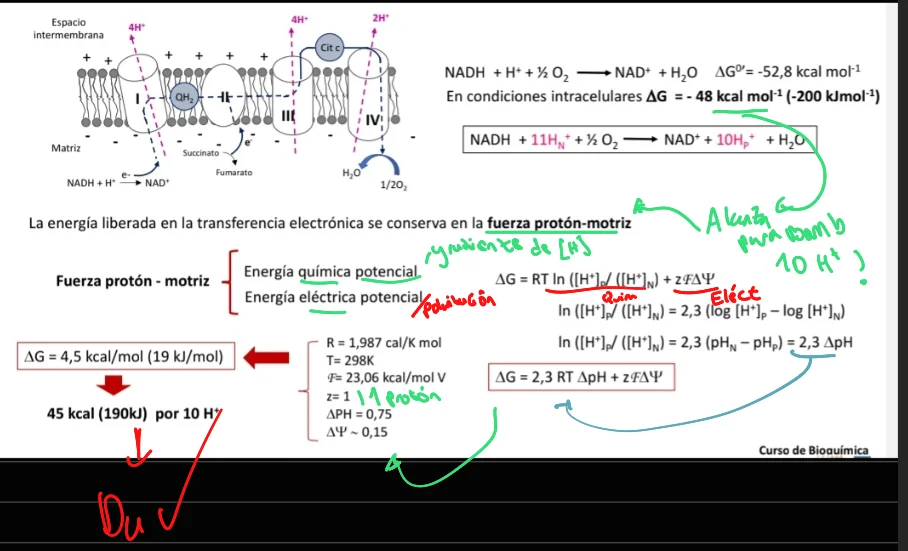
La Teoría Quimiosmótica dice que existe un acoplamiento entre la energía liberada por el transporte de Electrones y la síntesis de ATP. Y efectivamente existe y se ha probado que sin el Gradiente Electroquímico no sería posible la síntesis de ATP
Síntesis de ATP
La Enzimas encargada directamente de la síntesis de ATP es la ATP Sintasa, que está compuesta por dos unidades, una catalítica y otra canal de Protónes, conectadas por un tallo:
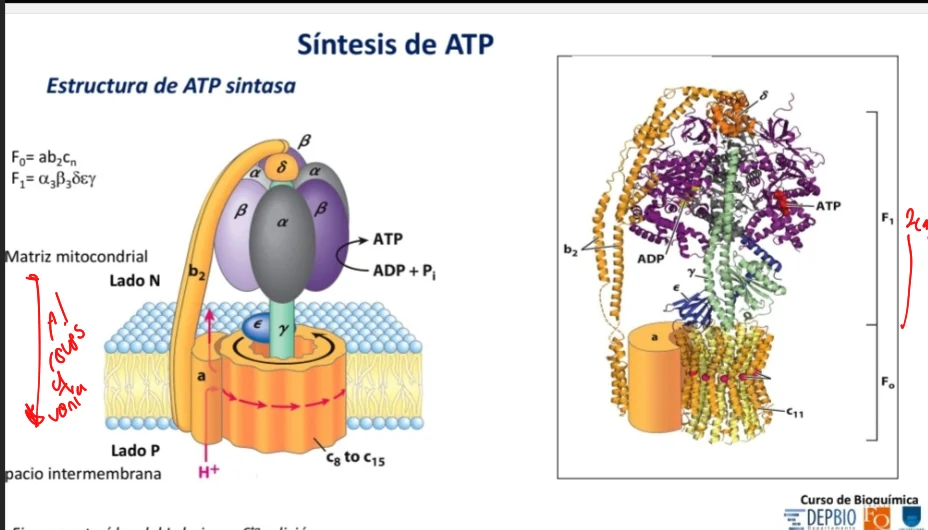
Además tiene un tallo que las conecta.
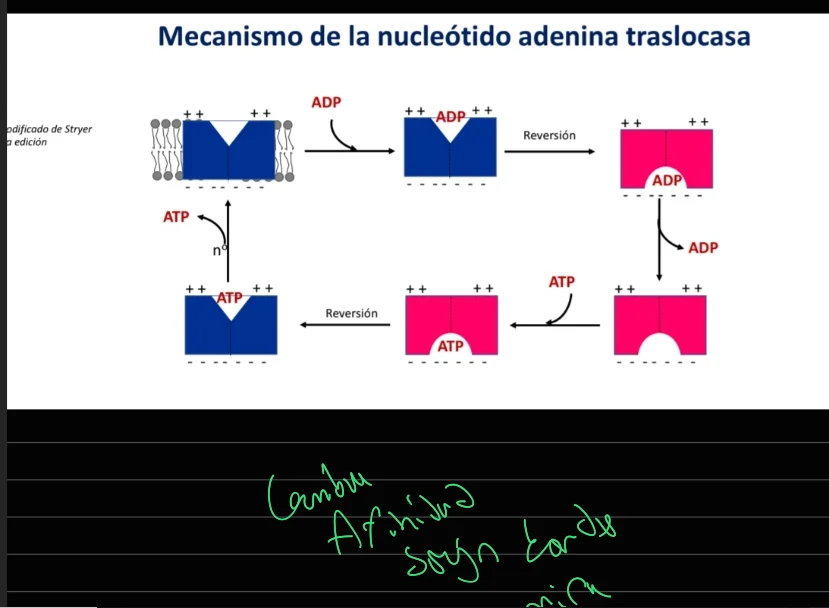
La parte catalítica son dímeros alpha beta que tienen distintas Conformación según si están en contacto o no con el tallo, y en cada conformación la subunidad beta tiene una Afinidad distinta por ATP y ADP:
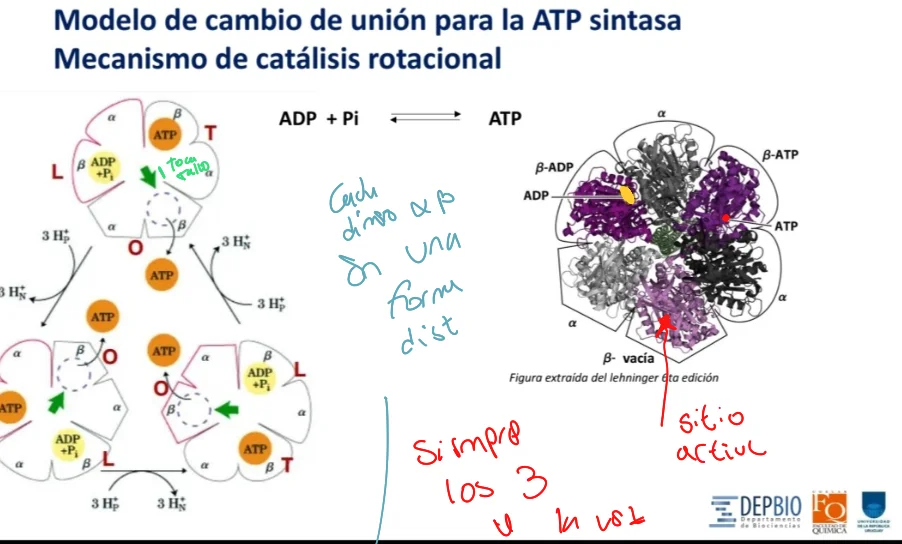
Para cada movimiento del tallo se requieren 3 Protones, y cada movimiento libera 1 ATP.
Pero en realidad requiere el reingreso de 4 Protones, 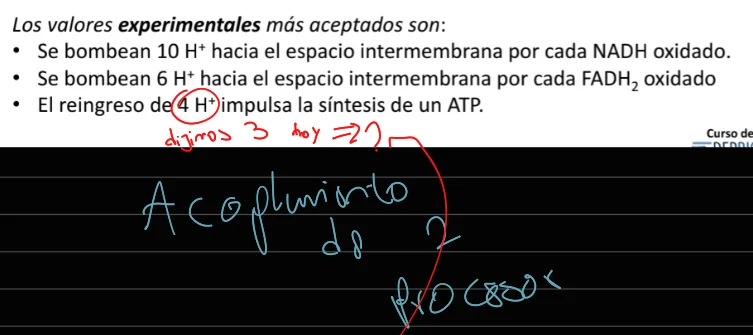
Ya que parte se consume para la entrada de Fosfato inorgánico,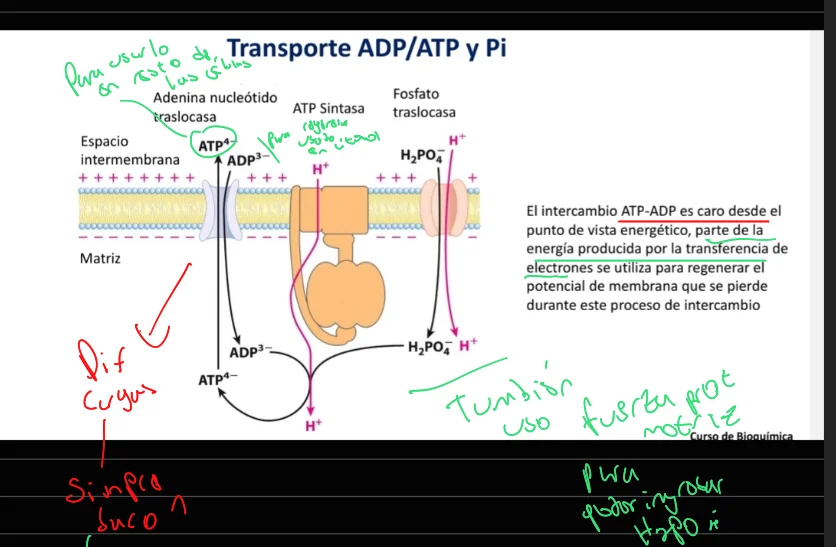
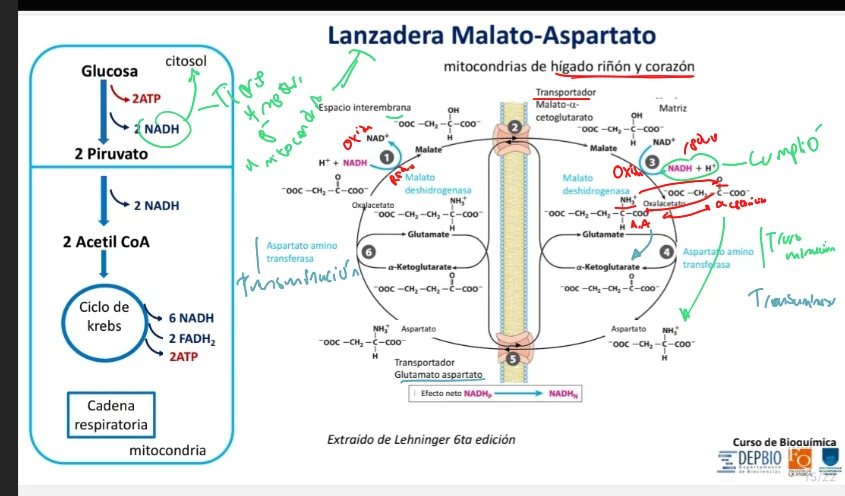
La Glucolisis libera el NAD-H en el Citosol, por ello es necesario una lanzadera que pueda hacer que entren indirectamente a laMatriz Mitocondrial . Es la Lanzadera Malato-Aspartato:
También se puede dar la Lanzadera Glicerol 3 Fosfato, que es más rápida pero menos eficiente.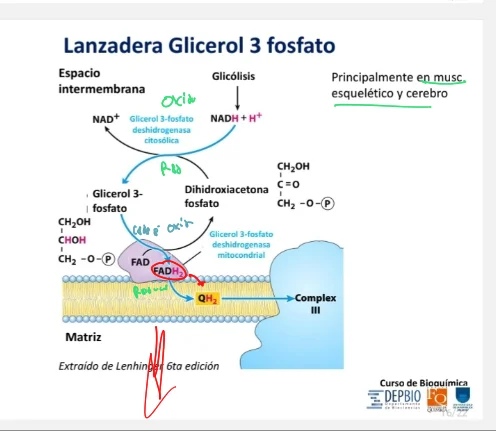
Es menos eficiente porque los ingresa por el complejo 2.
En todos los tejidos hay de las 2, pero cambia la abundancia de cada una.
Fotosíntesis
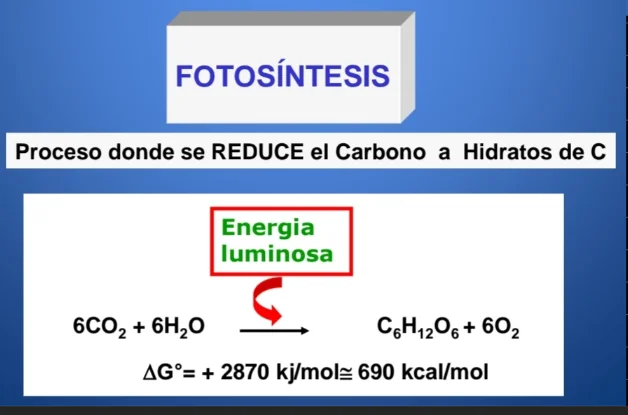
Las plantas, además de todo lo anterior, pueden producir ATP gracias a la Fotosíntesis.
Es como opuesta a los metabolismos oxidativos, ya que en este caso se aprovecha la Energía de la Luz para Reducir en vez de oxidar al Carbono. Lo que sin la Energía de la luz sería imposible.
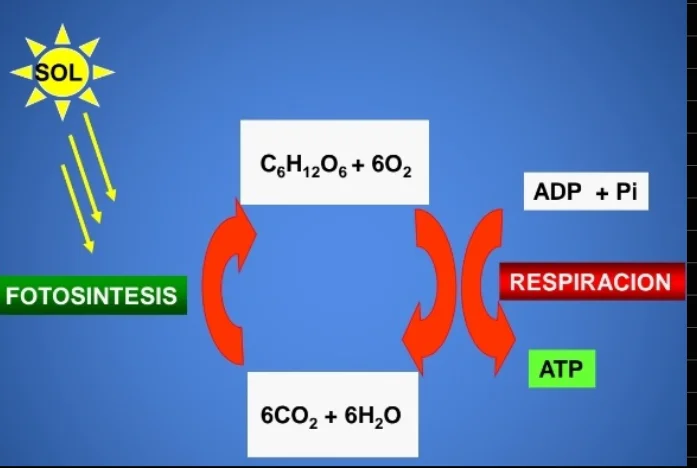
La Fotosíntesis se da en Cloroplasto que es similar a una Mitocondria:
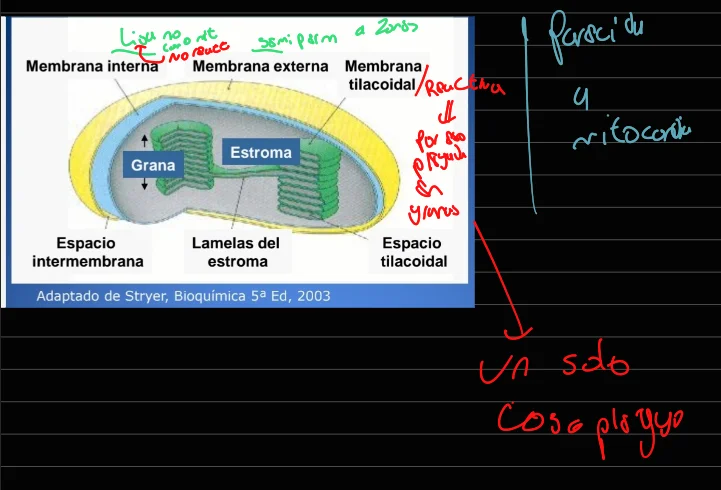
Tiene una Membrana que da al Tilacoide, y es allí donde se encuentra la ATP Sintasa.
Dependiendo del tipo de organismo pueden dar reacciones distintas pero en genérico se parte de Dióxido de Carbono y se dan hidratos de Carbono, Agua y Oxígeno.
Hay dos fases.
- Fase Clara donde se aprovecha la luz para sintetizar compuestos
- Fase Oscura donde se aprovechan los compuestos sintetizados en la Fase Clara para generar los Carbohidrato.
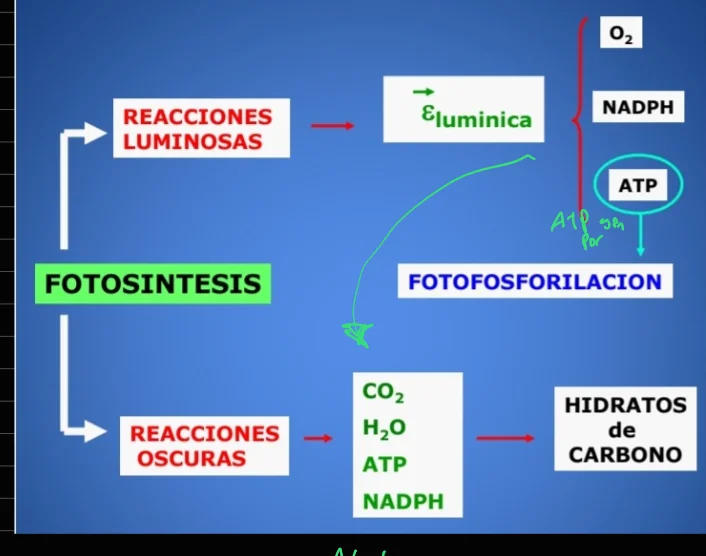
Fase Clara
En el Cloroplasto la ATP Sintasa está al revés de como estaría en la Mitocondria:
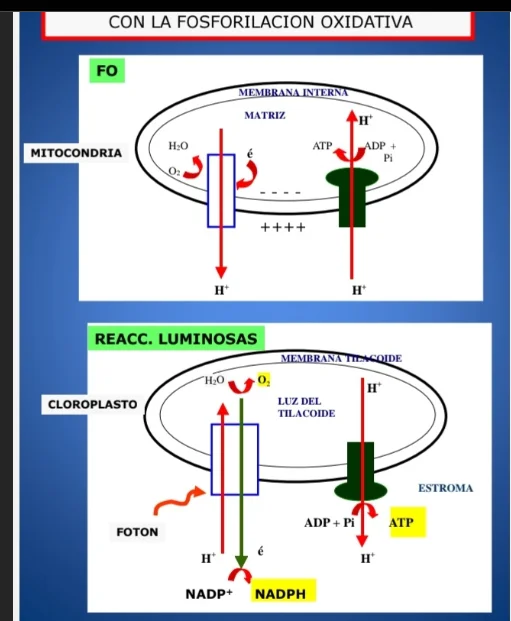
Pero el mecanismo es muy similar.
Otra diferencia es que los protones son transportados en Anti porte con Magnesio por lo que no hay un Potencial Electrostático solo Potencial Químico.
La Luz tiene distinta Energía dependiendo de la Longitud de Onda que tenga.
Las plantas tienen Pigmentos que les permiten absorber la Energía del Espectro visible y un poco de Infrarrojo. Ya que Ultravioleta sería demasiada Energía y podría ser perjudicial, y más Infrarrojo sería demasiado poca Energía.
Para poder cubrir todo ese espectro tiene distintos compuestos Cromóforos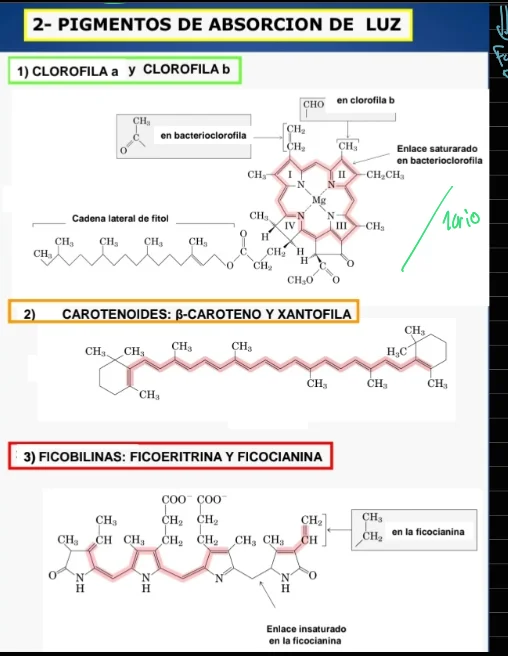
Y se organizan en Fotosistemas, donde Pigmentos antena captan la Energía, excitan sus Electrones y por Resonancia van excitando a los contiguos:
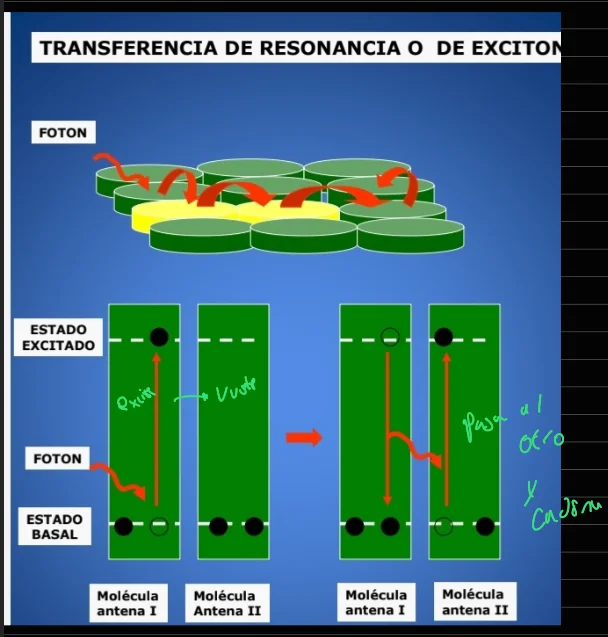
Hasta que finalmente llegan al Centro Reactivo donde una Clorofila que absorbe esa Energía y cede su Electrones excitado a un aceptor, en ese paso se da una Reacciones Redox lo que transforma la Energía lumínica en Energía Química.
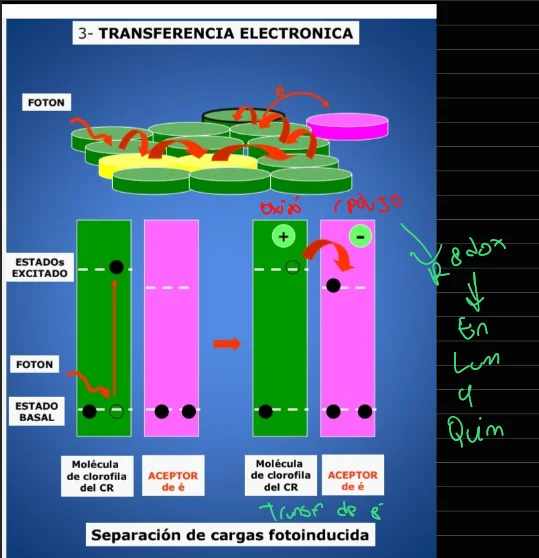
Luego un dador de Electrones repone el de la Clorofila para que pueda seguir funcionando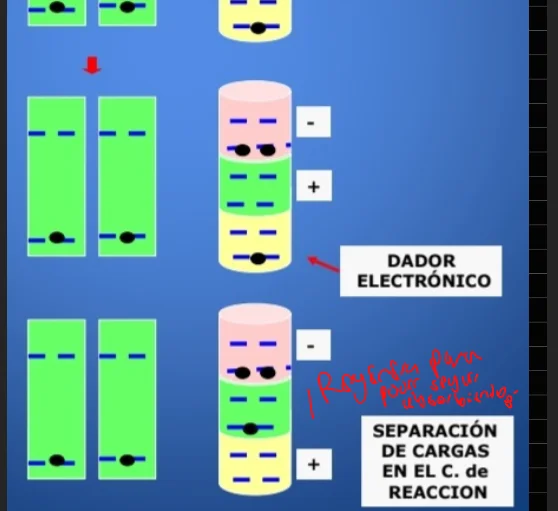
Hay dos Fotosistemas acoplados, y cada uno absorbe a distintas Longitud de Onda. Además en el pasaje de uno a otro se genera el Gradiente de protones.
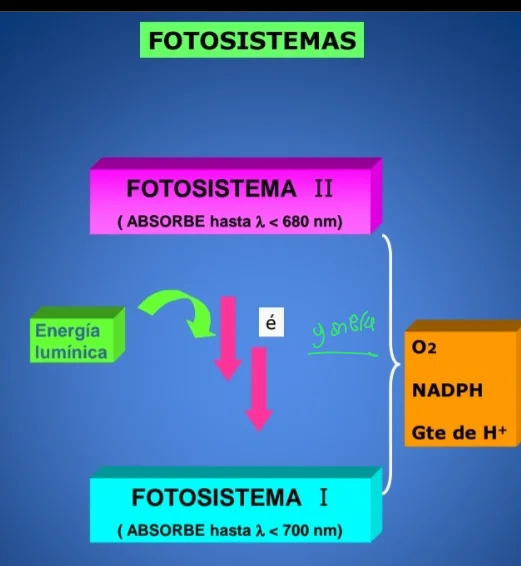
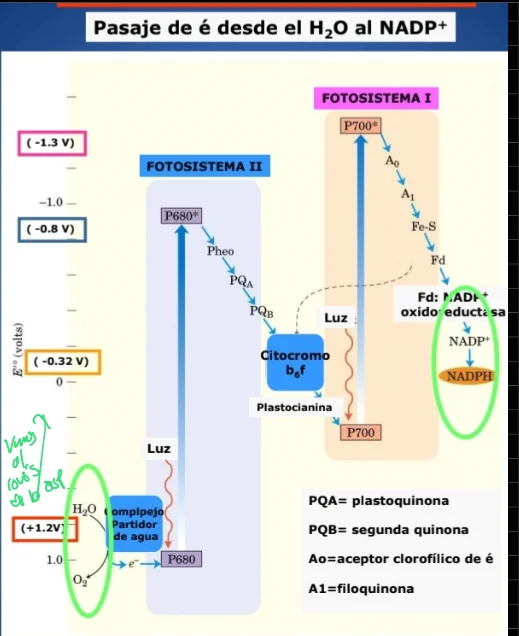
El Fotosistemas 2 tiene el Complejo partidor de Agua como dador de Electrones, y a la Plastoquinona como aceptora.
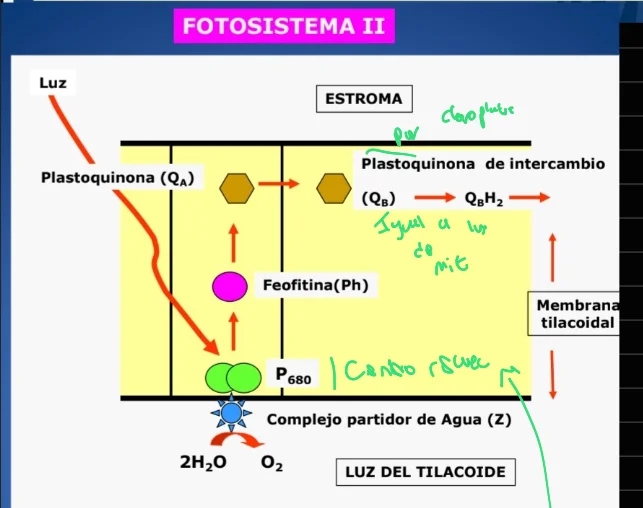
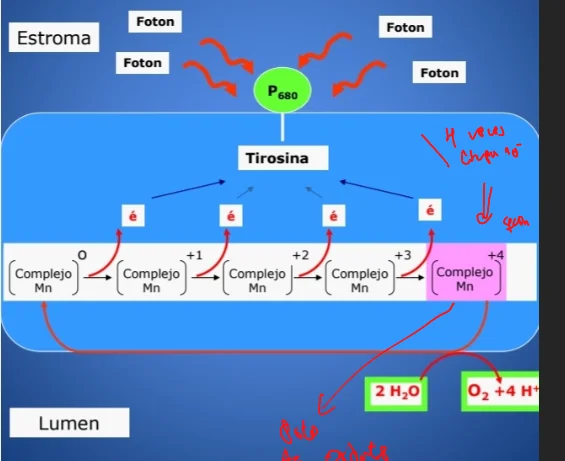
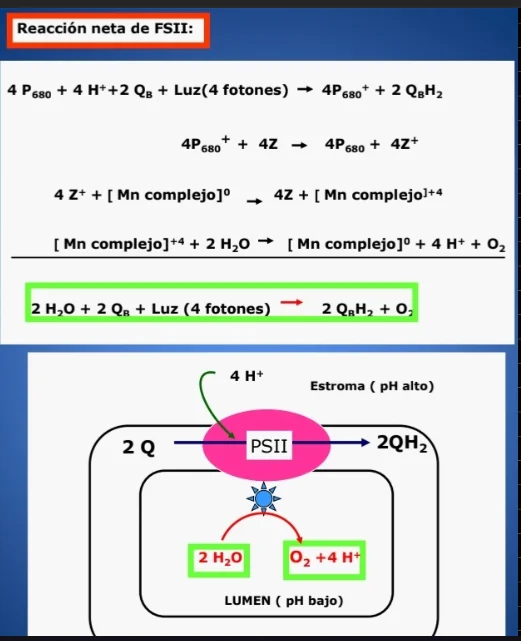
A la Plastoquinona le añade 2 Protónes desde el Estroma , lo que ya comienza el Gradiente, pero además el Complejo partidor de Agua genera 4 Protónes en el Lumen del Tilacoide además de los Electrones, lo que genera más gradiente aún.
Luego en el Complejo citocromo se da el ciclo q, que libera los Protónes al Lumen y da los electrones a la Plastocianina:
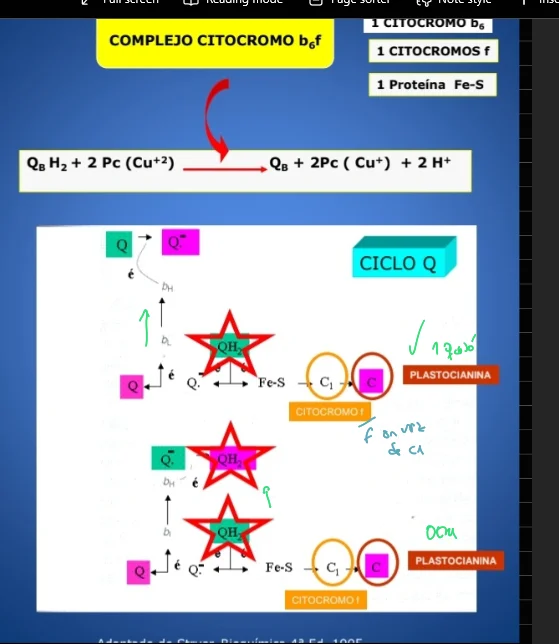
Además de bombear 2 protones, libera los 4 de 2 Plastoquinonas, por lo que libera 6 protones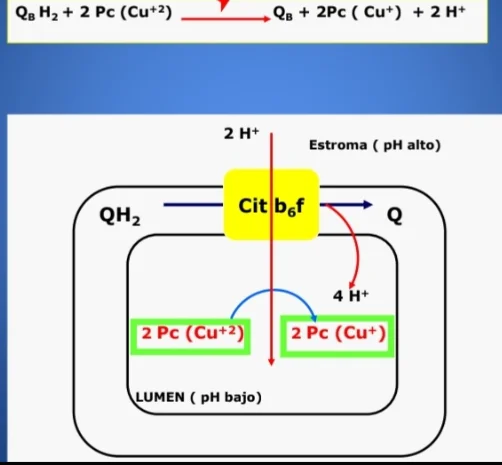
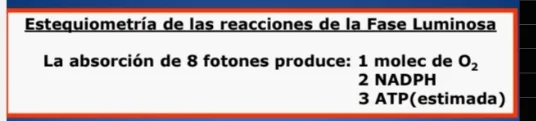
Luego las Plastocianinas llevan los Electrones al Fotosistemas 1, que termina haciendo NADPH:
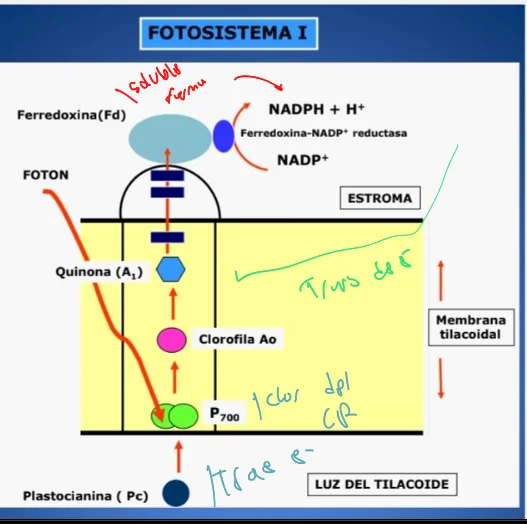
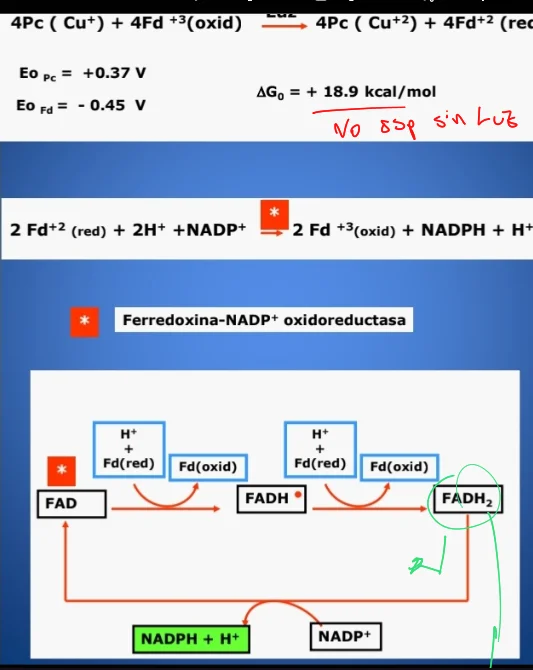
Tiene 2 formas de funcionar, dependiendo de lo que necesite, puede funcionar de forma acíclica con todo:
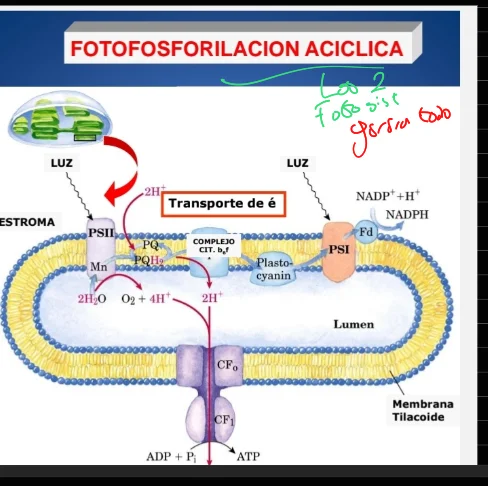
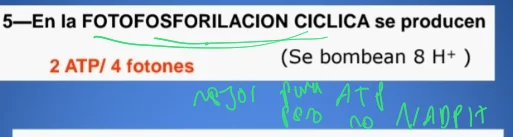
O cíclica con solo el Fotosistemas 1 y el Complejo citocromo:
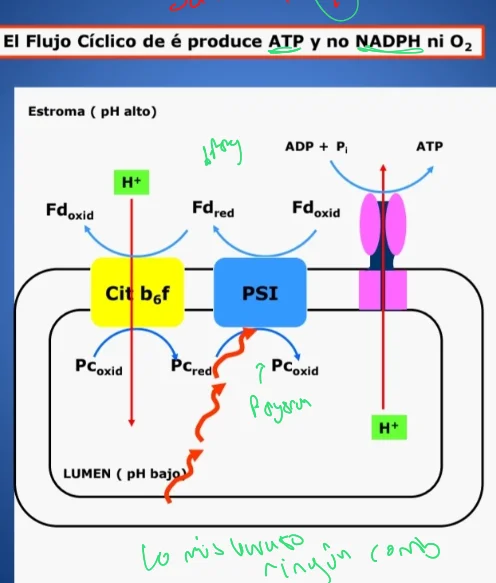
Que solo da ATP pero no requiere ningún combustible, solo Energía lumínica.
Fase Oscura
En la Fase Oscura se da la Fijación del Dióxido de Carbono, en el Ciclo de Calvin:
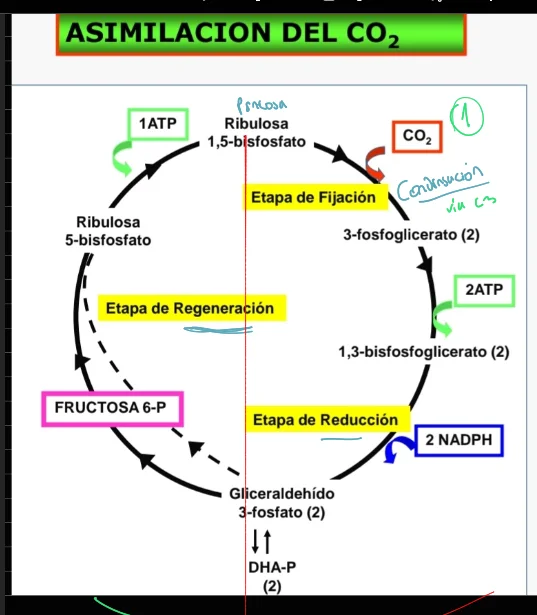
nosotros no tenemos las Enzimas de la derecha.
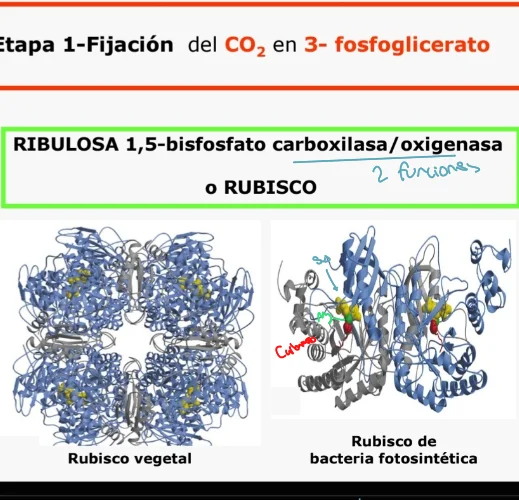
La primera en participar es la RUBISCO junto con Ribulosa 5-Fosfato:
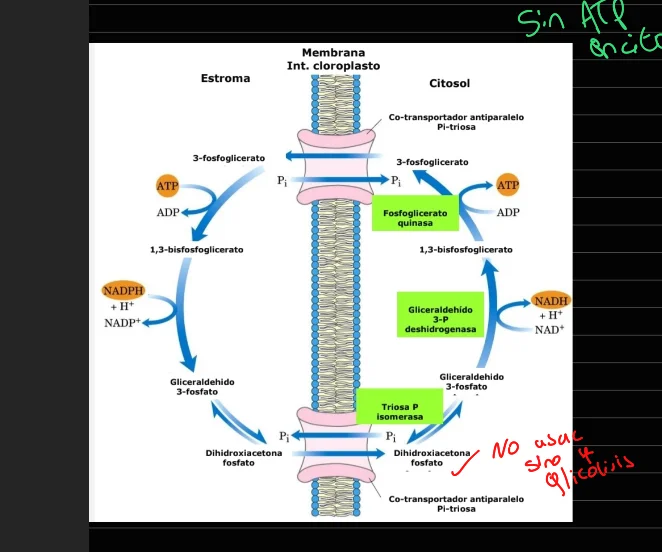
Luego de las primeras etapas se genera Gliceraldehído 3 fosfato, que puede ser usado como fuente inmediata de Energía en la Glucolisis y Ciclo de Krebs. También se puede convertir en Sacarosa o Almidón para reserva, o regenerar la Ribulosa 5-Fosfato para seguir con el Ciclo de Calvin, mediante la Vía de las pentosas fosfato.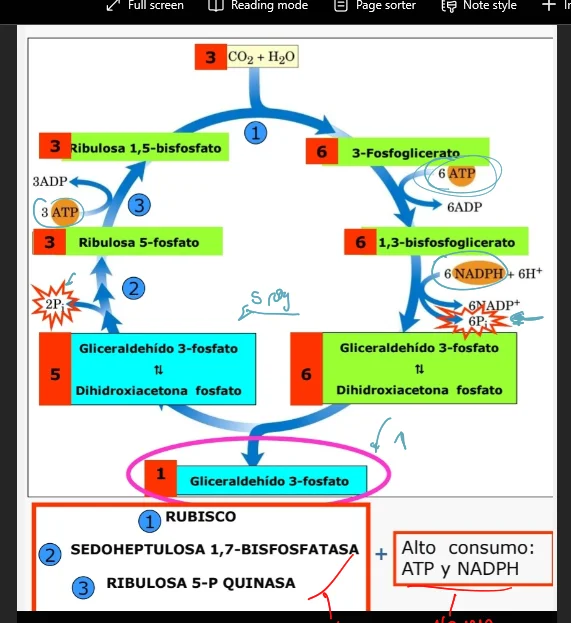
Es caro, requiere bastante consumo de ATP y NAD-H, pero vale la pena.
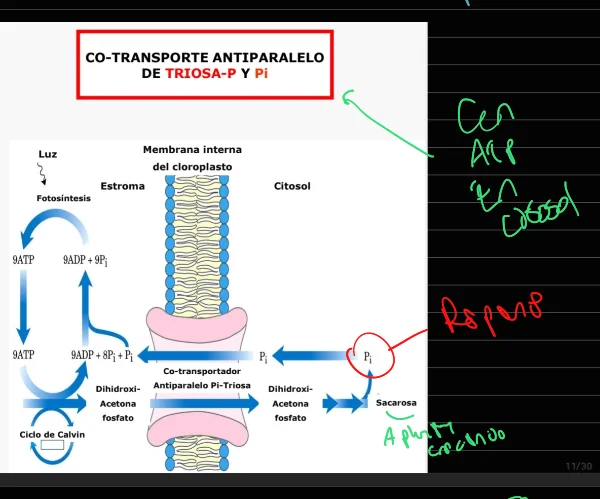
Cabe notar que consume 9 ATP pero libera 8 Fosfatos por lo que hay que reponer 1.
Esto se da porque hay cotransporte.
Regulación
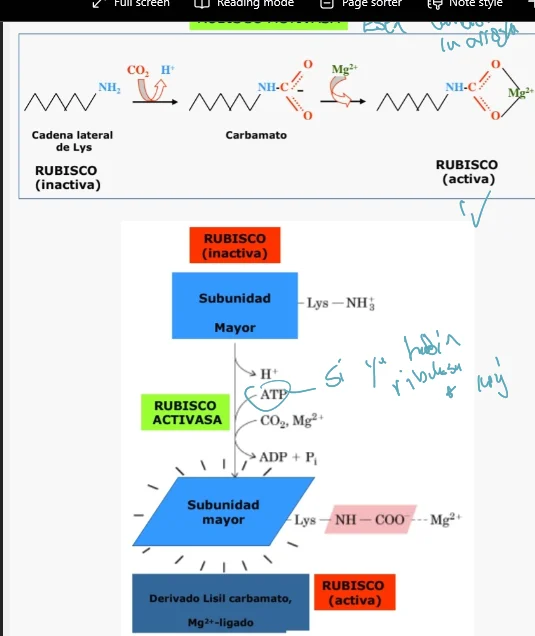
La RUBISCO está regulada por la RUBISCO Activasa, que le aporta un Magnesio que la estabiliza, además le añade un trozo carbonado:
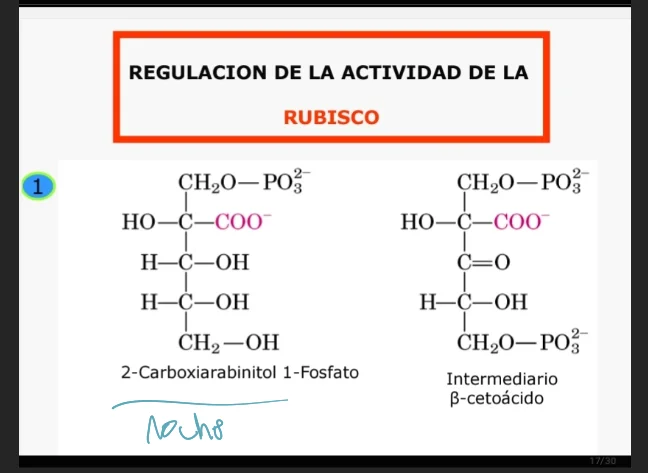
Además de noche surgen competidores, que con luz serían hidrolizados, pero de noche al ser similares a un intermediario, compiten e inactiva.
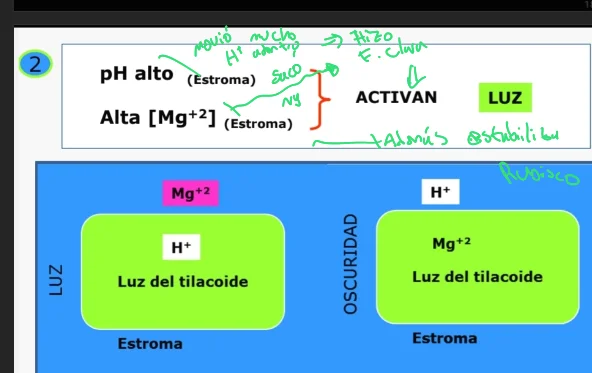
Además está regulada por el pH y la Concentración de Magnesio. Tiene sentido porque son señales de fase clara.
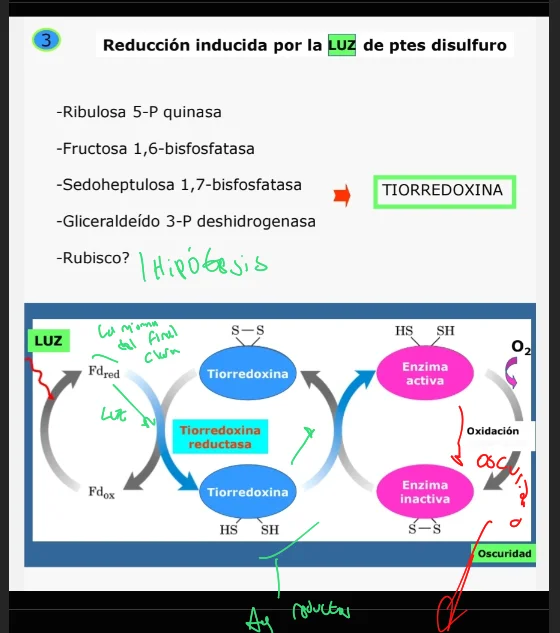
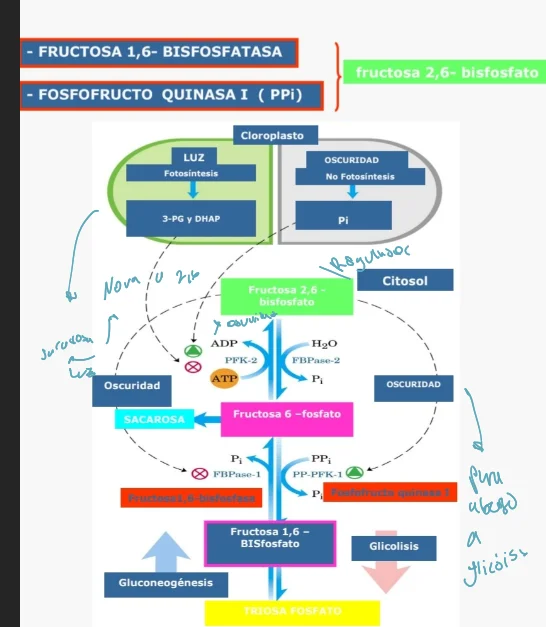
Además hay algunos puentes disulfuro que son reducidos con la luz, lo que activa a ciertas Enzimas:
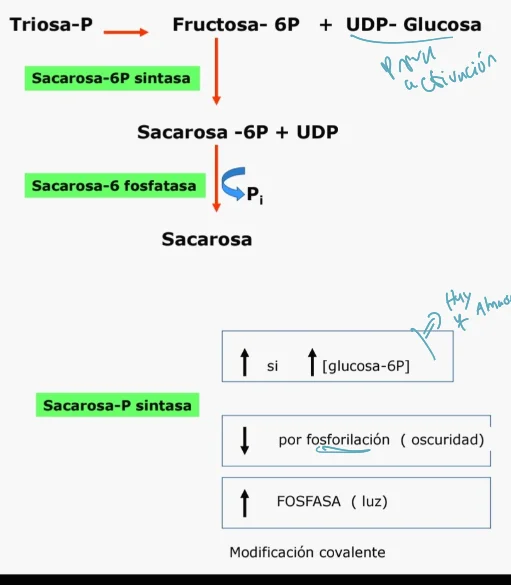
La síntesis de Sacarosa también está regulada:
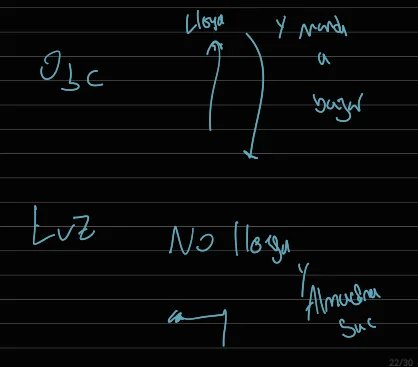
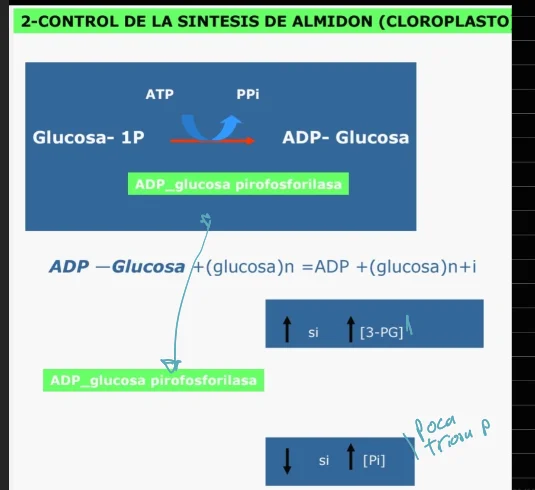
Igual que la síntesis del Almidón:
Fotorespiración
La RUBISCO también puede tener una actividad no deseada, la actividad oxigenasa, que hace todo lo contrario a lo deseado por la planta. Ya que consume oxígeno, y forma Fosfoglicolato, inútil para la planta, por lo que debe romperlo y gasta Energía y libera el carbono.
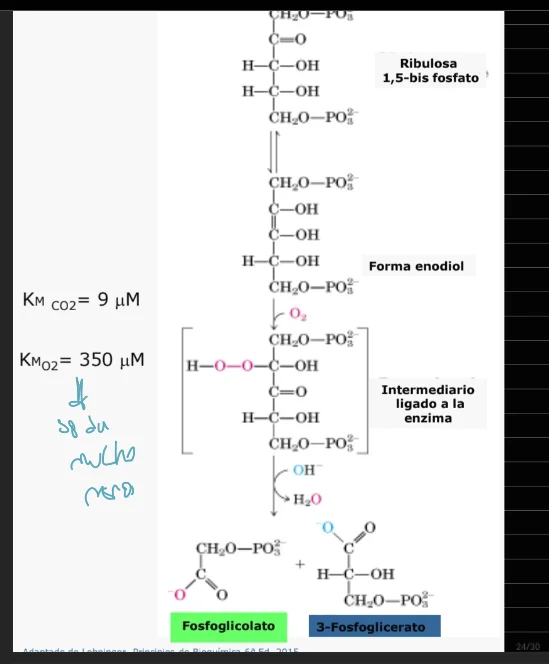
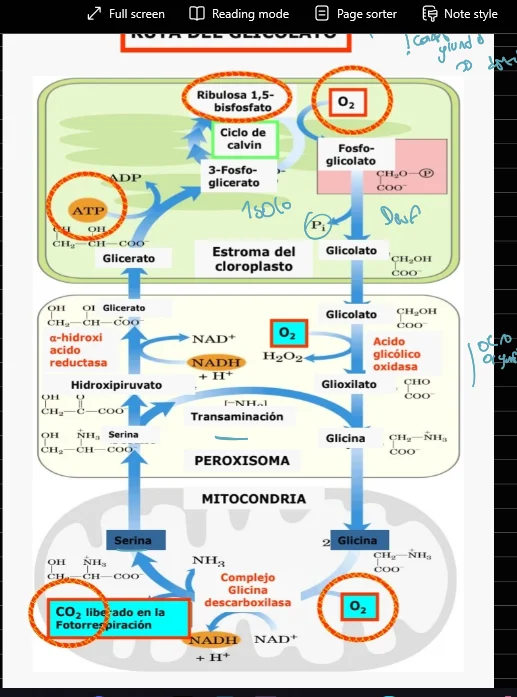
Las plantas tropicales tienen una rubisco con mucha mayor actividad oxigenasa, sin embargo, están protegidas ya que hacen el Ciclo de Calvin en una célula específica en la que no puede llegar el Oxígeno:
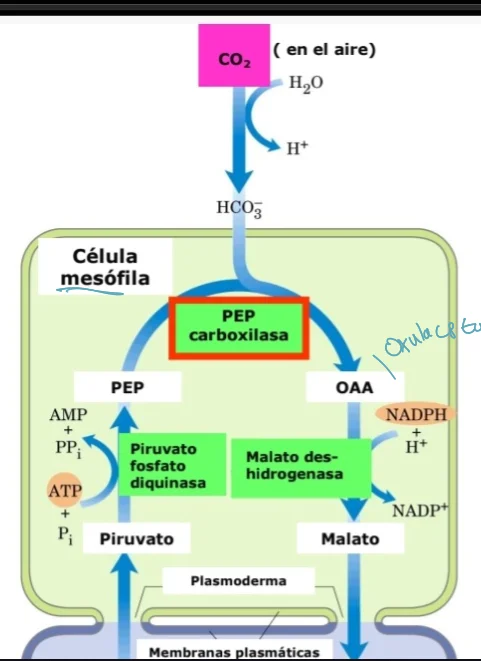 ç
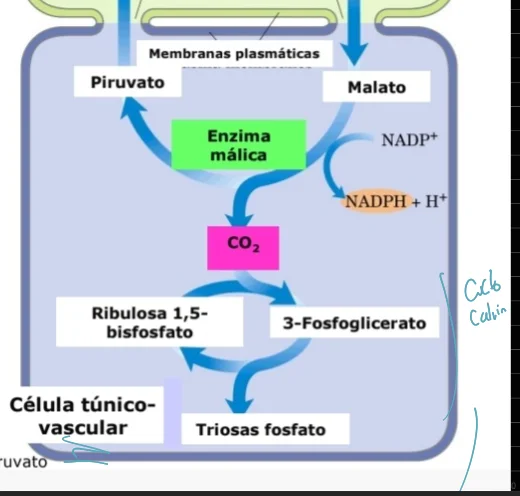
Tiene un mayor costo energético, pero vale la pena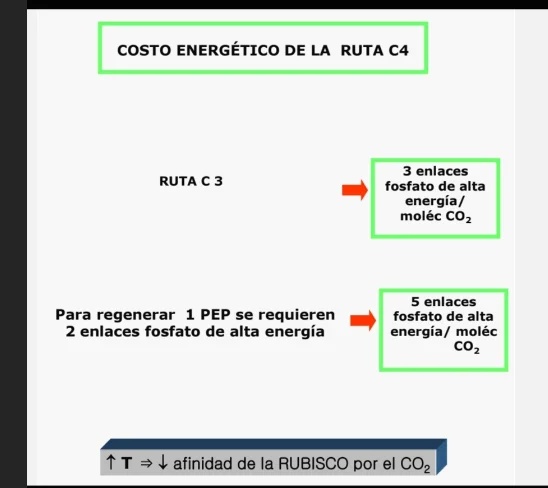
Ácidos Grasos
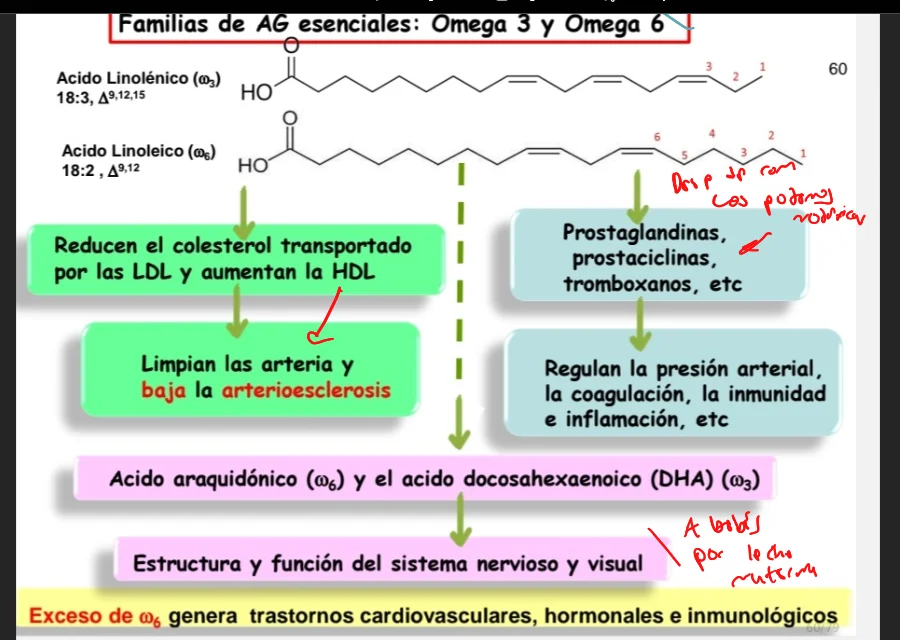
Los Ácido Graso son moleculas Anfipáticas, y presentan en su mayoría un numero par de carbonos. En los insaturados los Doble Enlace son cis.
Hay algunos Ácido Graso que no podemos sintetizar, son los que tienen Doble Enlace en el 3er o 6to Carbono contando desde la cola.
Son importantes para la salud, por lo que hay que consumirlos en la dieta.
Tienen varias funciones, por ejemplo pueden formar partes de la Membrana Plasmática si se transforman a Fosfolípidos.
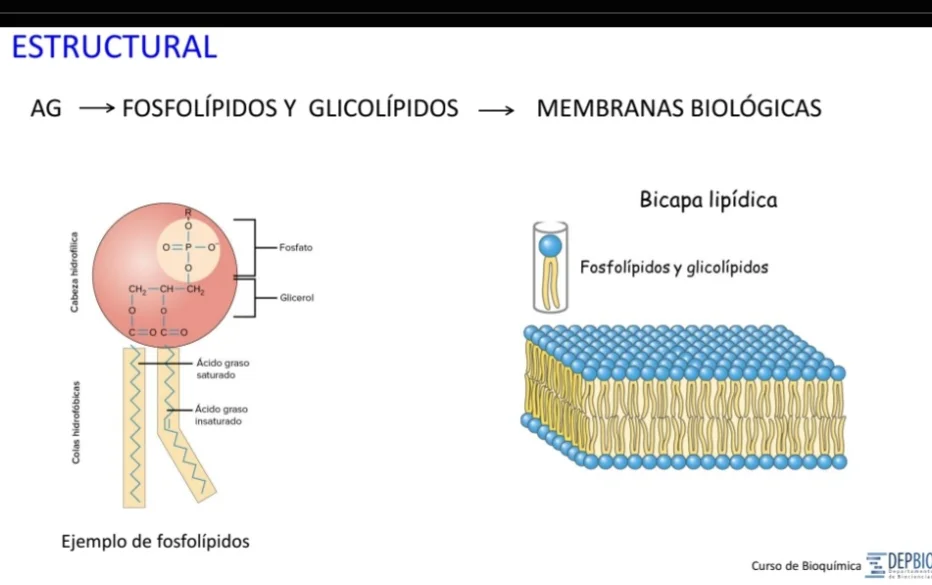
También se usan como almacenamiento de combustible, en los Triacilgliceroles.
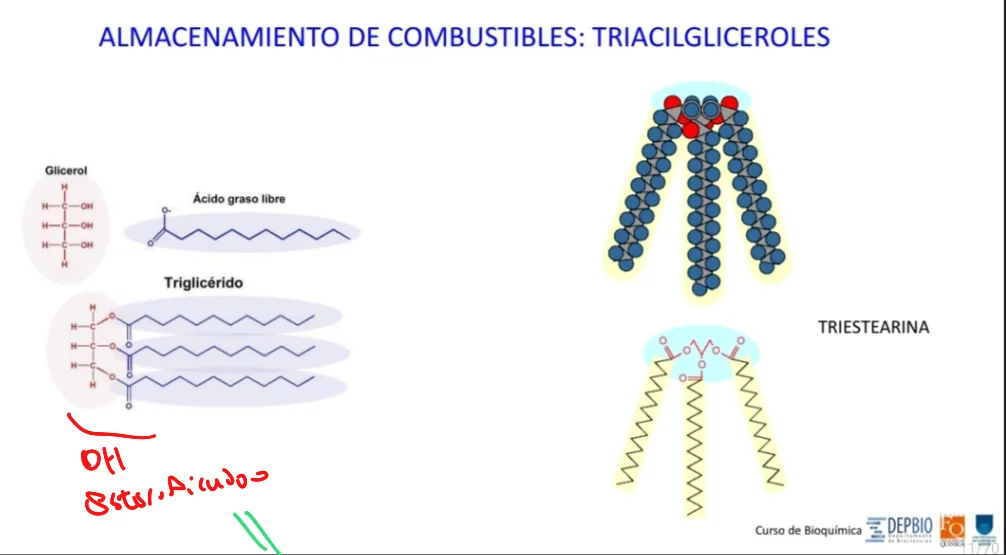
Que son la principal forma de almacenamiento de Energía. Se acumulan en los adipocitos, formando gotas insolubles en agua que ocupan casi todo el volumen de la célula.
Su digestión comienza en el Estómago con la Lipasa gástrica, que degrada sobre la superficie de las gotas de grasa, liberando gotas emulsionadas, de mayor área superficial, para que las próximas enzimas puedan actuar más fácilmente.
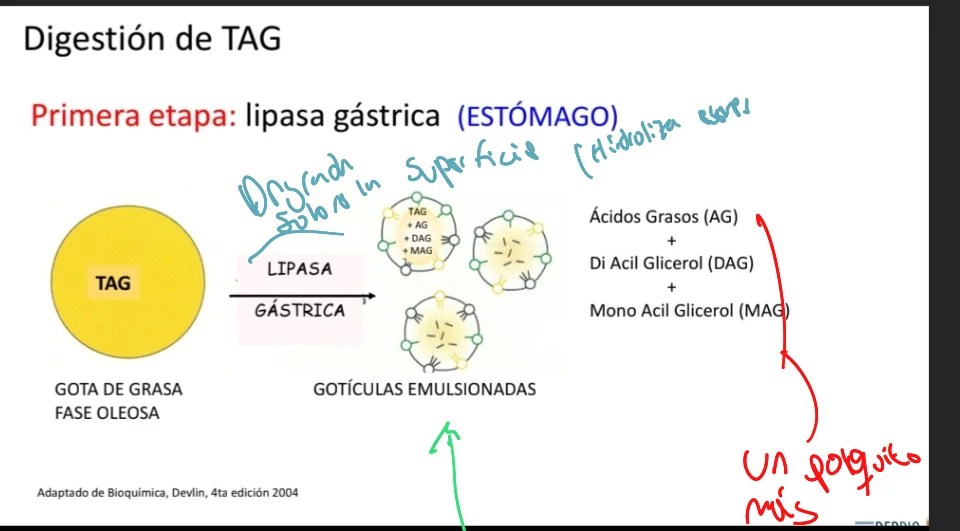
Luego al pasar al intestino, el Páncreas libera la Lipasa pancreática, que es específica para los Ácido Graso en alpha:
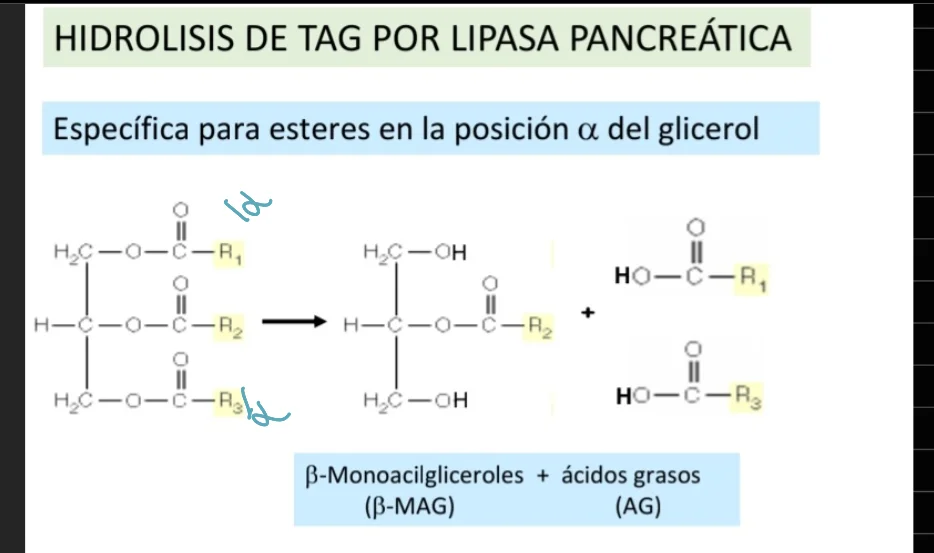
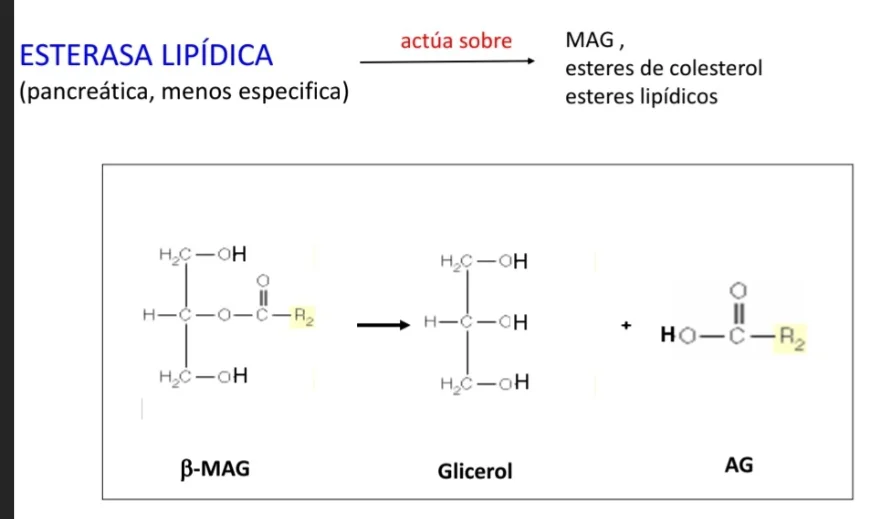
Y luego, termina la esterasa lipídica, que libera finalmente el Glicerol, y el último Ácido Graso:
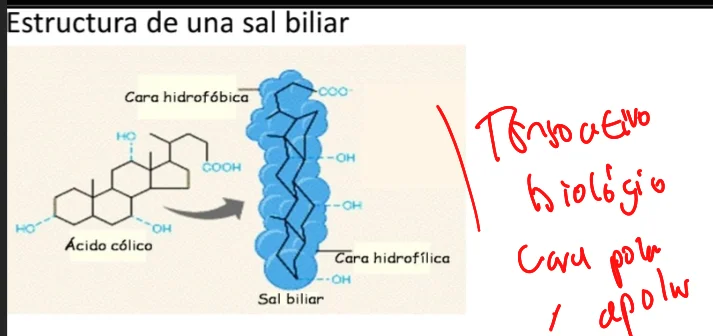
Las Sal Biliar, tienen una cara hidrofóbica y una hidrofílica, lo que les permite ir recogiendo y agrupando los Ácido Graso en Micelas, para transportarlos hasta la pared intestinal:
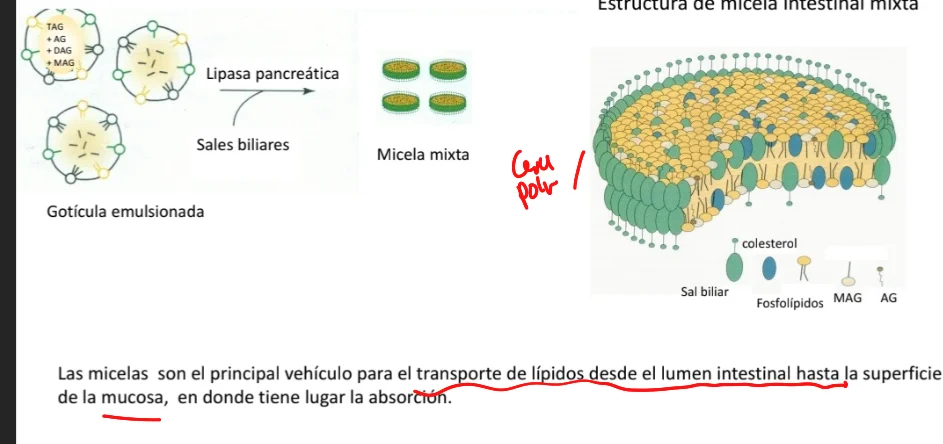
Allí se adsorben por las células intestinales, donde son transportados al Retículo Endoplasmático para ser transformados nuevamente en Triacilgliceroles, y luego transportados por la sangre por los Quilomicrónes. 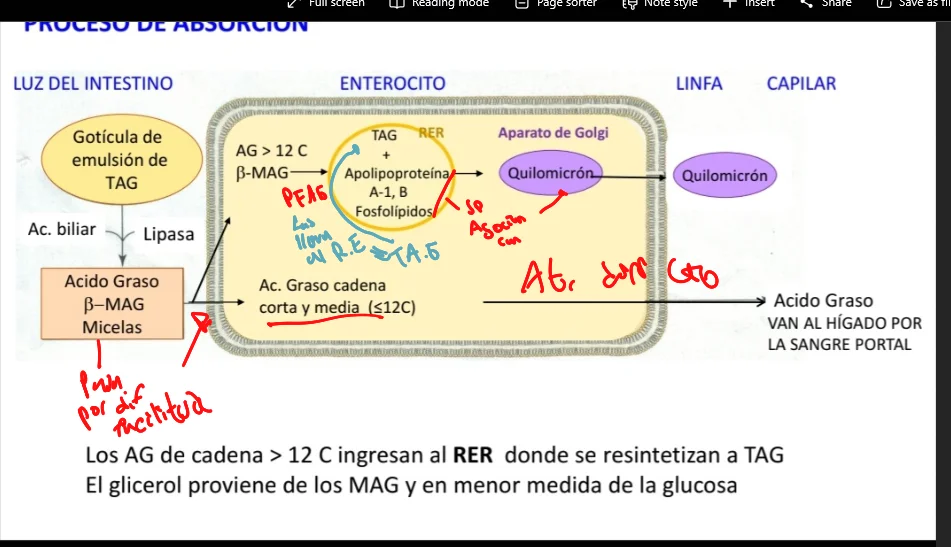
Los Quilomicrón son Proteínas sintetizadas en el Intestino, encargadas del transporte de los Ácido Graso y el Colesterol:
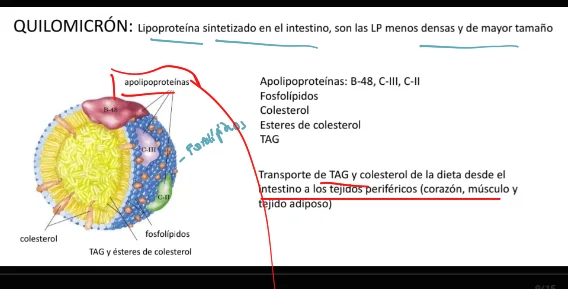
Sus Apolipoproteínas son reconocidas en las distintas células y liberan poco a poco los Ácido Graso:
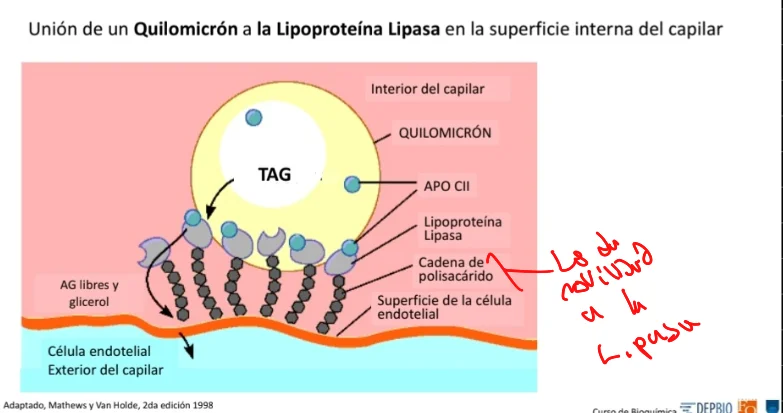
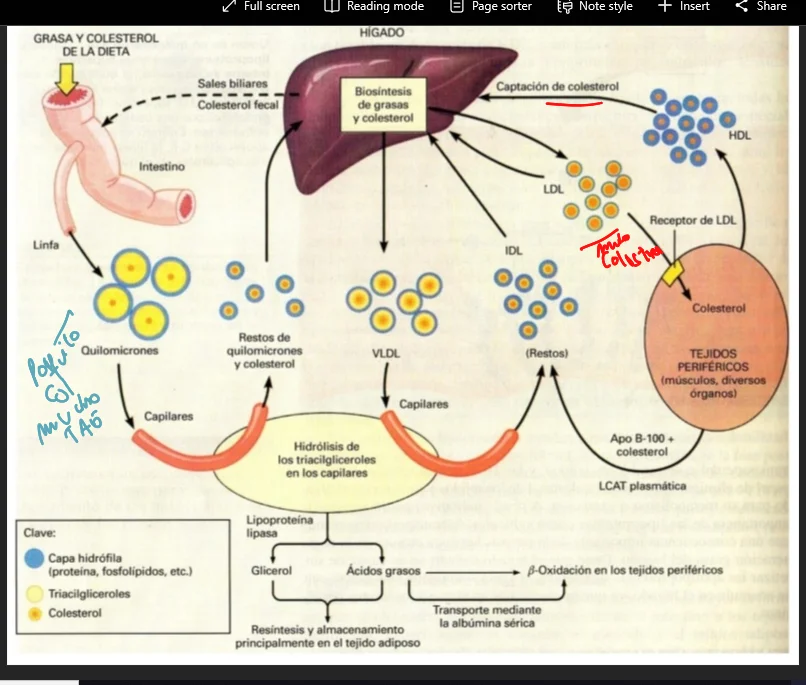
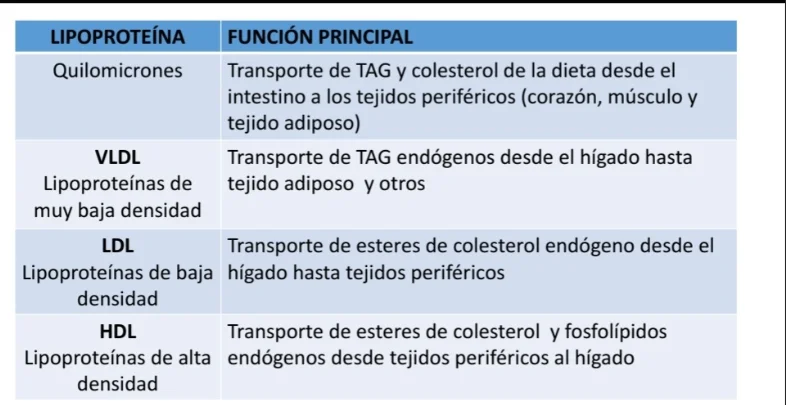
También podemos usar los que ya tengamos en reservas, pero para ello dependemos de la señal de la Adrenalina y el Glucagón:
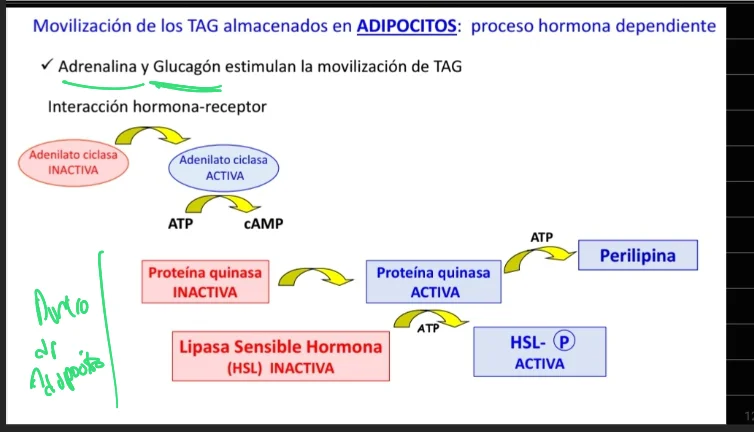
Ya que es necesario activar las Perilipinas, que bloquean el acceso de las lipasas a las gotas de lípidos.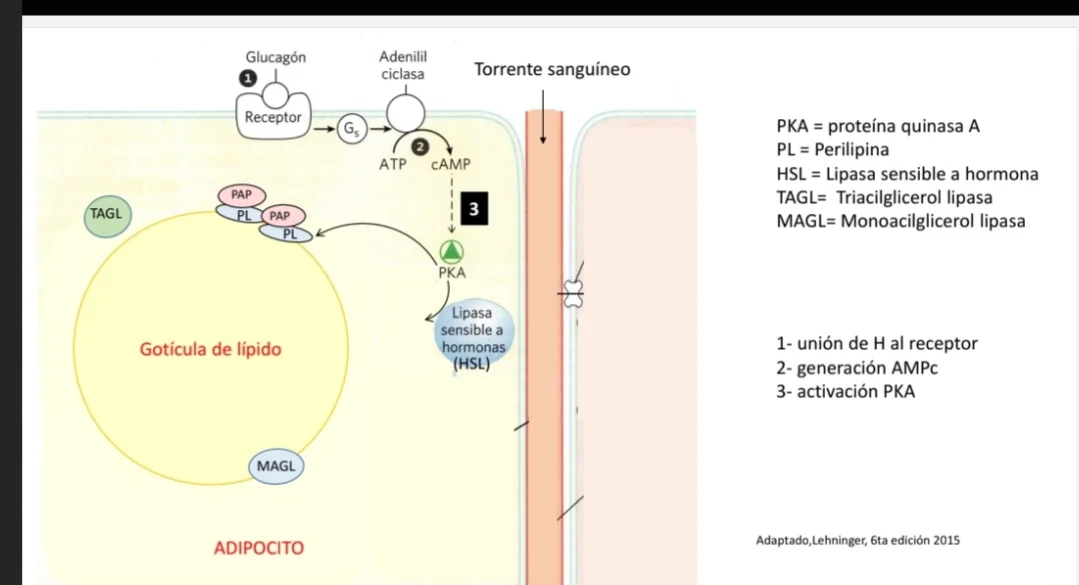
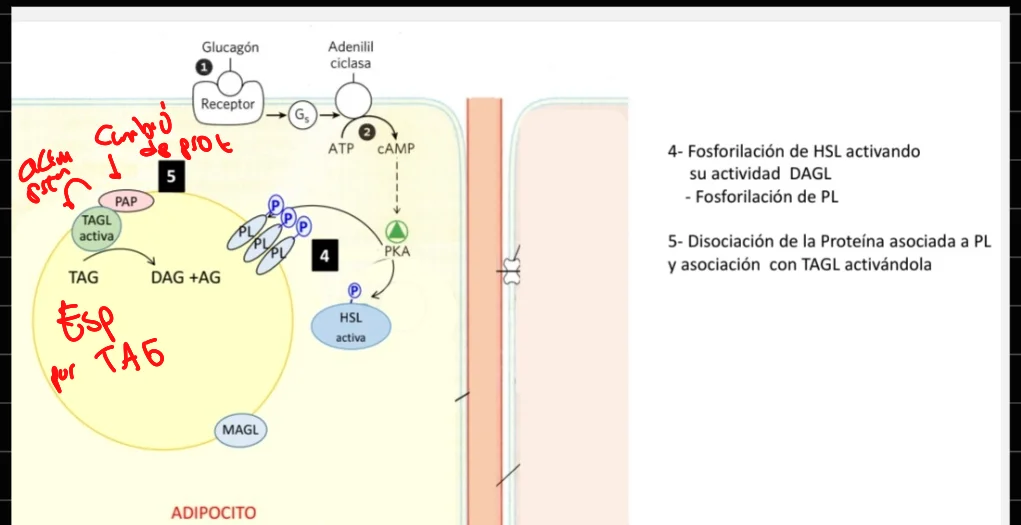
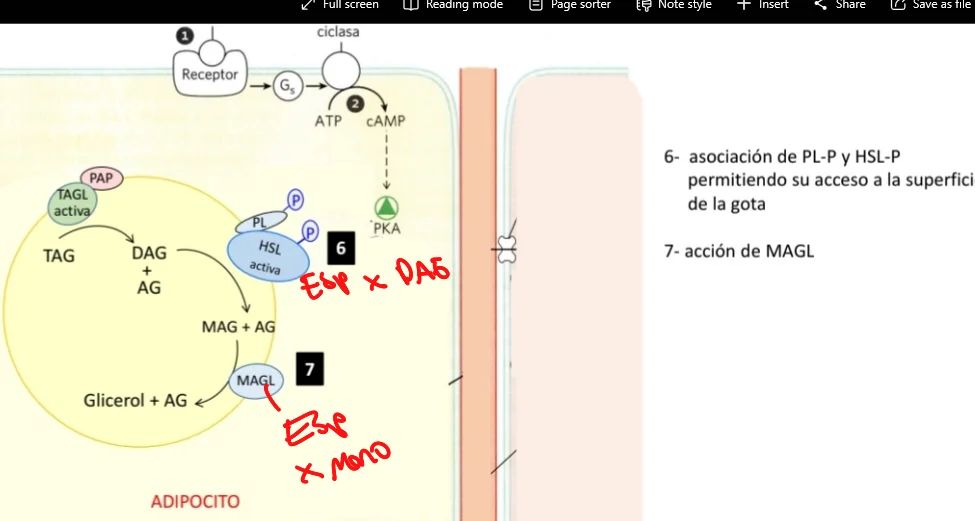
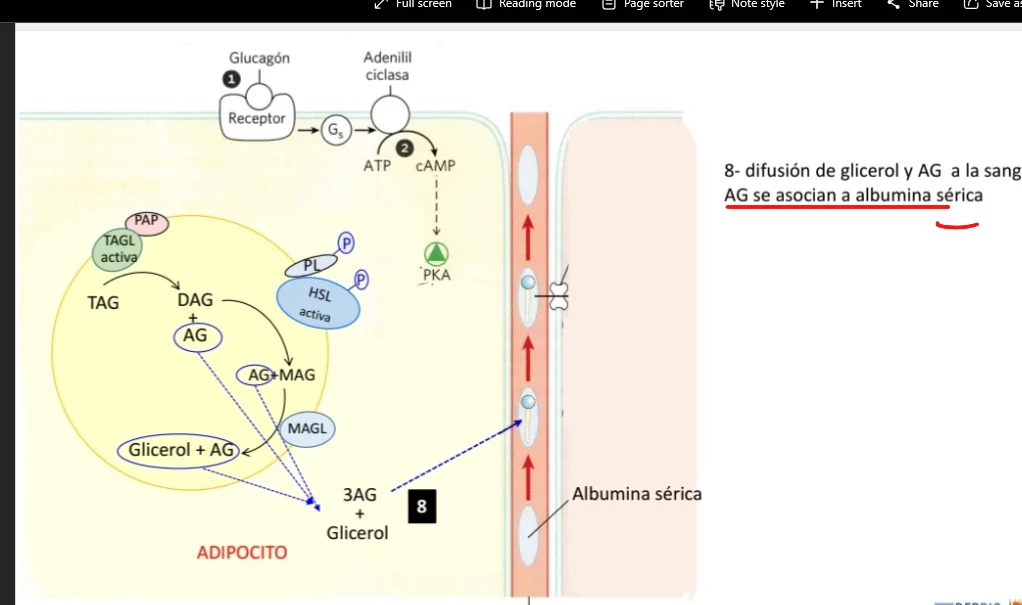
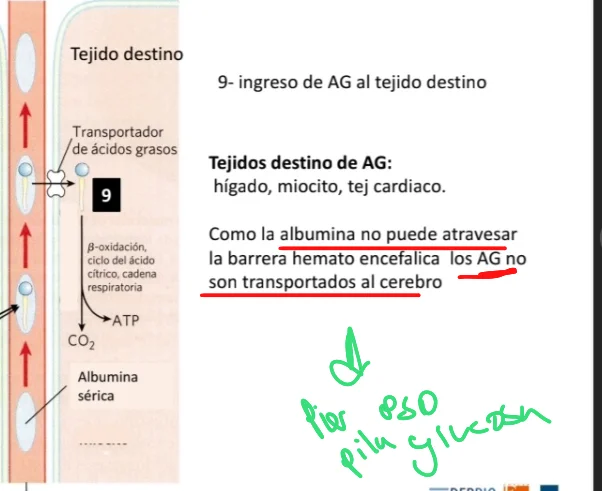
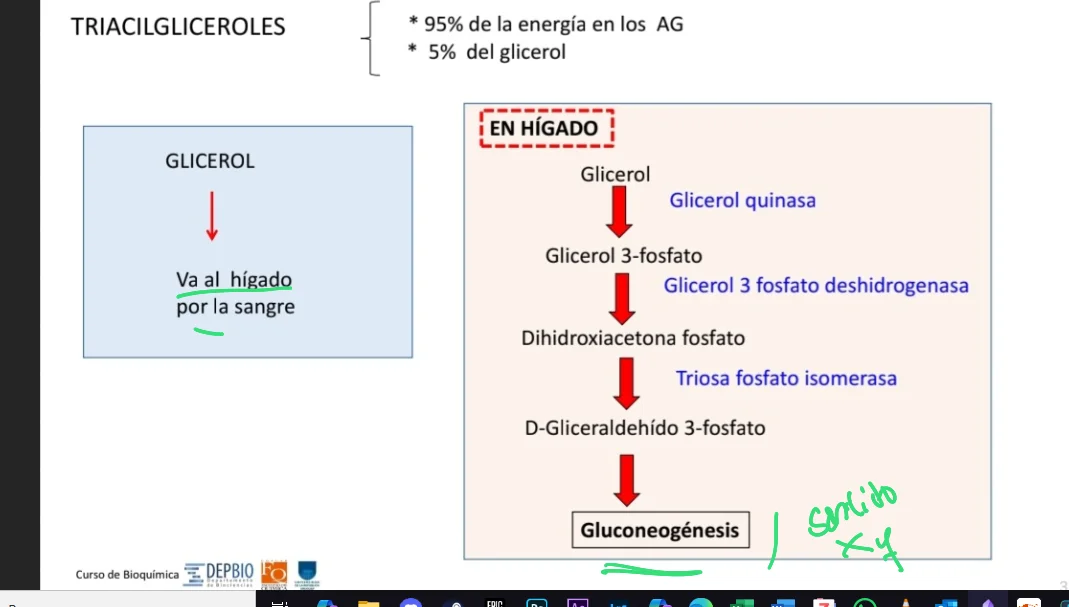
El glicerol es enviado directamente al hígado por la Sangre, y va a la Gluconeogénesis (Porque si degradé necesito formar glucosa porque quiero energía).
Catabolismo
Luego de consumidos o movilizados los Ácido Graso es necesario catabolizarlos para obtener la Energía.
Ello requiere primero de una activación que se da en el Citosol, junto con la acetilCOA:
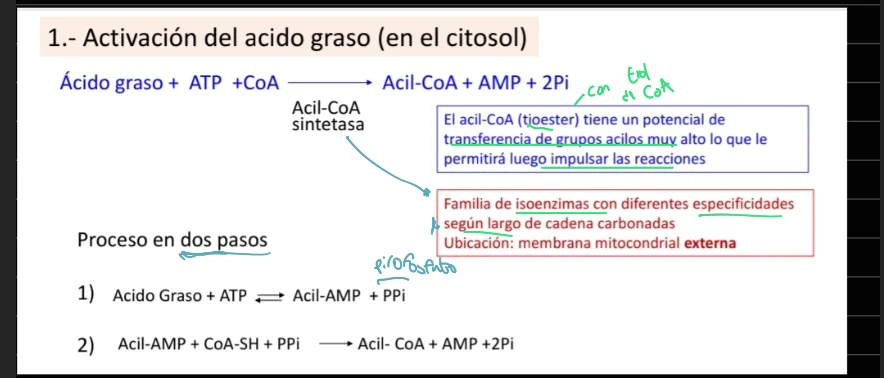
Consumiendo dos ATP.
Luego el Ácido Graso activado es enviado a la Mitocondria, con el Transportador acil carnitina carnitina: 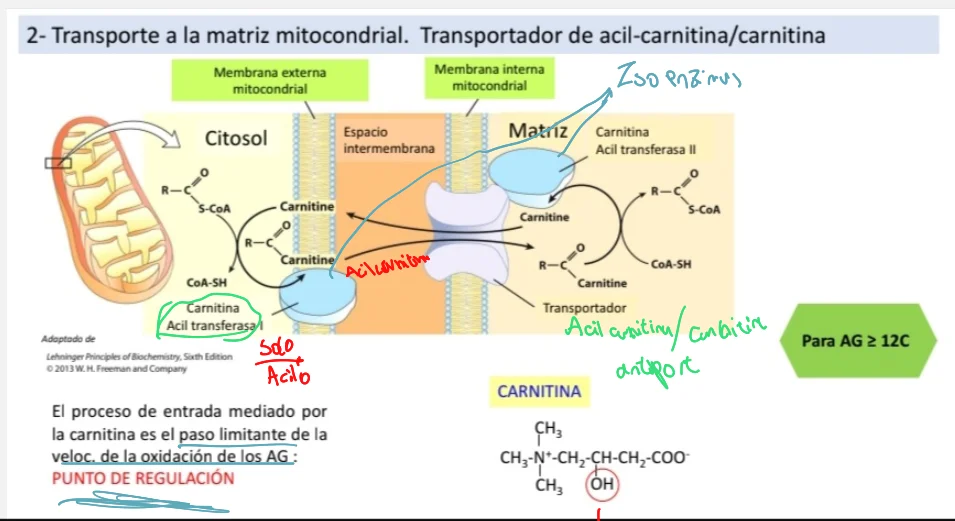
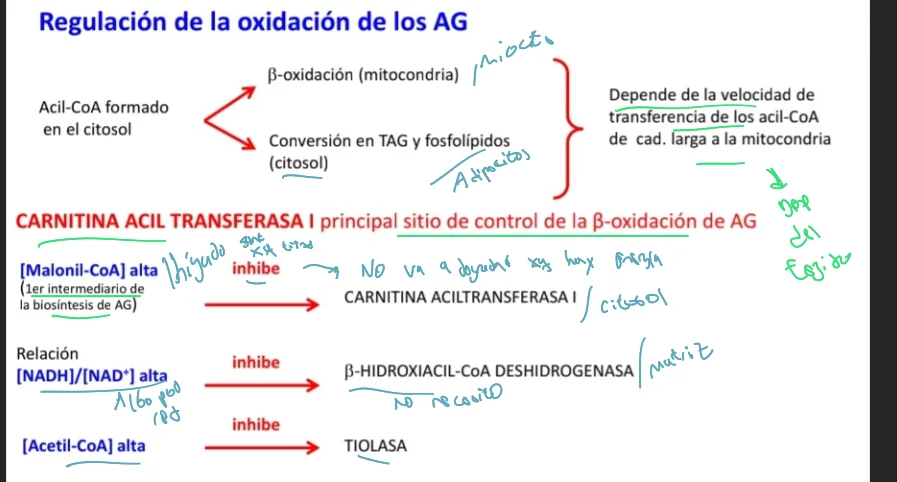
Este es el paso más importante de regulación, porque una vez entran a la Mitocondria ya no hay vuelta atrás.
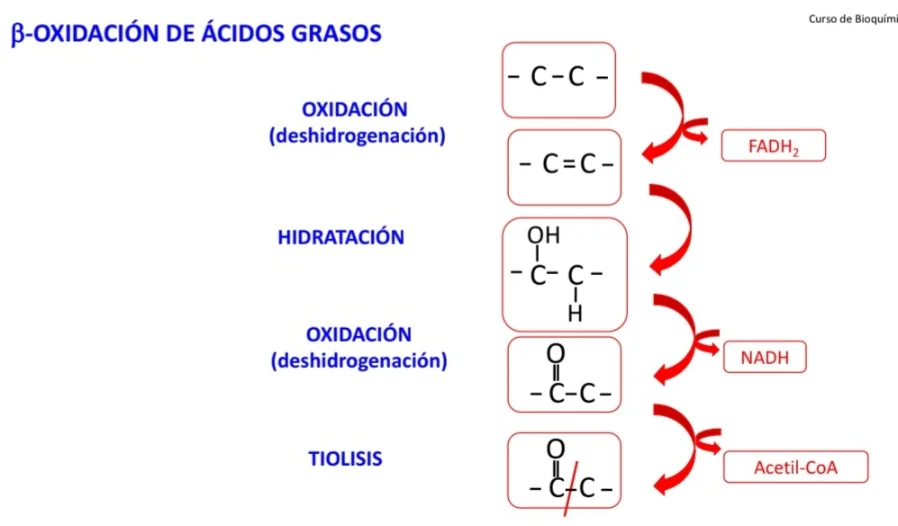
Luego, ya en la Mitocondria se da la Beta Oxidación, formada por un ciclo de cuatro pasos:
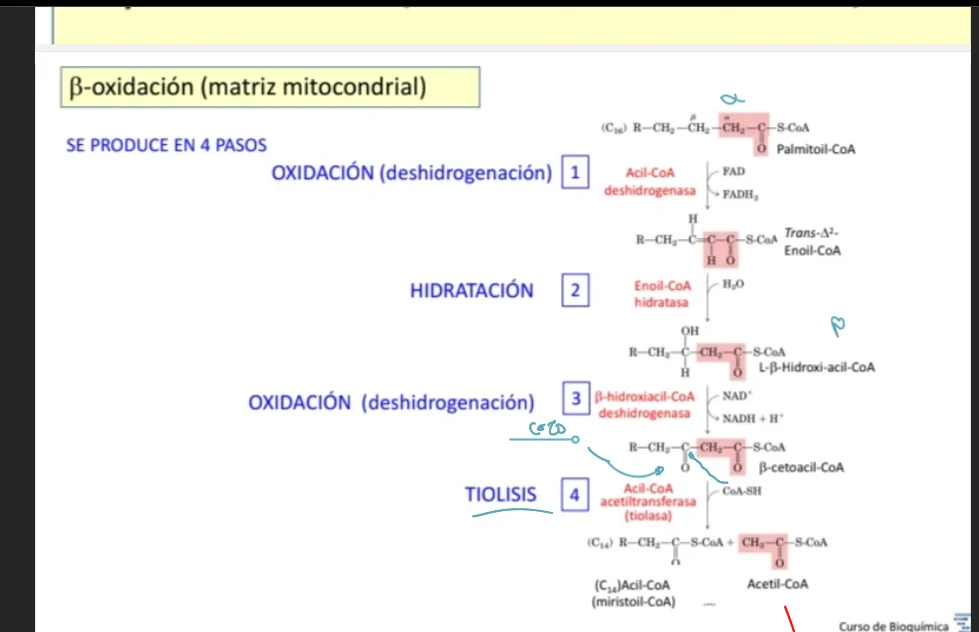
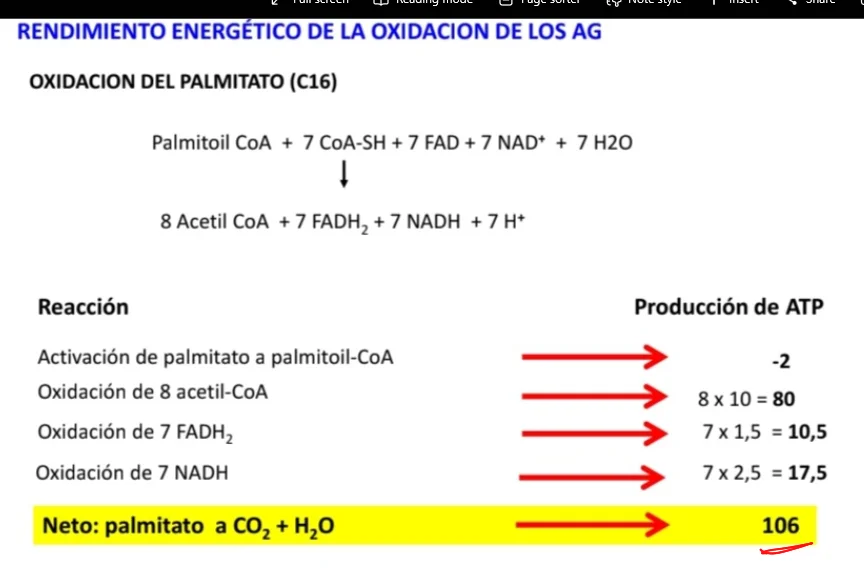
Cada ciclo libera un acetilCOA, o sea que libera dos carbonos. Además de FADH2 y NAD-H que van a ser utilizados en la Cadena Respiratoria. Además del acetilCOA que va a ser usado en el Ciclo de Krebs
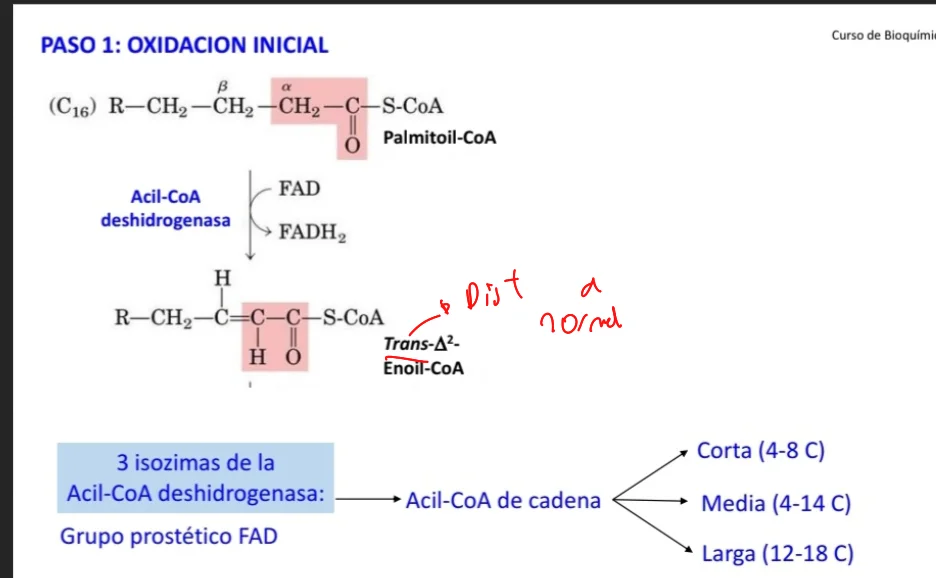
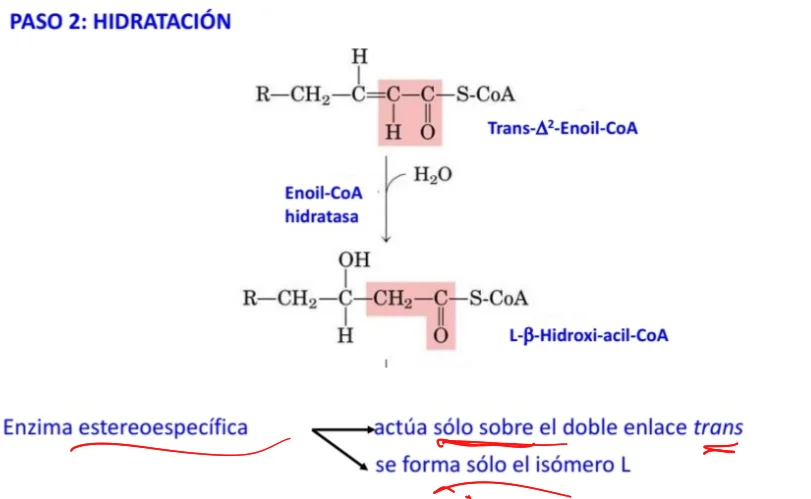
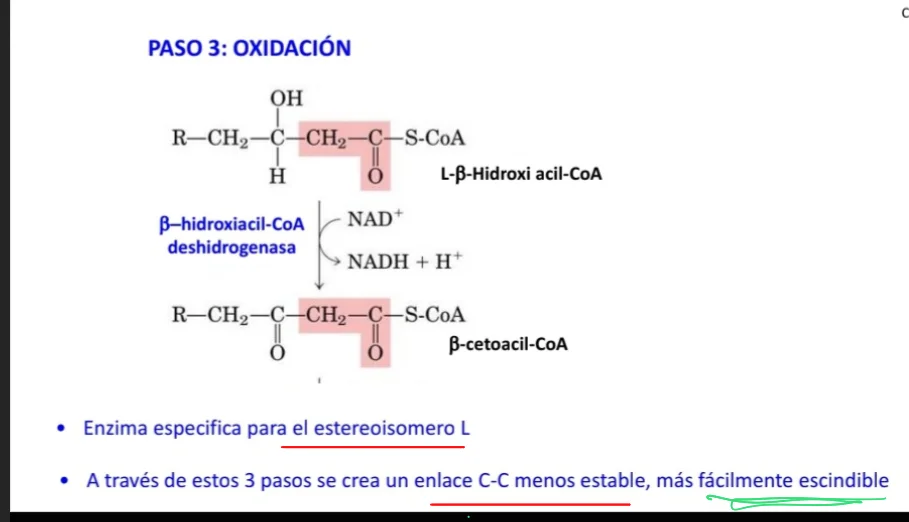
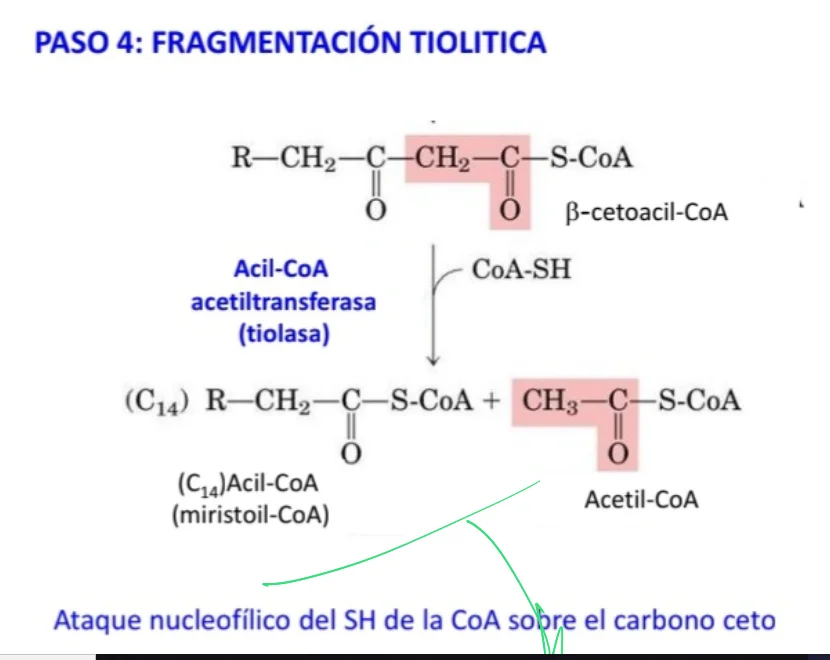
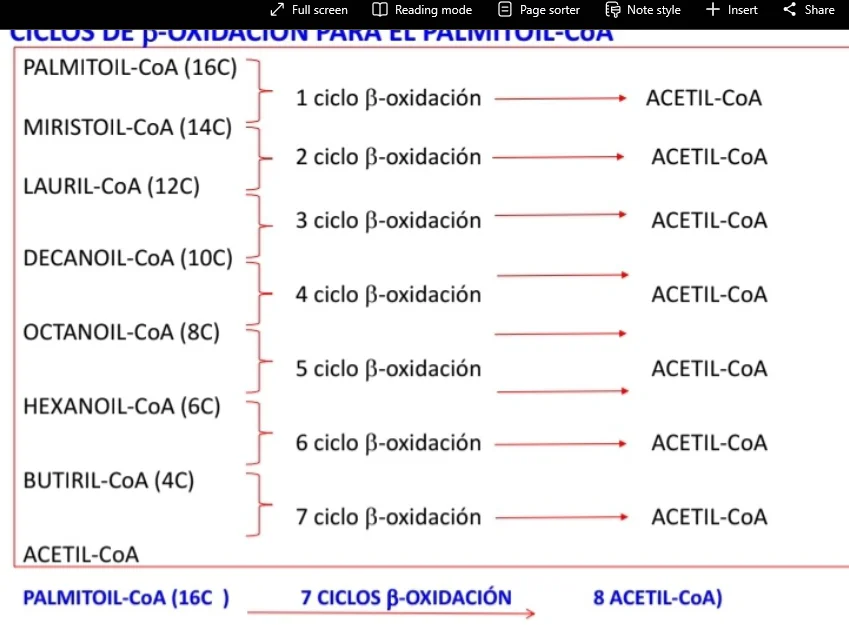
Para los que no son saturados, hay ciertos rodeos que terminan volviendo a la beta oxidación.
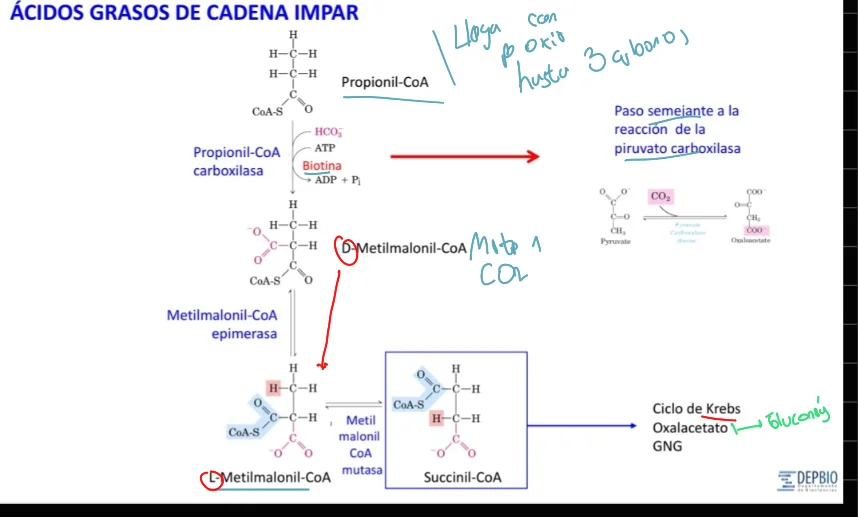
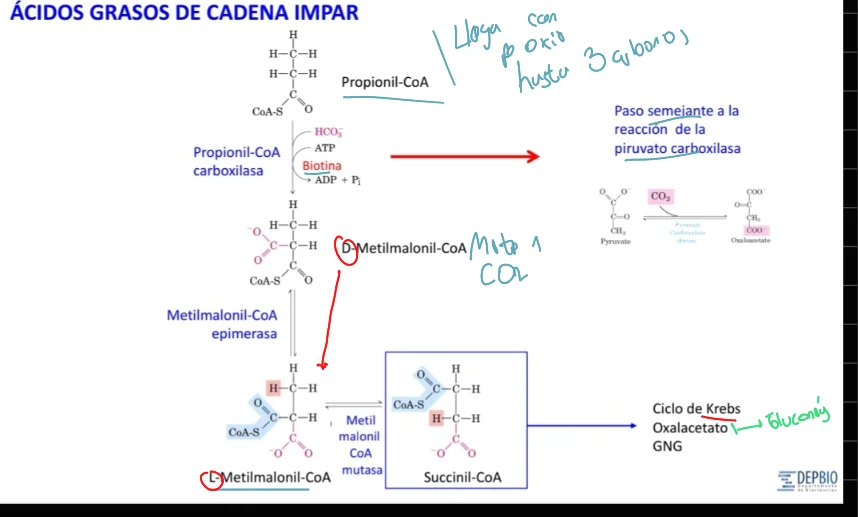
Los que son de cadena impar, en el último paso no liberan dos acetilCOA, si no que liberan SuccinilCoa, también enviado al Ciclo de Krebs.
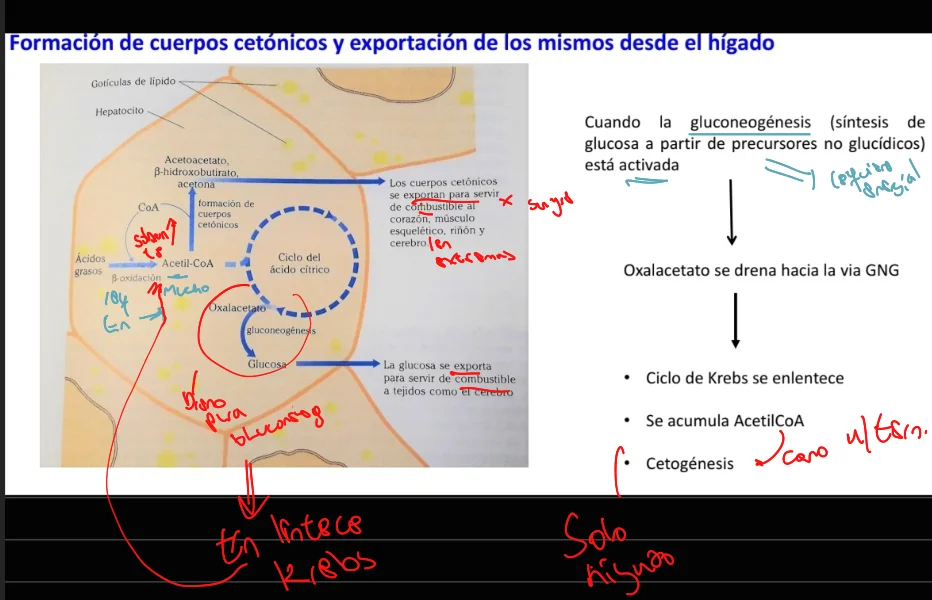
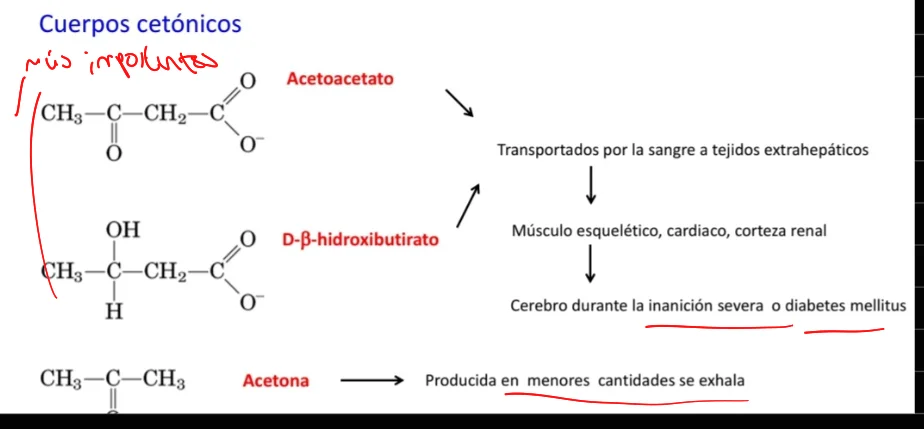
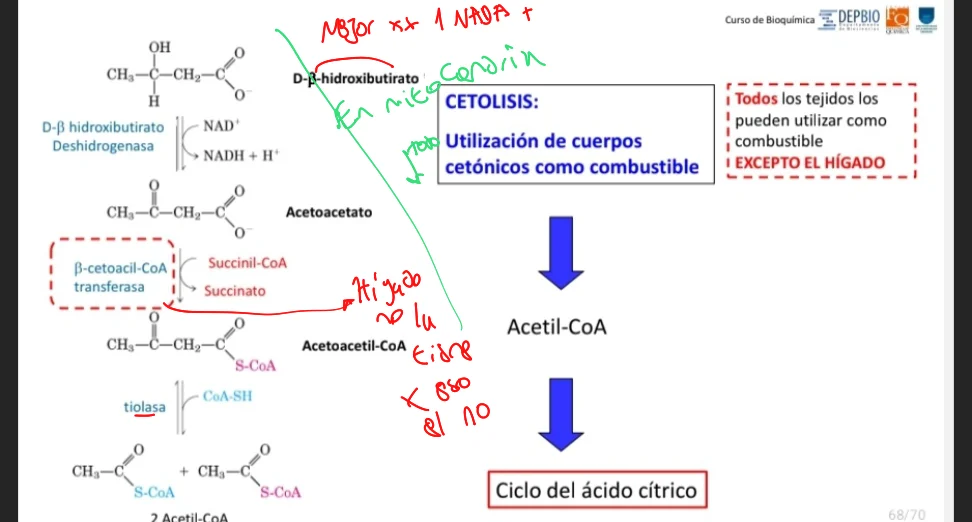
Toda esa acetilCOA en el Hígado puede ser usada en el Ciclo de Krebs, pero también en la Síntesis de Colesterol, o en la Cetogénesis, que es la formación de Cuerpos Cetónicos, que son combustibles hidrosolubles usados principalmente cuando hay poca glucosa. Y pueden llegar al cerebro.
Síntesis de lípidos
La síntesis de Lípidos ocurre en el Citosol del Hígado, tejido adiposo y glándula mamaria.
Ocurre cuando hay una buena cantidad de Energía y poder reductor, se forman Triacilgliceroles y se almacenan como reserva de Energía.
Los Carbohidratos pueden convertirse fácilmente a grasas, pero no a la inversa. La síntesis de grasas está regulada, pero no el almacenamiento, por lo que es importante controlar la ingesta.
Para la síntesis se da una especie de opuesta a la oxidación pero con rodeos.
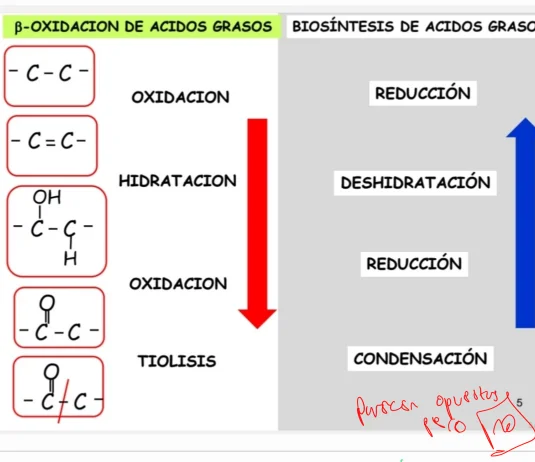
Además requiere la presencia de Dióxido de Carbono, se da en el Citosol y participan distintos efectores, por lo que también tiene una regulación distinta.
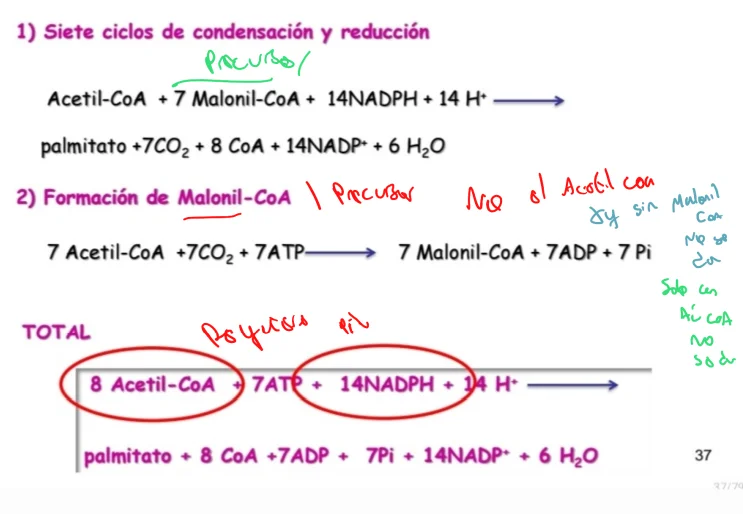
Participan 3 complejos enzimáticos que a partir del Malonil COA sintetizan los Ácido Graso:
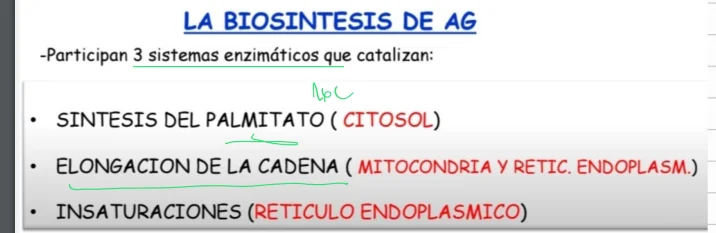
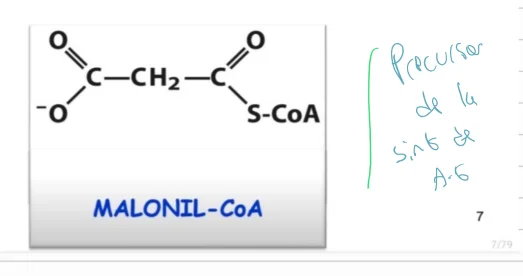
Se da en 7 etapas. Primero la obtención del Malonil COA, con Dióxido de Carbono y acetilCOA, luego 4 etapas y luego elongación y adición de insaturaciones:
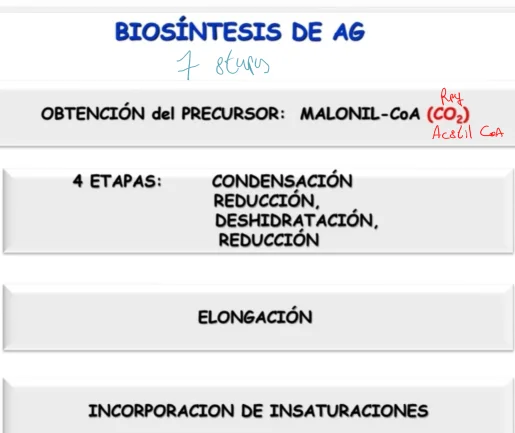
La etapa limitante es la síntesis de Malonil COA, que es irreversible. Además se da en dos etapas.
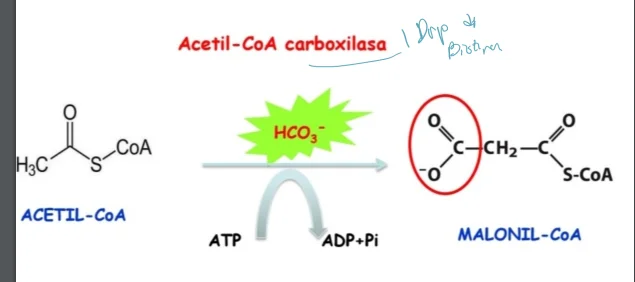
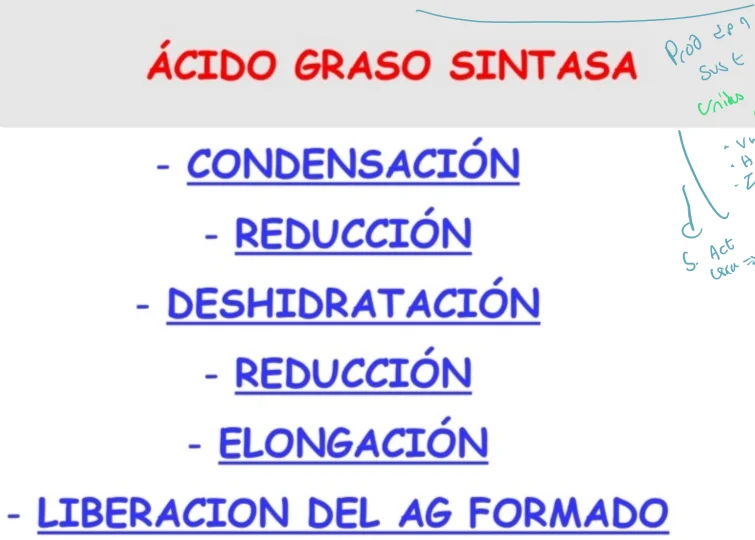
Luego el Malonil COA va a el complejo Multienzimático Ácido Graso Sintasa. Donde se dan las 4 etapas, y la elongación:
En el complejo se usan como intermediarios, la Proteínas portadora de acilos, que tiene un Azufre capas de formar enlaces Tioester. con los acilos.
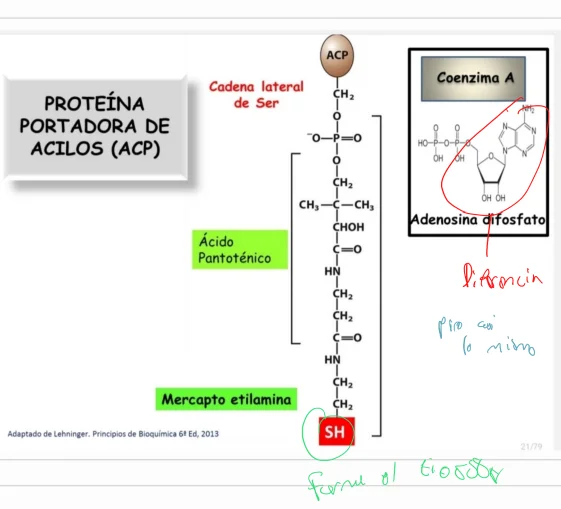
Es central en la Ácido Graso sintasa.
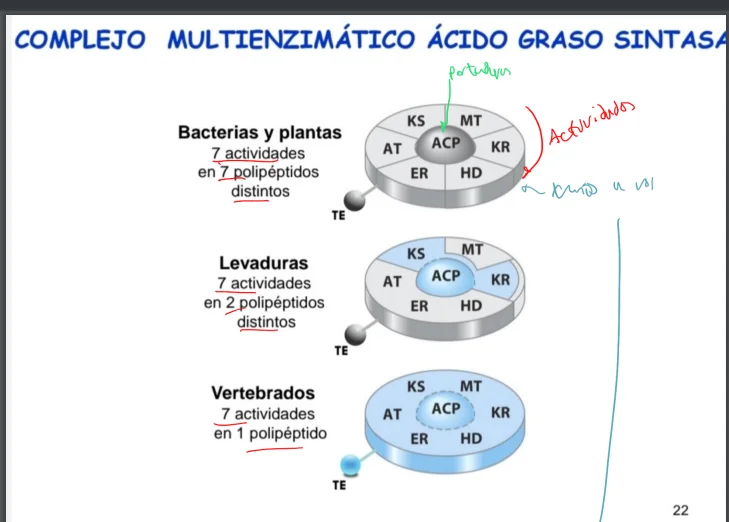
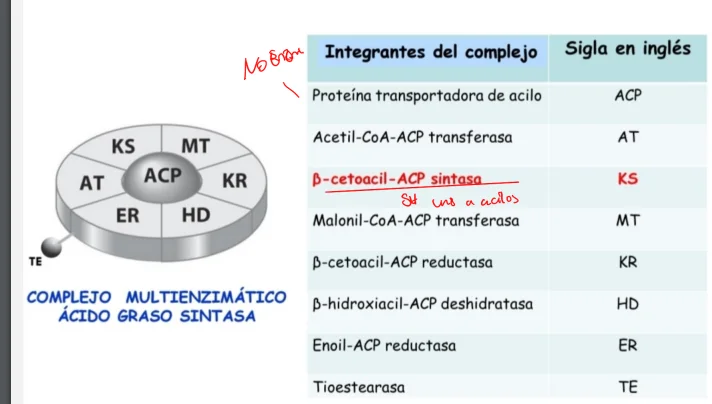
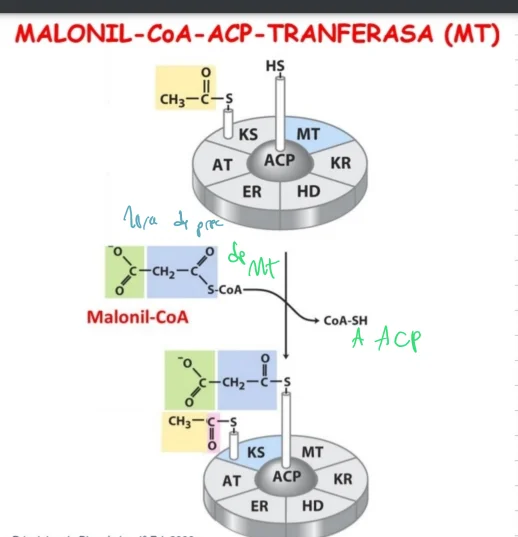
Primero un acetilCOA se une al complejo con el ACP, pero es transferido a KS, luego un Malonil COA a ACP
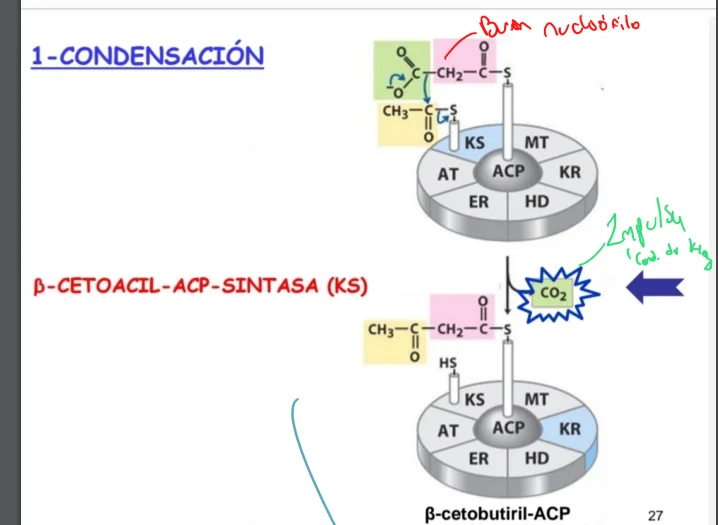
Cuando ambos están formando el Tioester se da la Condensación, donde por ser malonil coa activada tiene energía para ser un buen nucleófilo y termina liberando el Dióxido de Carbono que había incorporado.
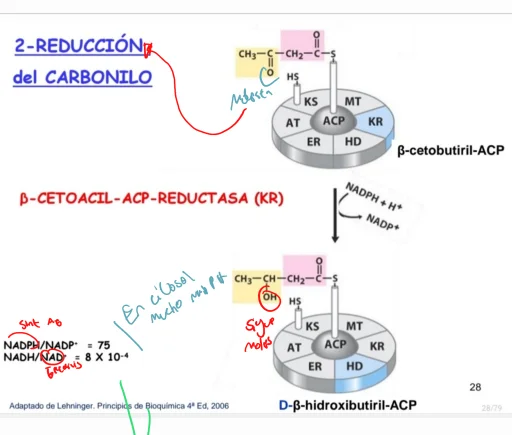
Luego una reducción, aprovechando el NADPH disponible en el Citosol:
Luego una Deshidratación, 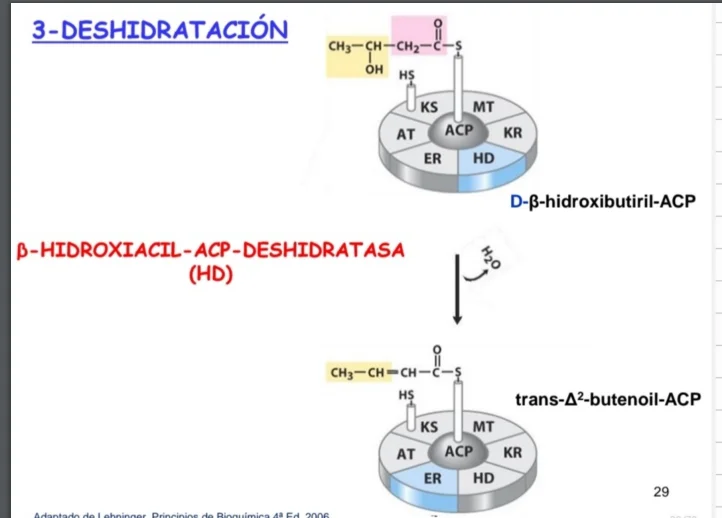
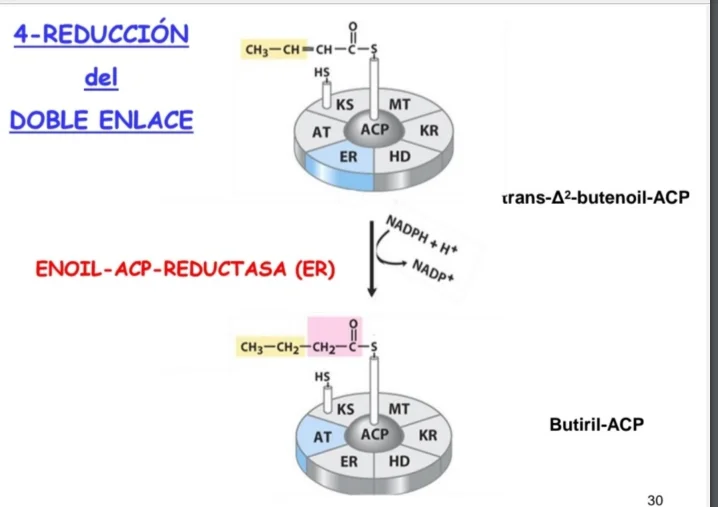
Y otra reducción aprovechando el NADPH:
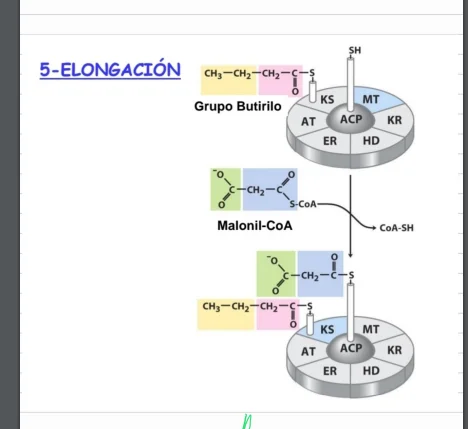
Cuando ya se tiene la "cabeza" lista, se comienza la elongación.
Moviéndolo a la ks, y comenzando un ciclo con nuevo Malonil COA:
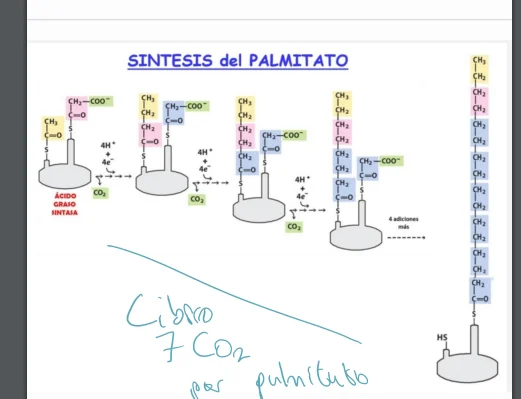
Pero requiere siempre carbonos de más, que son liberados como co2.
Para poder tener el acetilCOA necesario para la síntesis está la Lanzadera de Citrato:
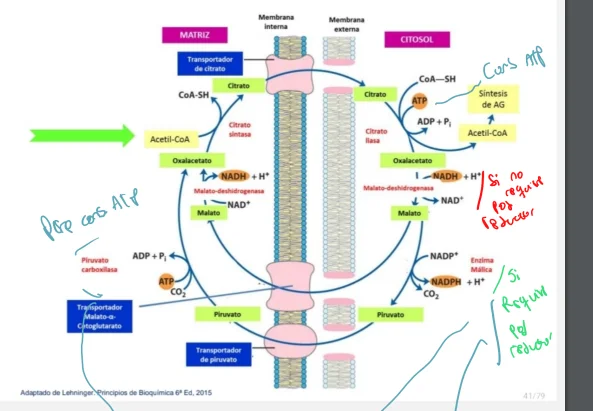
Además el NADPH puede ser obtenido del malato en la propia lanzadera, o de la Vía de las pentosas fosfato.
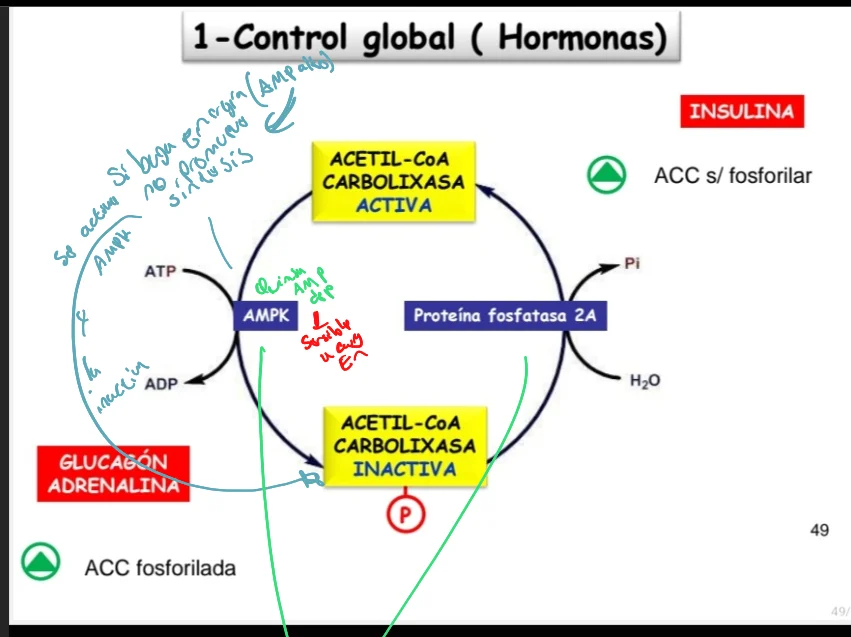
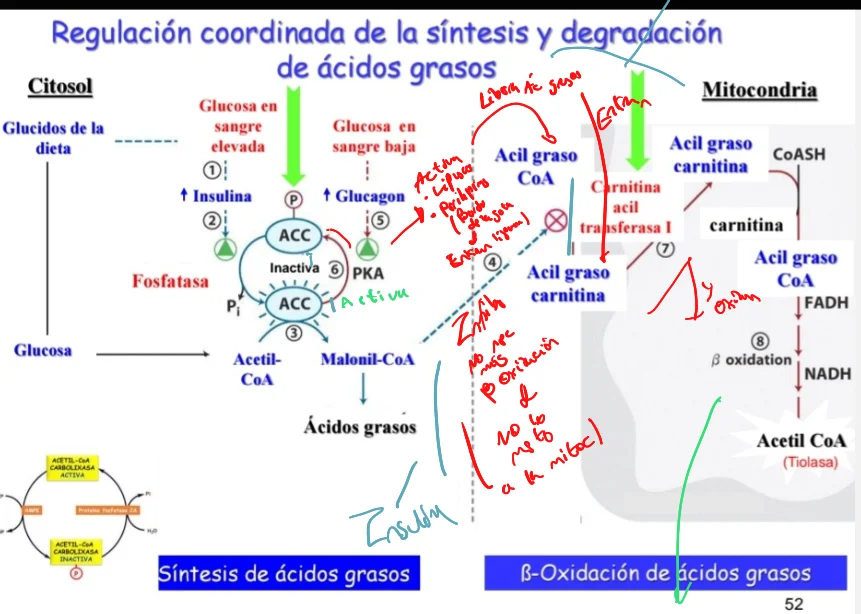
Es regulada fundamentalmente en la síntesis del Malonil COA por la acetilCOA Carboxilasa, esta está regulada con control hormonal, y un control localizado.
El glucagón es señal de baja energía, por lo que no habrá energía para almacenar, por lo que la inhibe, mientras que la insulina lo contrario.
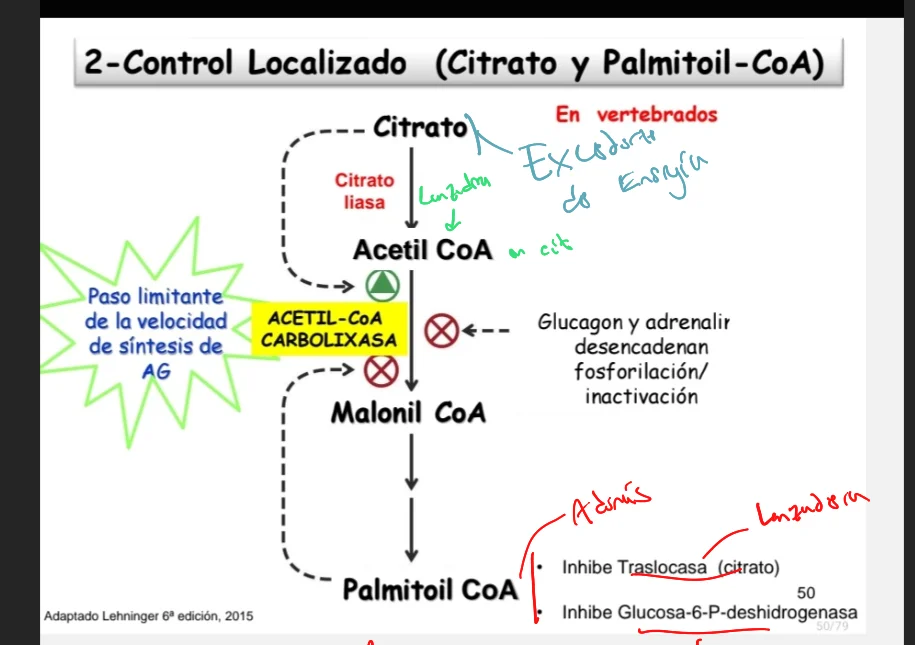
El palmitoil coa, producto de la síntesis es un fuerte inhibidor por tres vías.
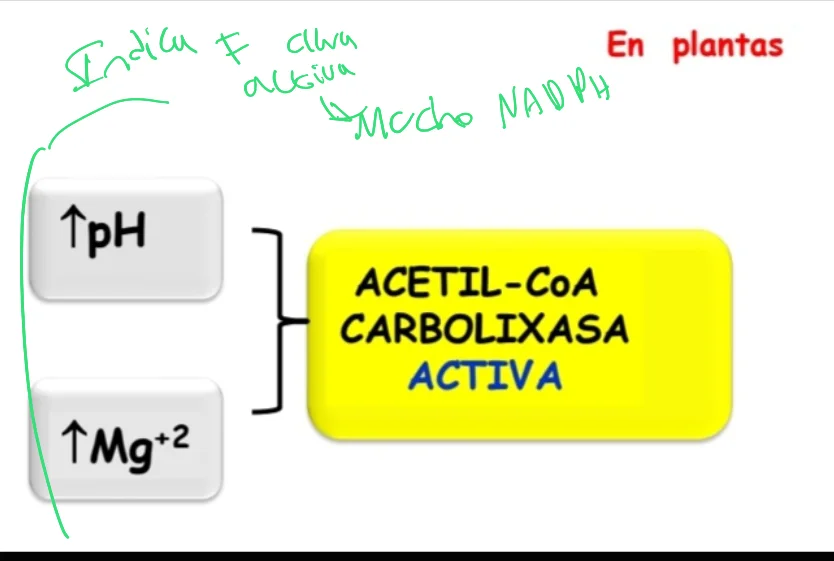
En plantas además hay regulación por pH y Magnesio, que son indicadores de fase clara:
Se da una regulación coordinada gracias a las hormonas, y que además el malonil coa inhibe la entrada de los Ácido Graso a la mitocondria. Por lo que si hay síntesis, no entrarán a la mitocondria para degradarse:
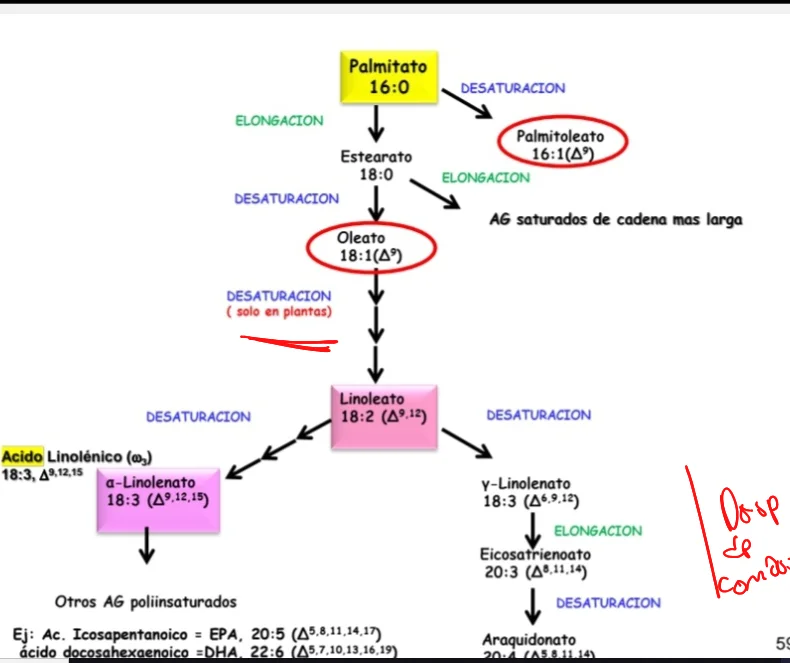
Para hacer Ácido Graso de cadena larga se le añaden a los normales.
Las insaturaciones se añaden en el Retículo Endoplasmático, pero no más allá del carboo nueve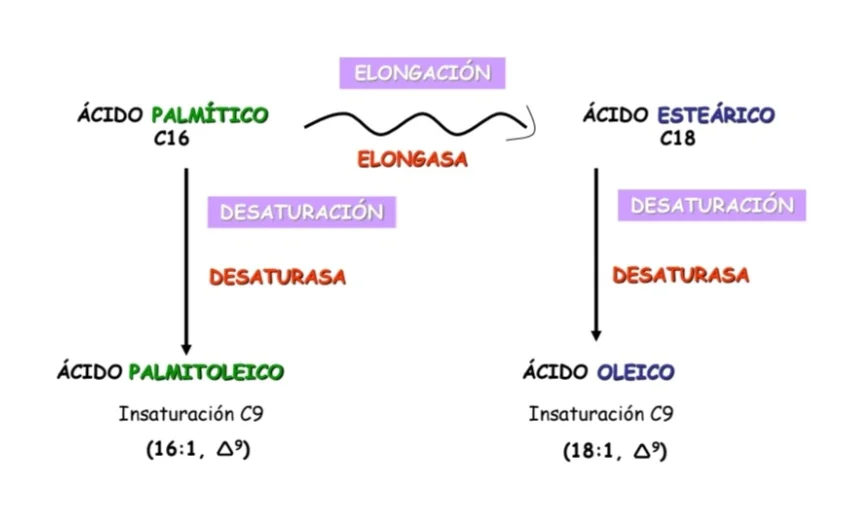
Los ácidos grasos que no van a Cuerpos Cetónicos ni colesterol, o sea que la mayoría, van a ser reservados como Triacilgliceroles, o Fosfolípidos, 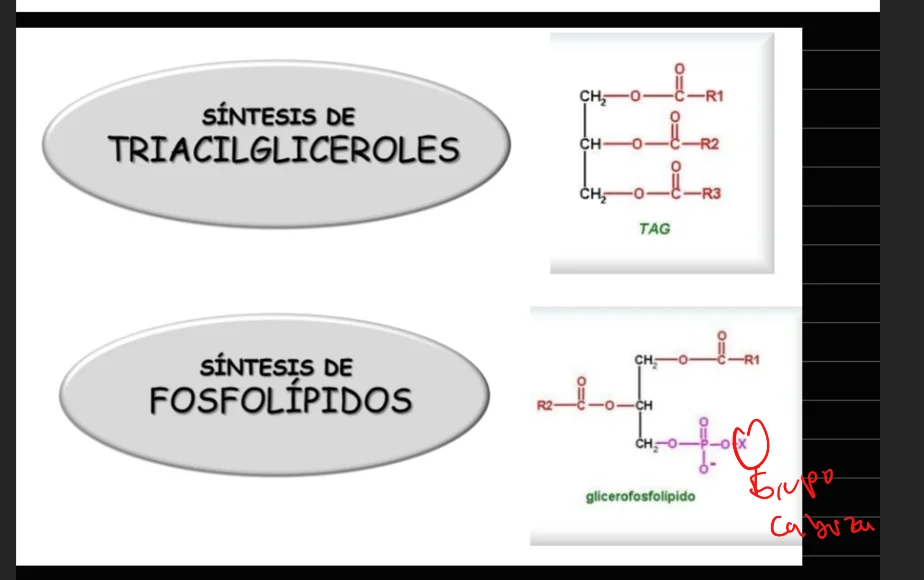
En ampos casos tienen como intermediario el Ácido Fosfatíodico:
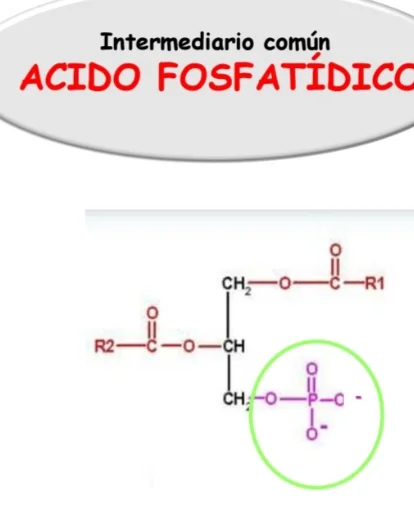
Formado a partir de Glicerol 3 fosfato, y Acilcoa.
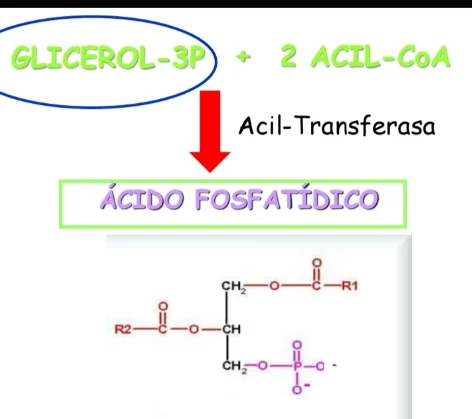
El Glicerol viene en su mayoría de la Glicolisis:
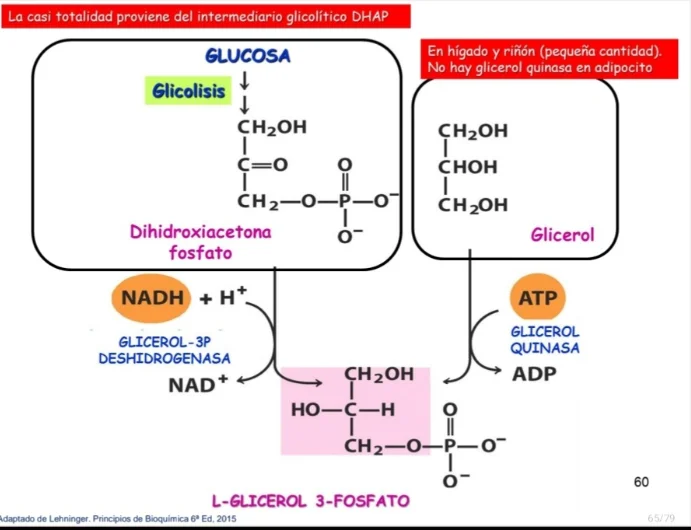
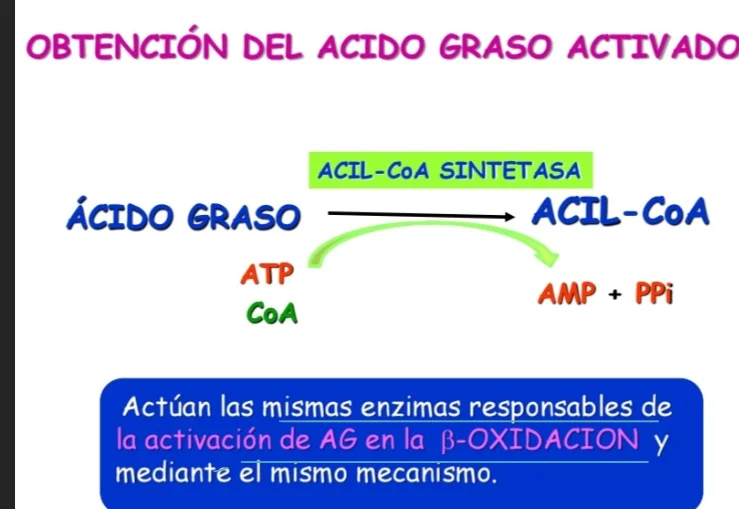
Y la Acil Coa viene activadaigual que en la Beta Oxidación:
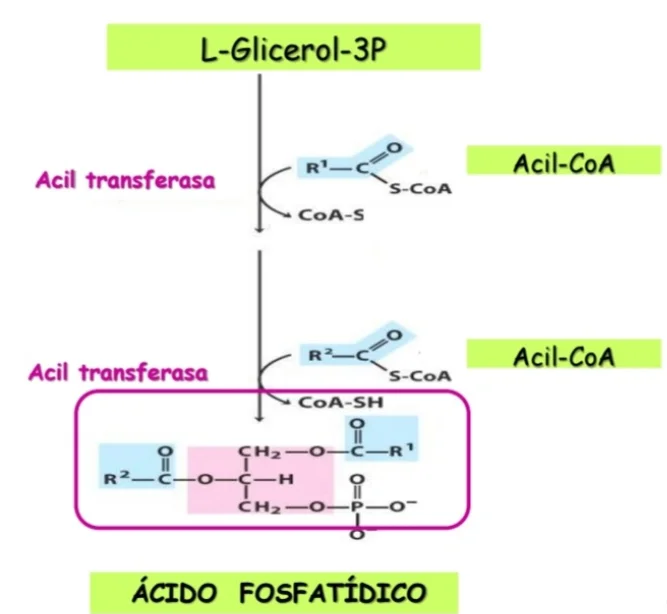
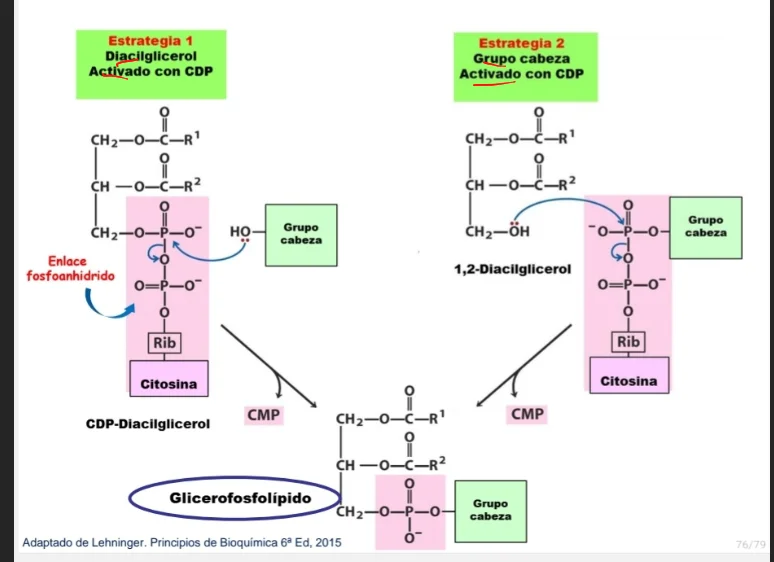
Desde aquí puede ser eliminado el fosfato y hacerlo reaccionar con otra acil coa, para formar los Triacilgliceroles.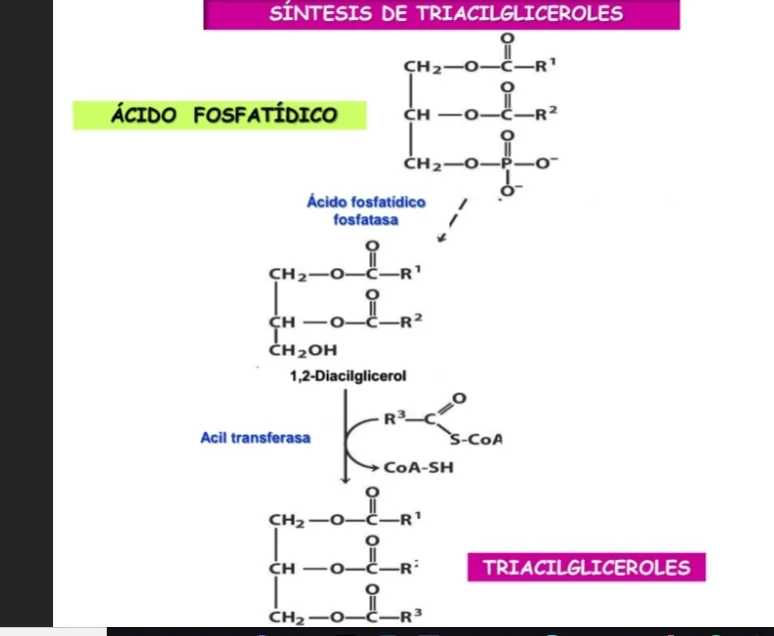 O con un grupo cabeza sin desfosforilarlo, para crear Fosfolípidos, habiendo una gran variedad dependiendo de los grupo cabeza y los Ácido Graso.
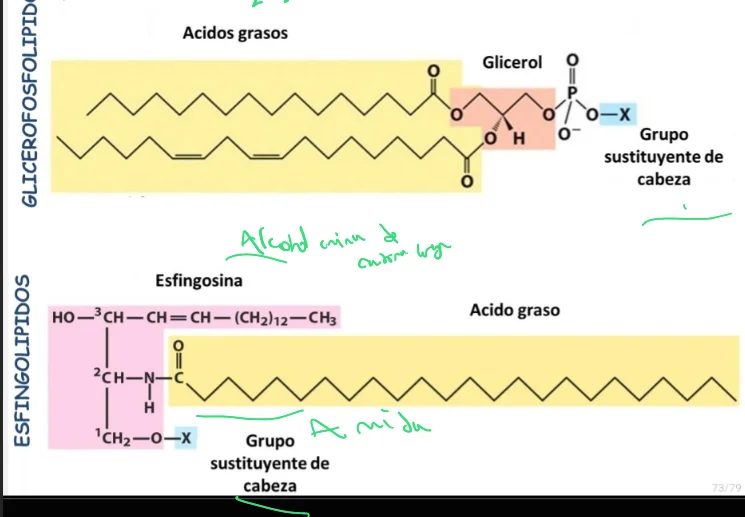
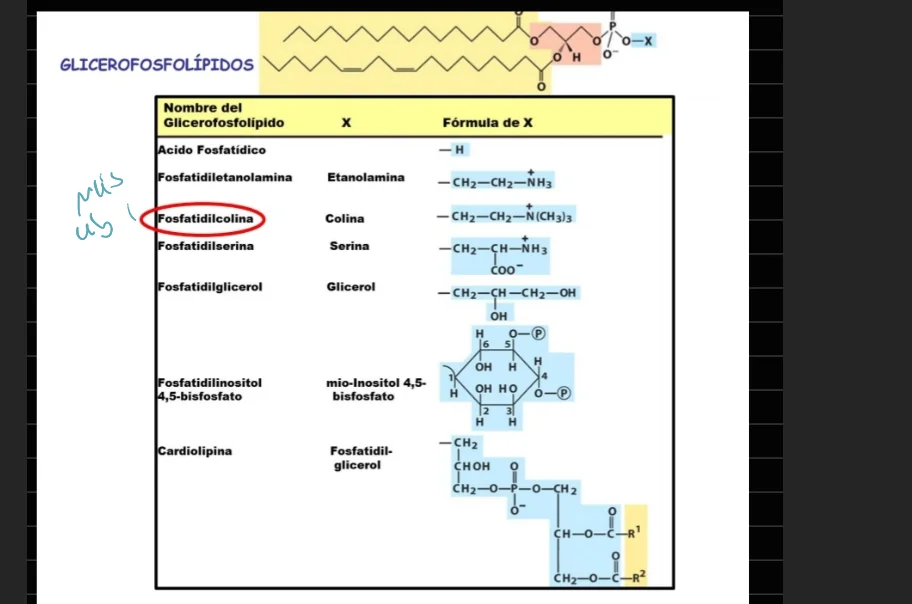
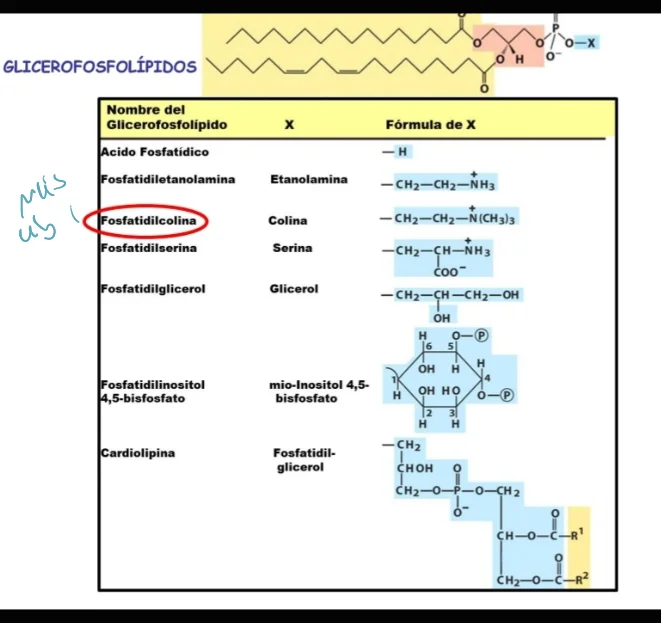
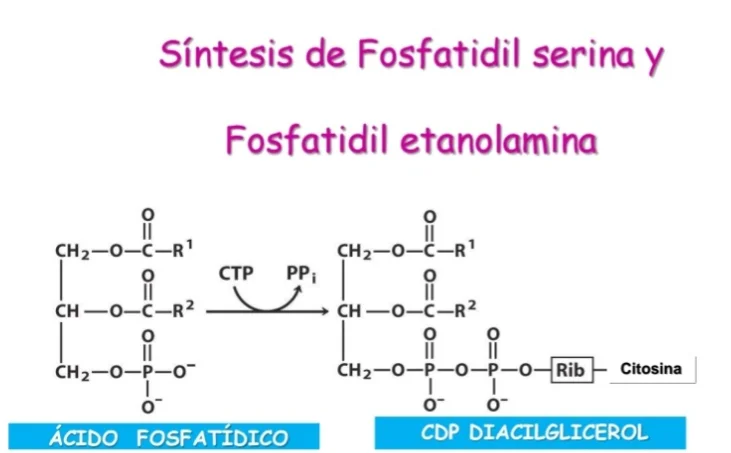
Puede estar activado el ácido o el grupo cabeza;
Colesterol
El colesterol es el Lípidos más conocido por el público, es esencial en los tejidos animales ya que forma parte de las Membrana Plasmáticas y le brindan cierta fluidez. Es insoluble en agua por lo que requiere de transportadores, pero tiene el problema de que el exceso no puede ser catabolizado.
Proviene de la dieta, o es sintetizado en el Hígado, a partir de la acetilCOA. Por lo que no es indispensable consumirlo.
En situaciones normales hay un equilibrio entre el colesterol absorbido por la dieta, el sintetizado y el eliminado.
El que viene de la dieta llega como Esteres con otros lípidos, por lo que es necesario hidrolizarlo con la colesterol esterasa, y luego el colesterol difunde de forma pasiva un poco por la membrana. Aunque la mayoría es absorbido por transportadores de membrana.
Aunque la mayoría es endógeno, secretado en la bilis en el intestino.
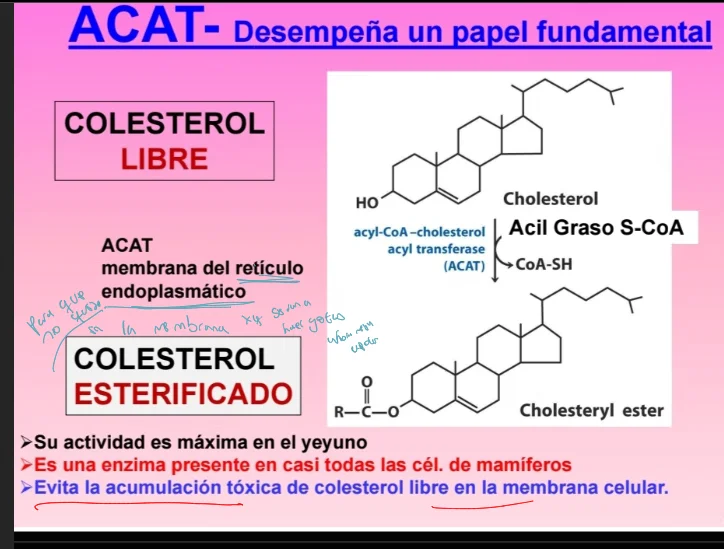
Ni bien ingresa a la célula, el colesterol es Esteresificado, para que no se acumule en la membrana celular, queda totalmente Apolar, y se acumula en gotas:
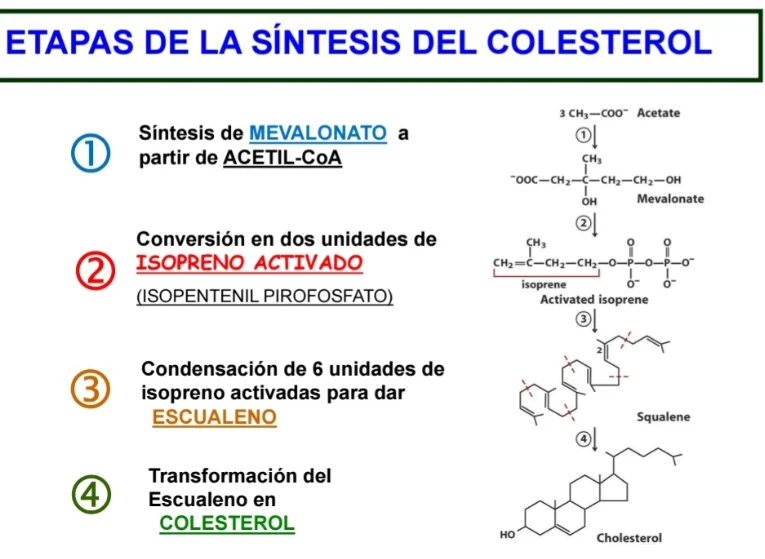
Es sintetizado en el Citoplasma, y todos los Carbonos vienen del acetato.
La etapa más regulada es una reducción en la síntesis de mevalonato, 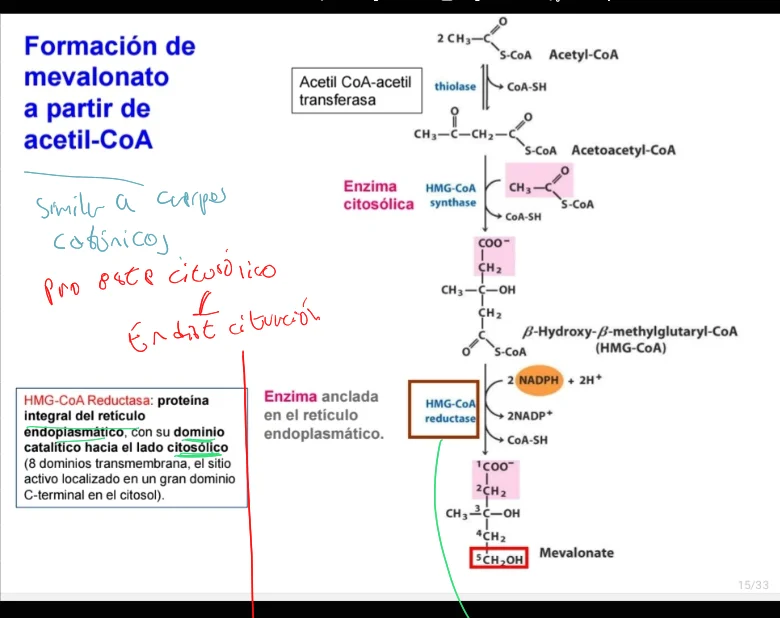
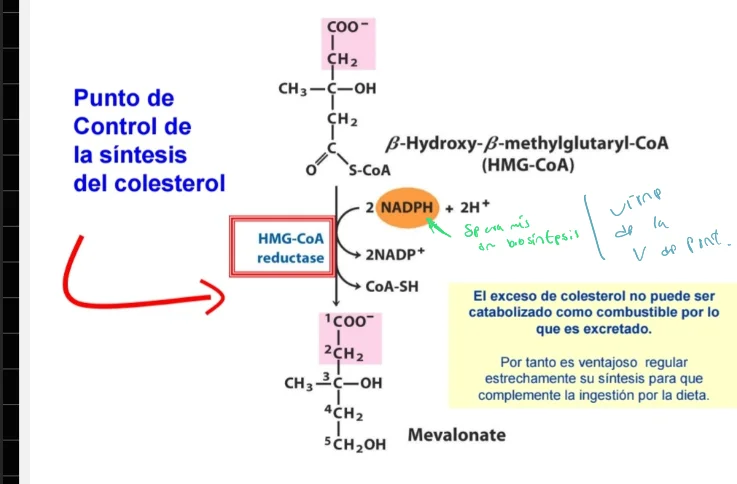
Como no se puede catabolizar, es muy regulada por la síntesis. Están reguladas con la Insulina y Glucagón. 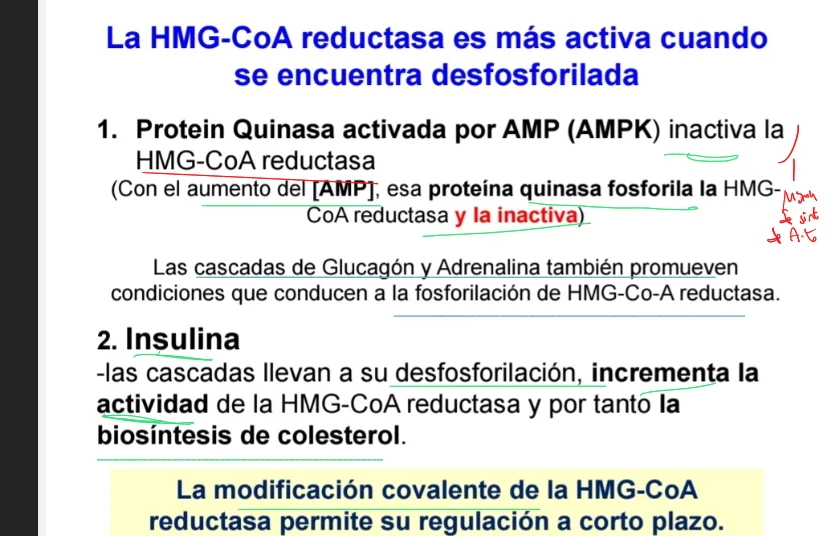
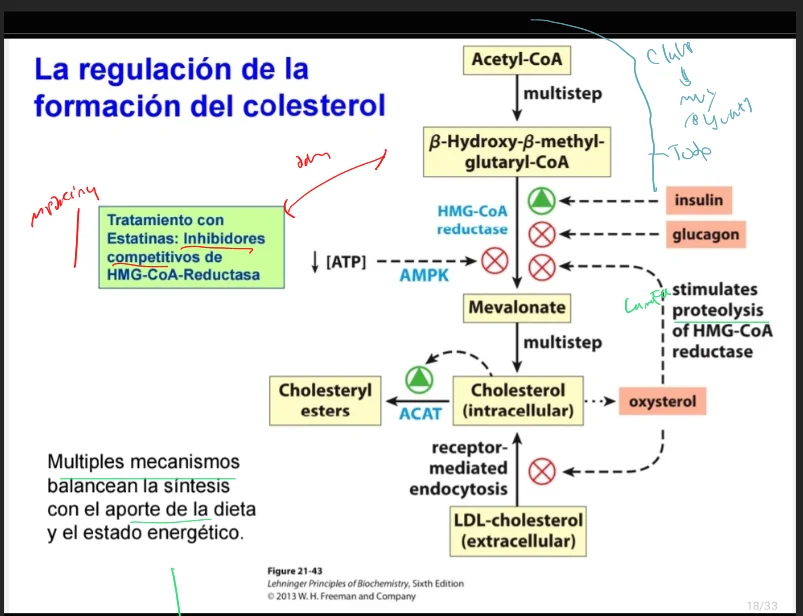
También hay regulación transcripcional, y degradación de la HMG COA Reductasa.
También se activa la ACAT, que favorece su esterificación para el almacenamiento. 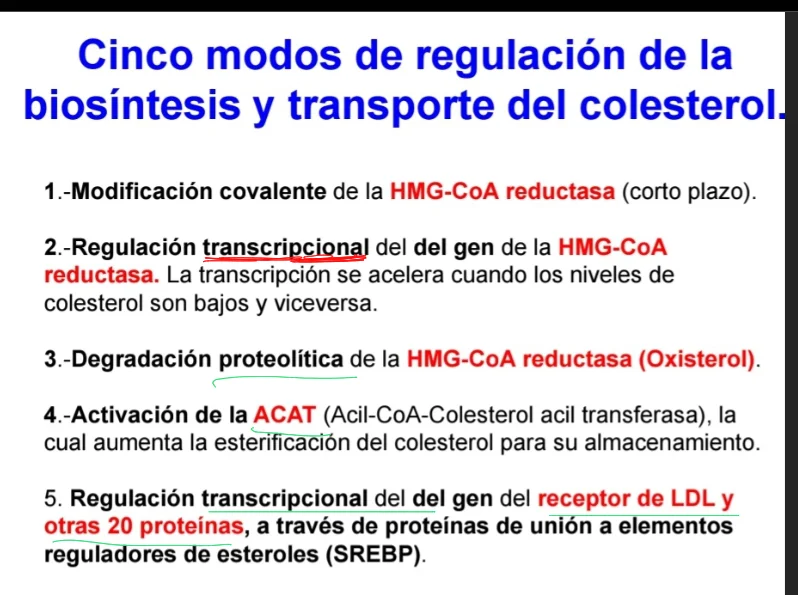
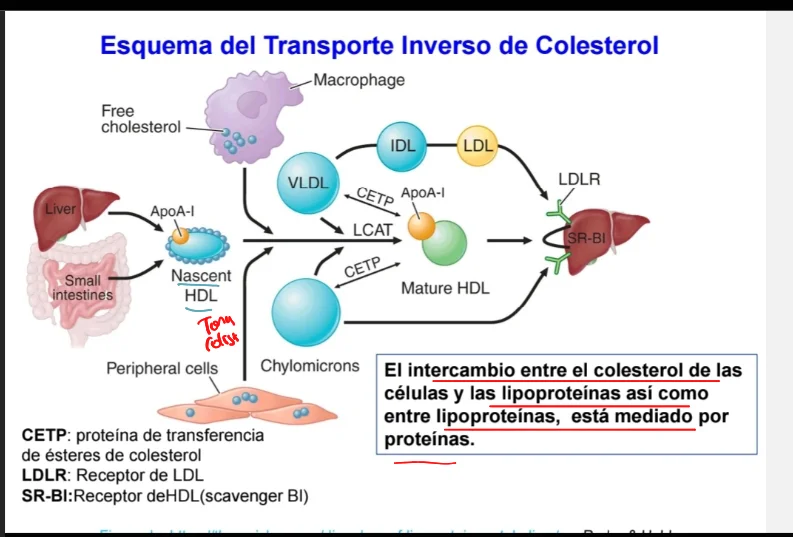
Luego de sintetizado, es transportado por las Lipoproteínas:
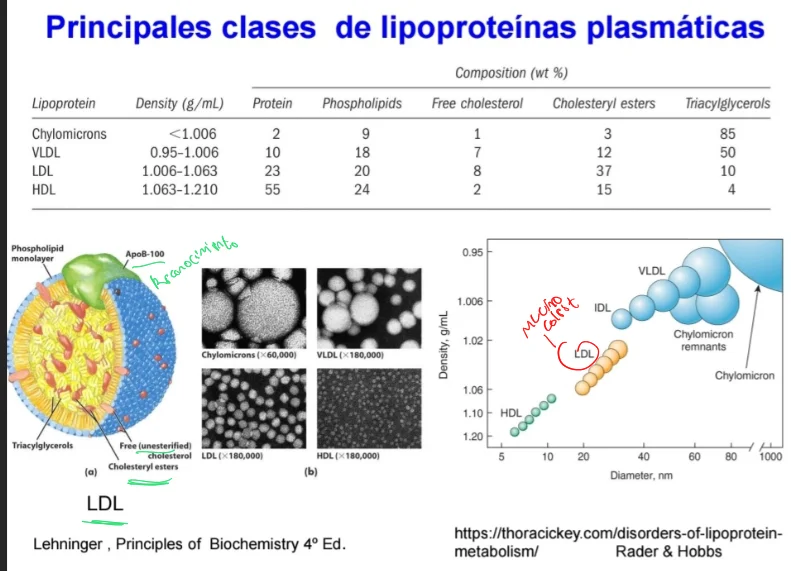
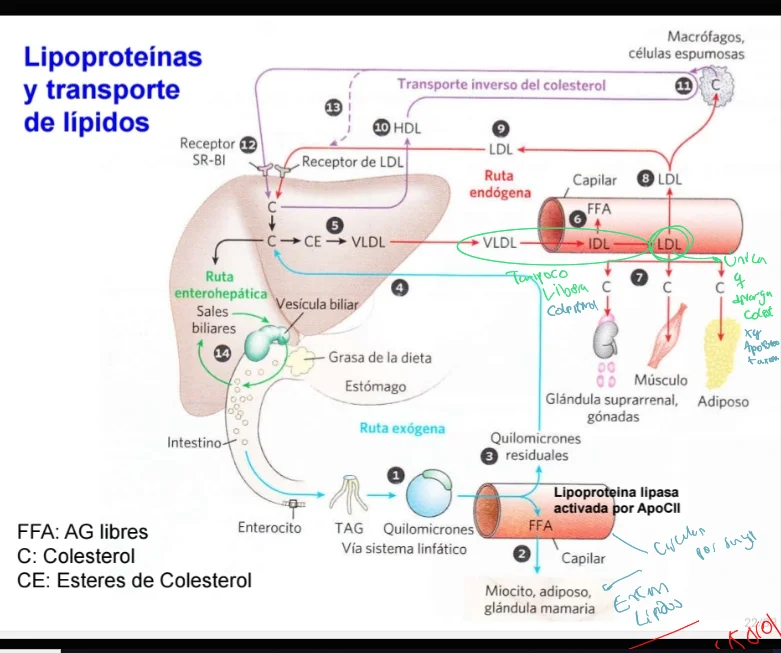
Salen siendo las de menor densidad, y se van descargando hasta volver como IDl o VLD,
También están las HDL que van recogiendo colesterol libre en la sangre.
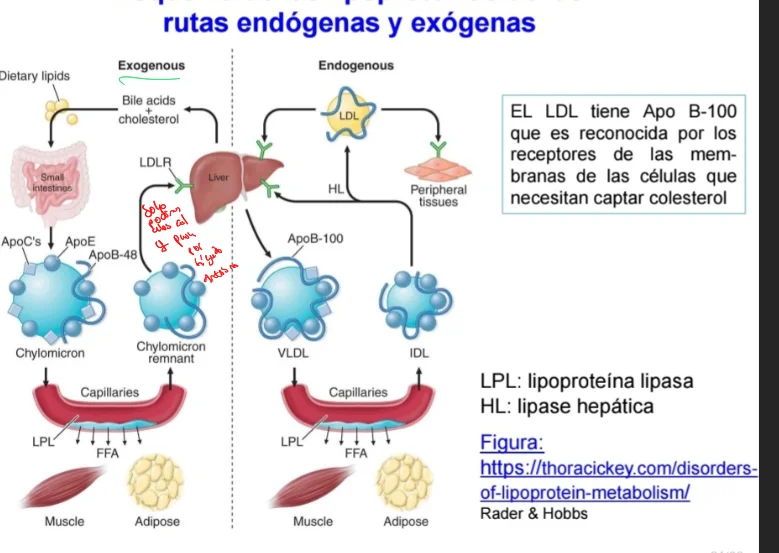
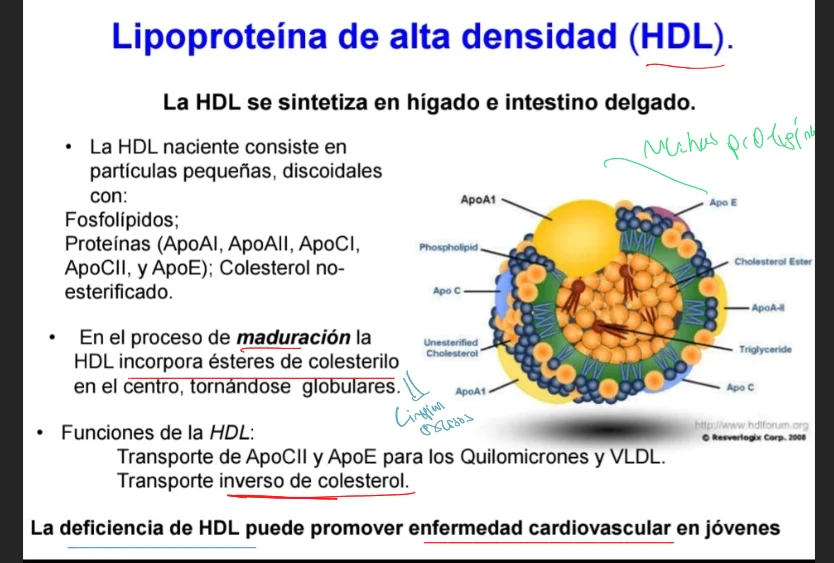
Luego de cargado el HDL vuelve al Hígado y descarga el colesterol por un receptor específico:
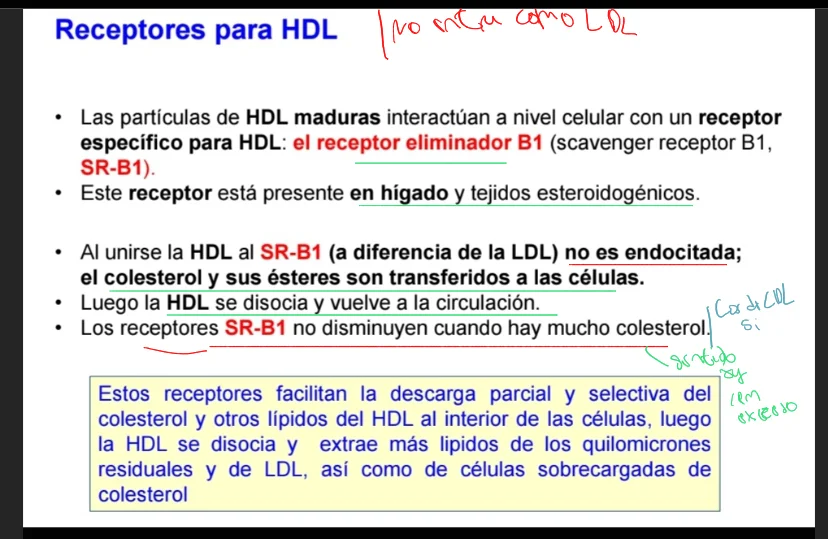
Es bueno porque previene la formación de placas en las venas y arterias.
Proteínas
La síntesis de Proteínas implica la traducción de bases de ARN a aminoácidos.
Es el más complejo de los mecanismos biosintéticos. Tiene un alto costo energético porque requiere además de la formación de enlaces, mantener cierto orden.
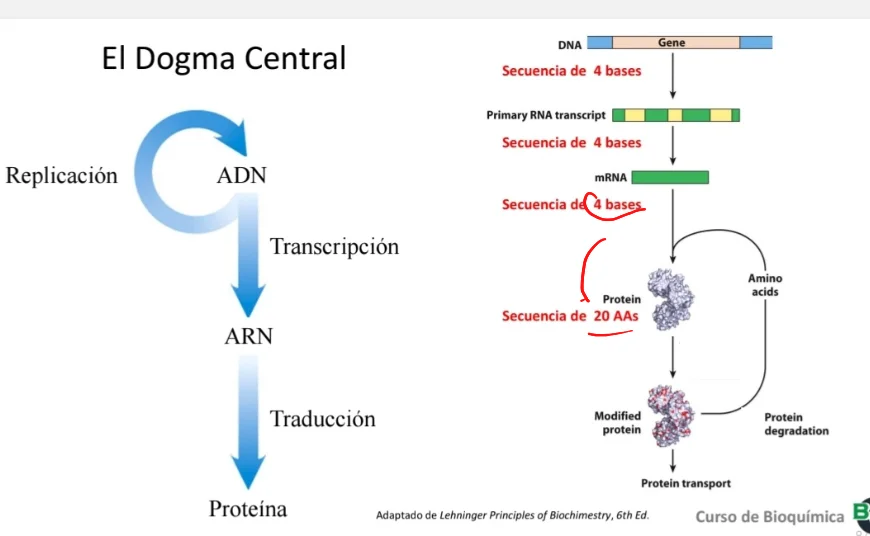
El ADN tiene secuencias de 4 bases que son transcriptas 1 a 1 a ARN, pero luego estas pueden ser transcriptas a 20 aminoácidos distintos. Esto es por el Código Genético.
Tres bases codifican un aminoácidos, esto es llamado un Codón. Pero más de un triplete lleva a un aminoácidos.
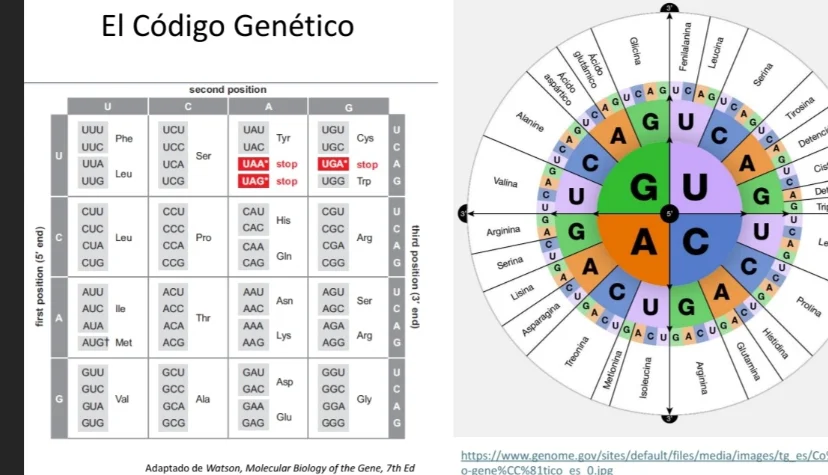
Hay codones de inicio y de terminación, importantes para determinar el marco de lectura y el sentido.
AUG es el codón de inicio más común.
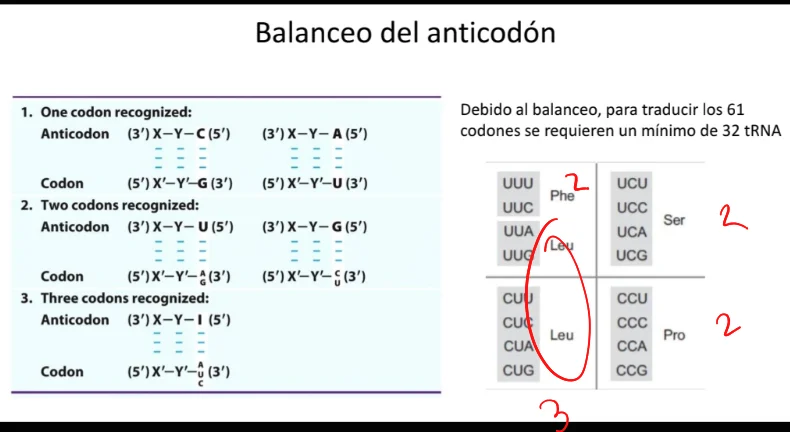
Para pasar de ARN a aminoácidos están los Arn de Transferencia, pero estos no son totalmente específicos, la tercer base puede variar un poco:
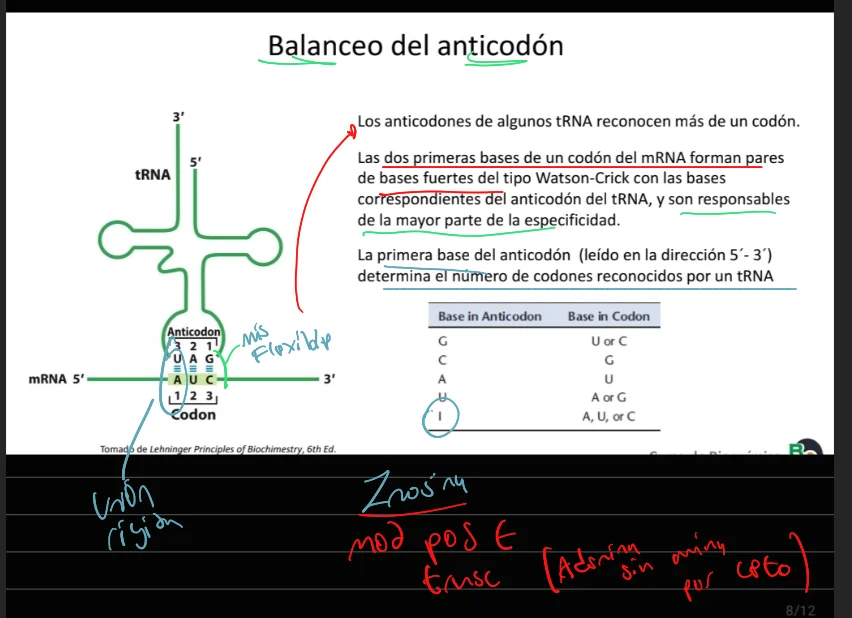
Esto permite usar menos aminoácidos de transferencia, y no necesitar uno por aminoácidos.
La síntesis tiene tres fases, inicio elongación y terminación. En las que participan los tres tipos principales de ARN.
Además se requiere de la activación de los aminoácidos. Por eso tiene tal costo energético.
La Traducción se da gracias al Ribosoma, en el sitio activo solo hay ARN por lo que son Catalizadores de ARN, Ribozimas.
Los ARNt son los adaptadores para leer y traducir.
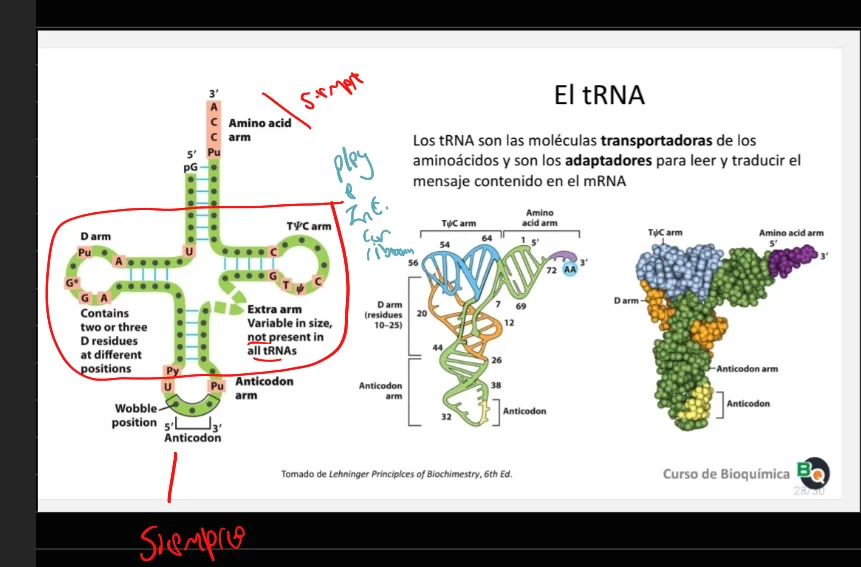
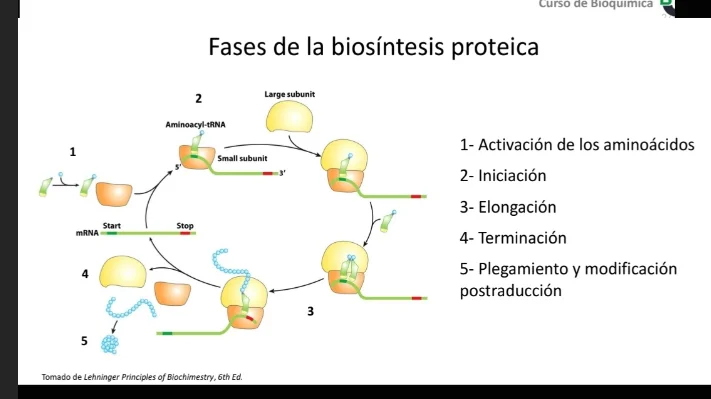
Primero se da la Activación de los aminoácidos en el Citosol. Donde las Aminoacil ARNt Sintetasas esterifican a los aminoácidos con sus ARNt, 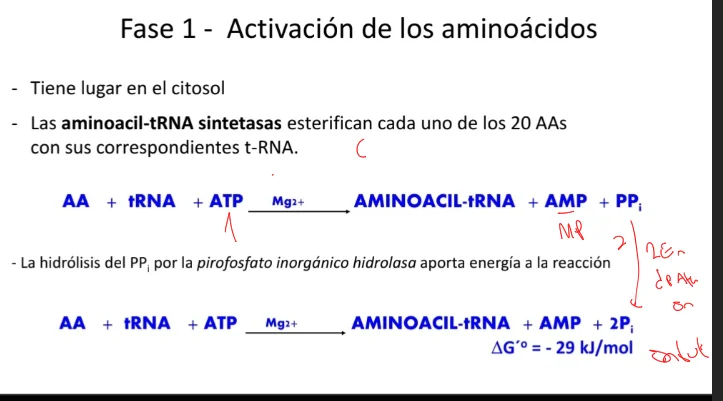
Que se da en dos etapas, primero se activa con ATP: 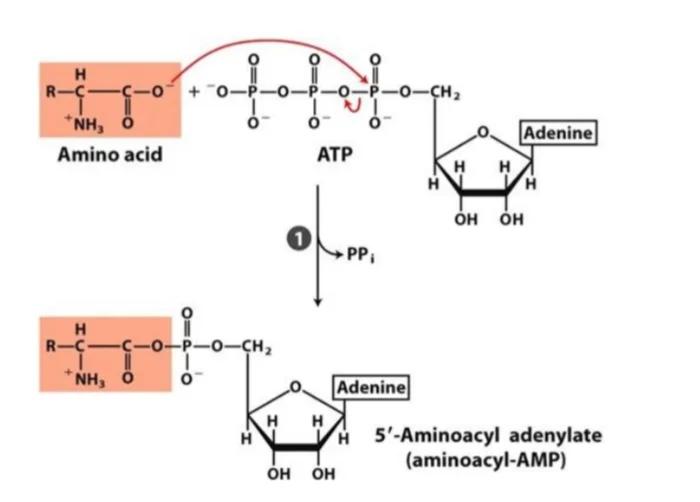
y luego si con al ARN:
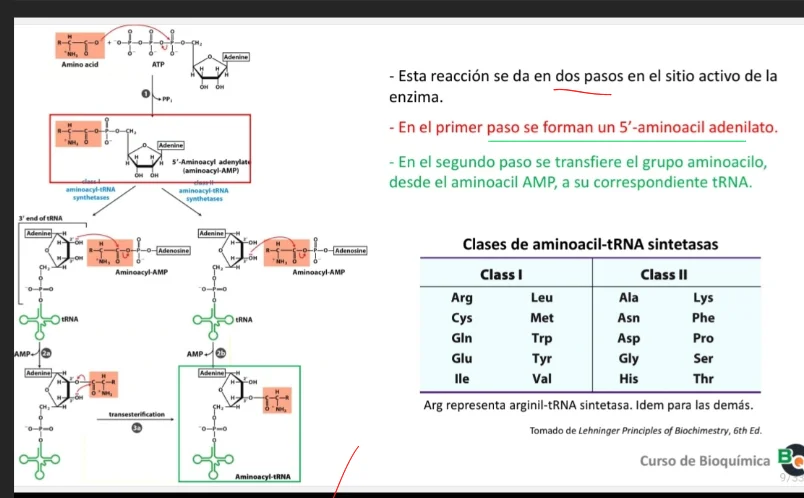
Pero el Ribosoma no puede identificar si está cargado correctamente o no, por lo que este paso es clave. Pueden estar implicados 10 o más Nucleótidos para la identifcación del ARNt:
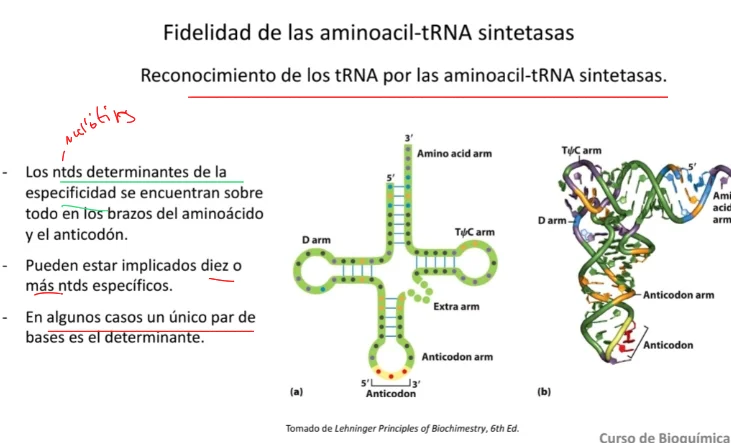
Además las Aminoacil ARNt Sintetasas tienen actividad hidrolítica aumentada frente a aminoácidos mal cargados.
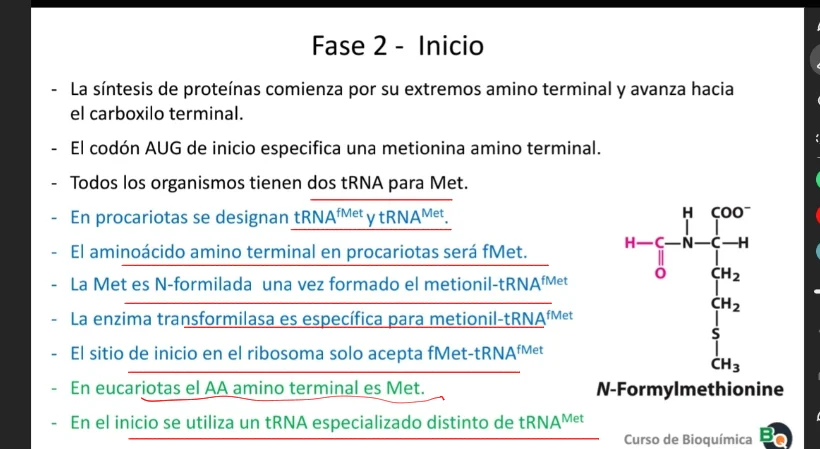
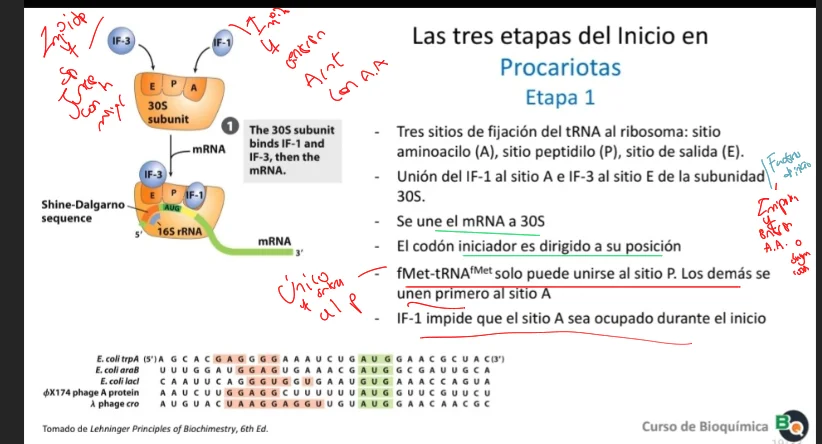
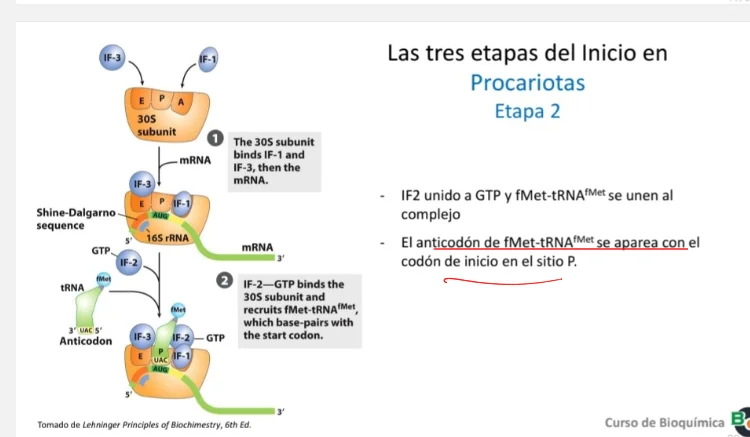
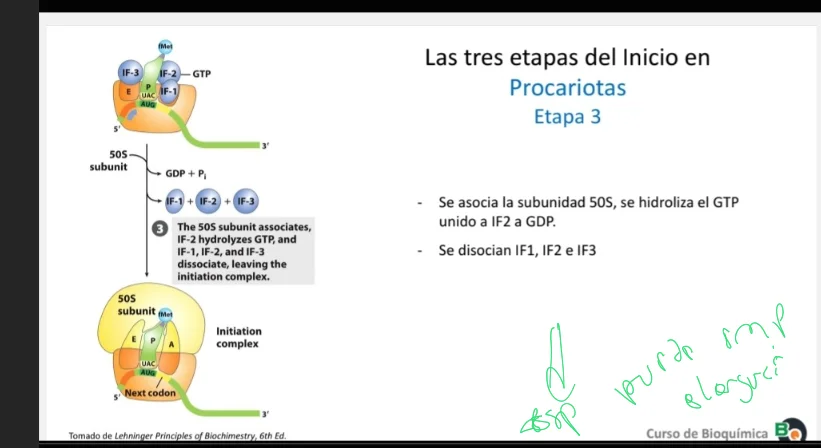
Luego inicia a partir del Amino Terminal. A partir del codón AUG, que además siempte es Metionina, pero se usa un ARNt distinto que el convencional porque es una modificada:
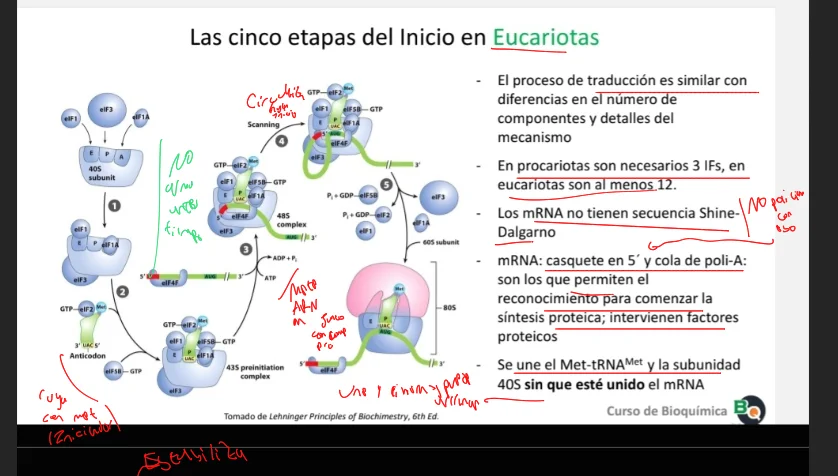
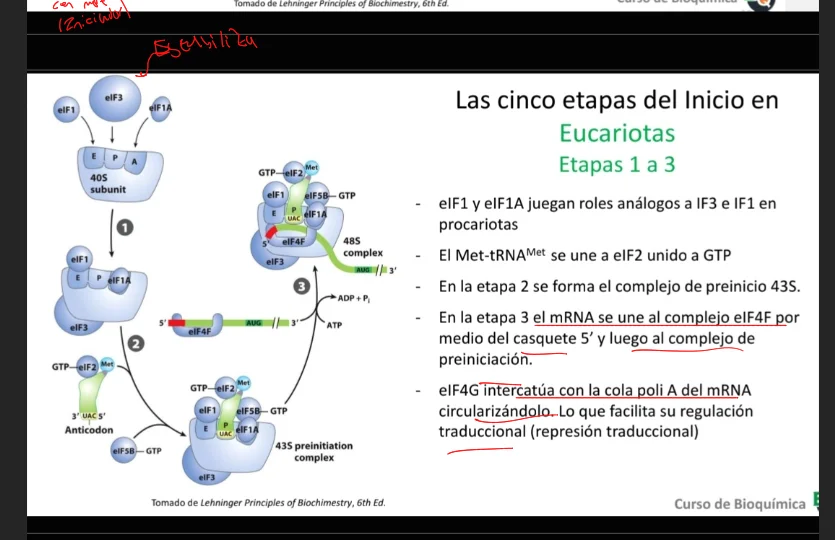
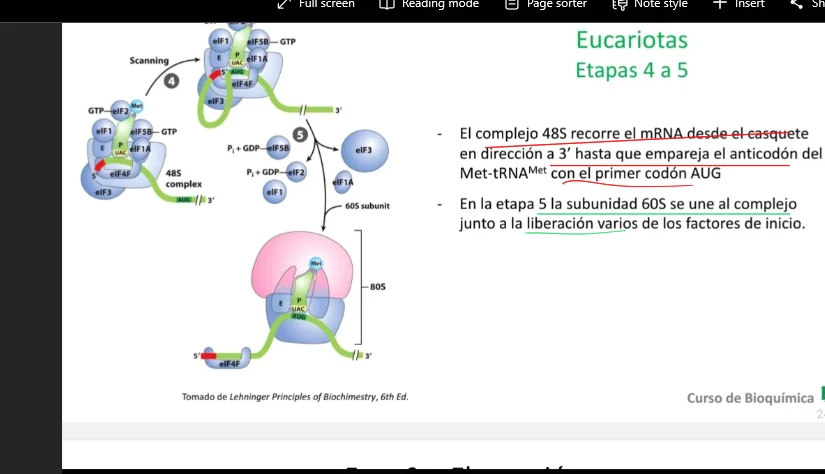
Y luego la elongación, que se da en tres fases, unión del entrante, enlace y tranlocación:
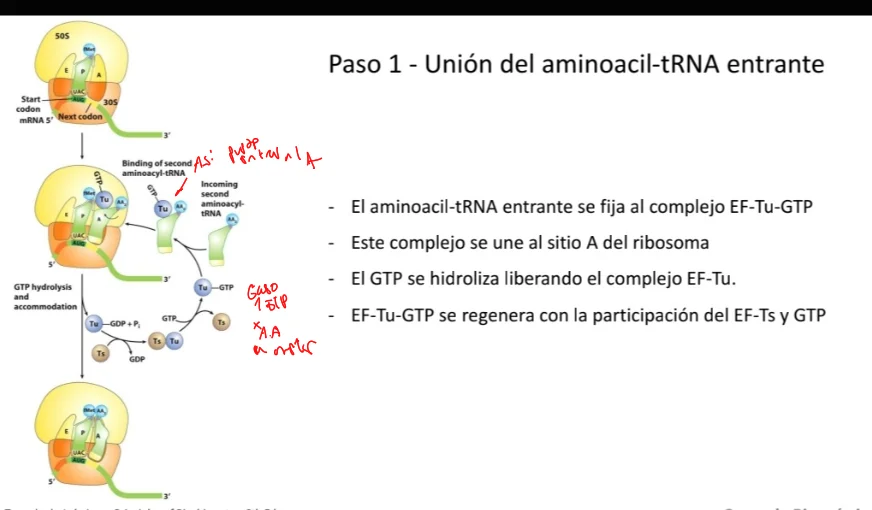
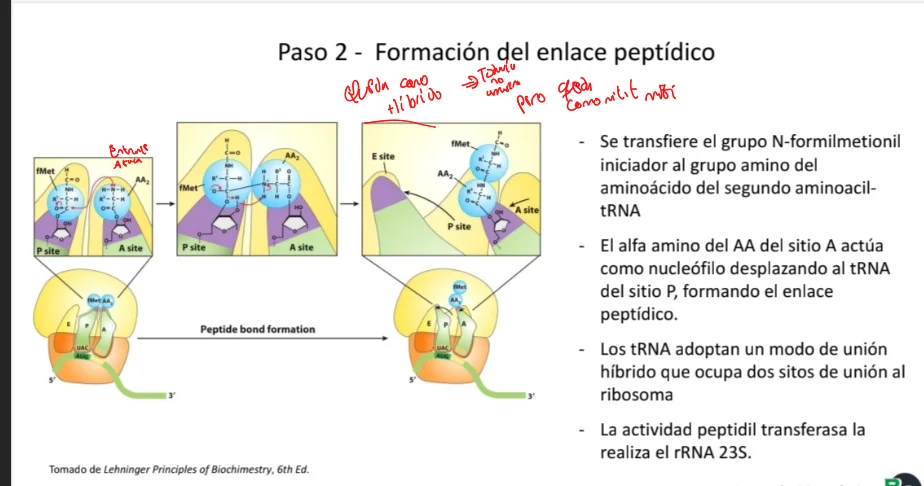
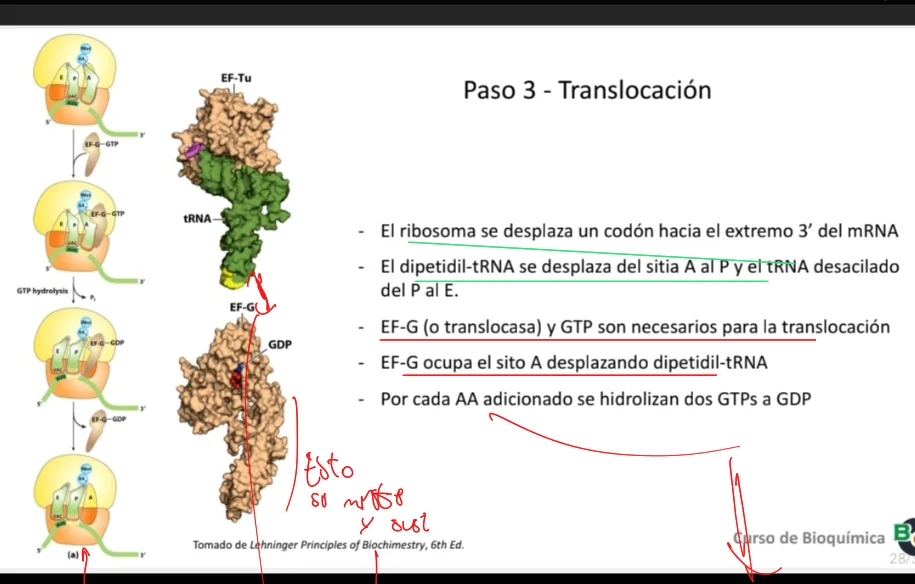
Y luego la terminación.
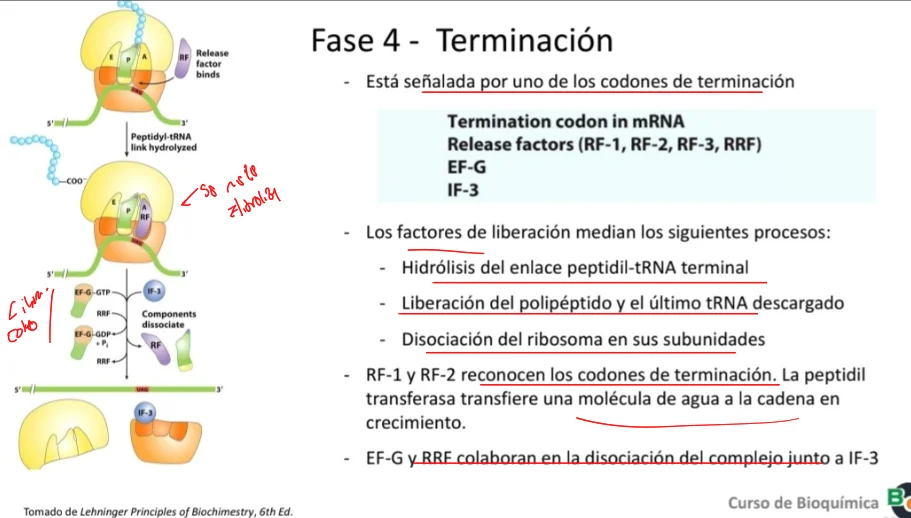
Además luego se dan varias modificaciones postraduccionales.
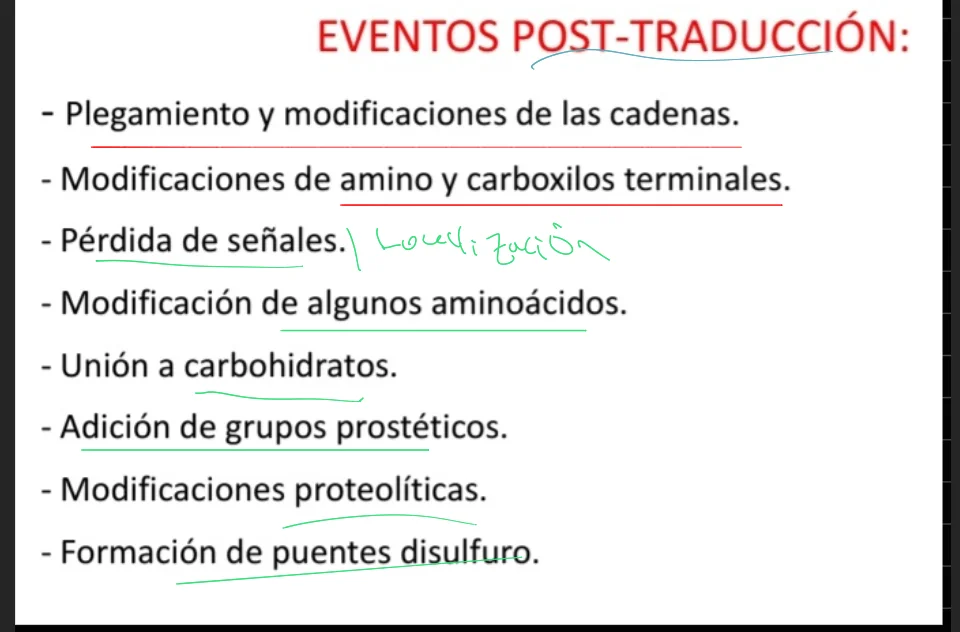
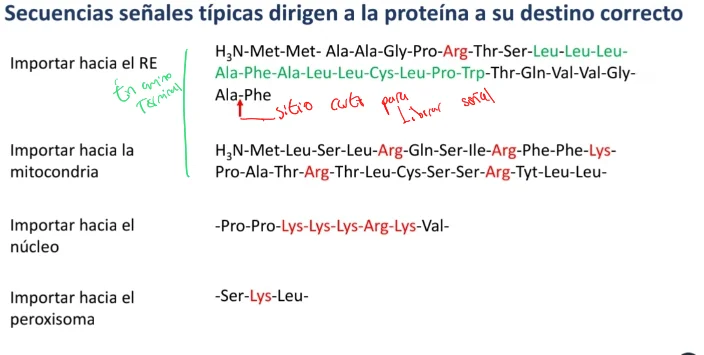
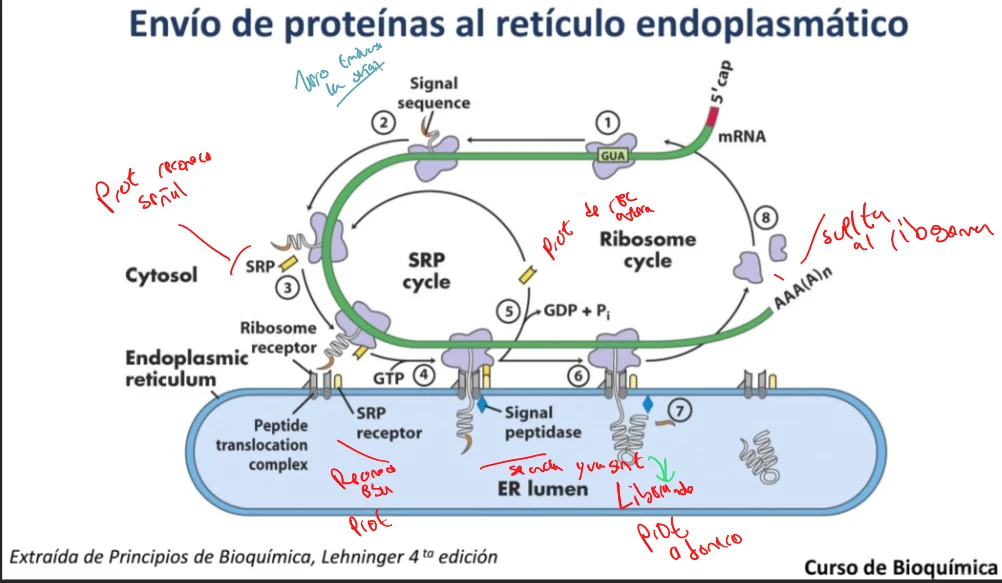
Después, las Proteínas que van a ser exportadas, o van a ir a la membrana pasan por el Retículo Endoplasmático donde son modificadas. Saben a donde ir porque tienen secuencias de aminoácidos señales.
La señal es reconocida mientras se está sintetizando, lo que hace que vayan quedando directamente dentro del Retículo Endoplasmático.
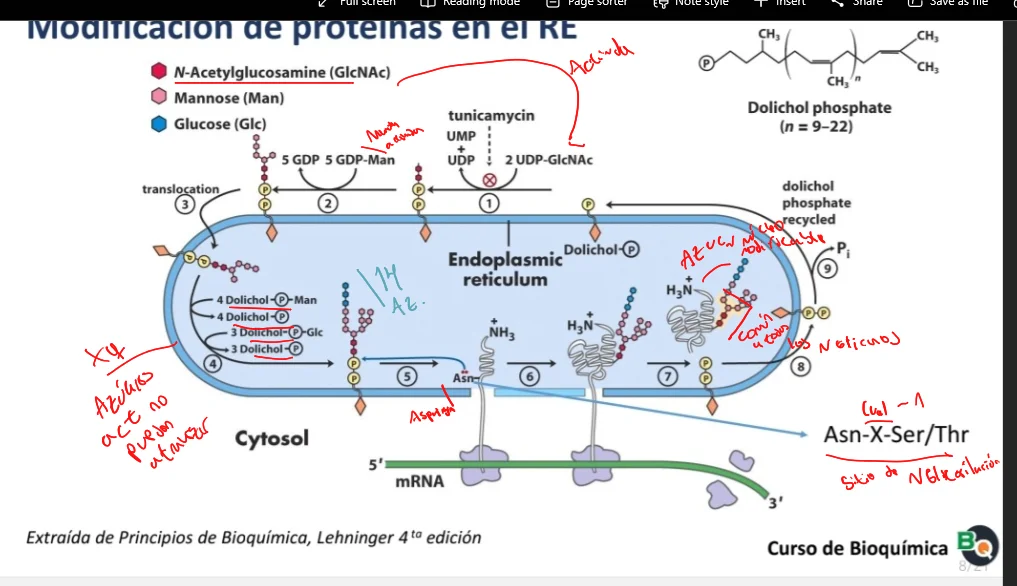
Una modificación importante es la Glicosilación, depende de Dolicol fosfato, una molécula que activa las glucosas para que se puedan ir añafiendo:
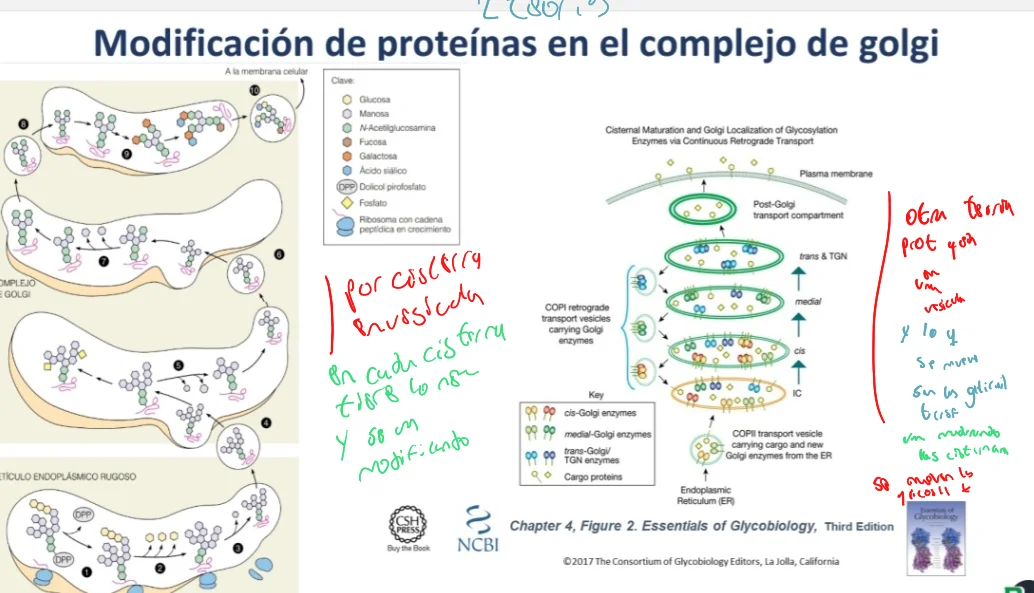
Luego van pasando de cisterna en cisterna modificándose, con glicosil transferasas del Aparato de Golgi.
Igualmente hay dos teorías, si lo que se mueven son las Proteínas a modificar de cisterna en vesículas o si son la glicosil transferasas.
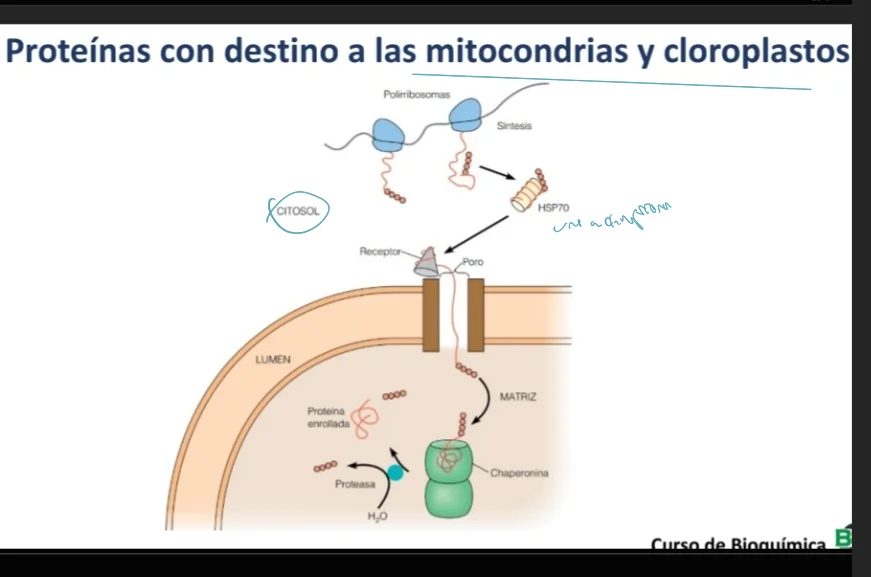
Las que van a la Mitocondria se unen a chaperona, que tiene un receptor y transportador:
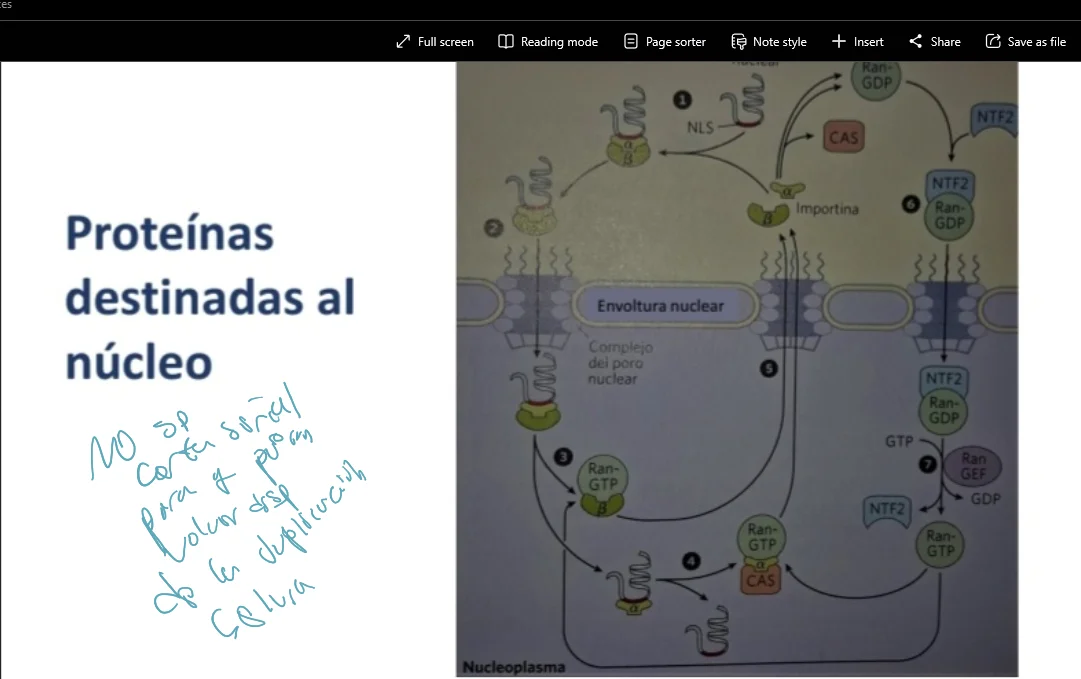
Y las del núcleo, que son raras porque la señal no se puede cortar, ya que al momento de la duplicación celular, deben saber donde ir:
Degradación
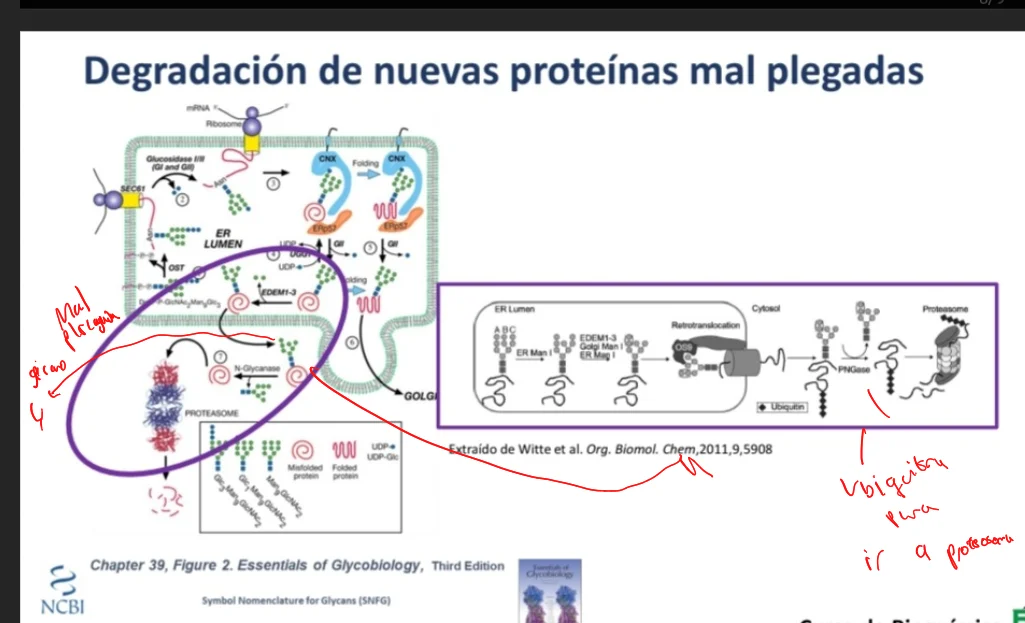
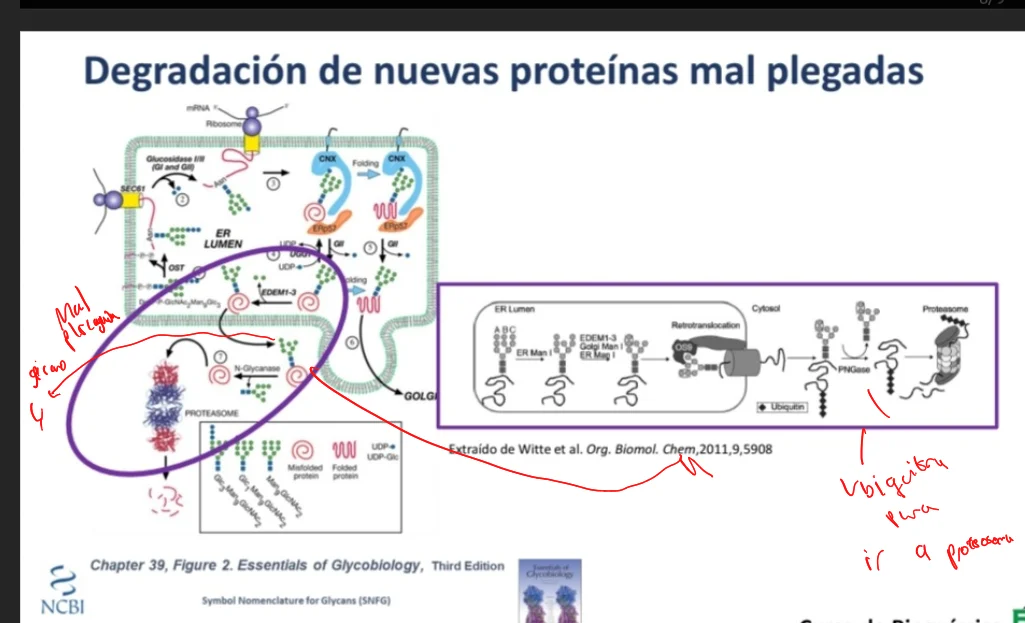
Para ser degradadas pueden ser enviadas al lisosoma de la Célula, o directamente en el Citosol, pero ahí está muy regulado para no degradar a todas. Por lo que no son Proteasas, si no que está también el proteasoma.
Primero deben ser marcadas con varias ubiquitinas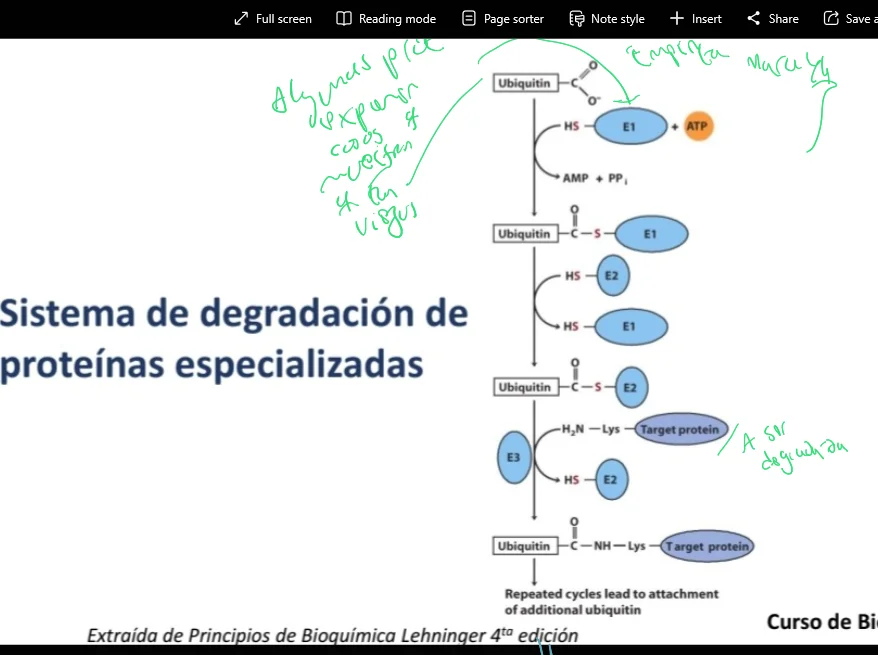
Este es el destino por ejemplo para las proteínas mal plegadas:
Regulación de la Expresión Génica
La expresión de un gen puede ser aumentada o disminuida desde su expresión Constitutiva , esto se llama Inducción. o Represión.
Se da ya sea por la fortaleza de los Promotores: 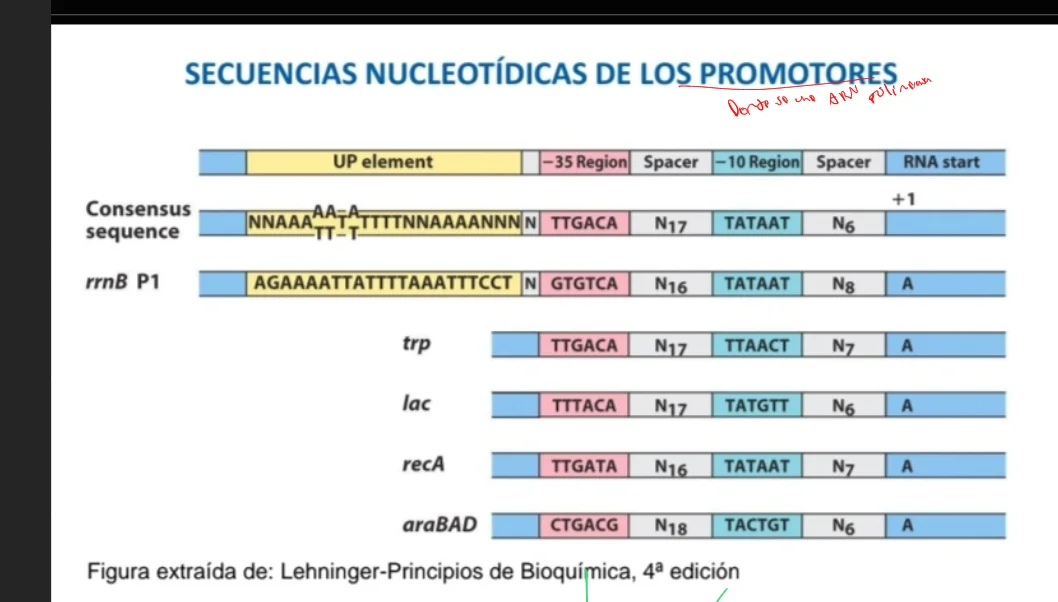 Los Promotores muy similares a los consenso serán más fuertes, y por lo tanto más expresados. Esto tiene un efecto en el nivel constitutivo.
Y luego está el papel de las Proteínas reguladoras, que si pueden unirse a distintos promotores y alterar su expresión.
Estas proteínas son llamados Factores de Especificidad
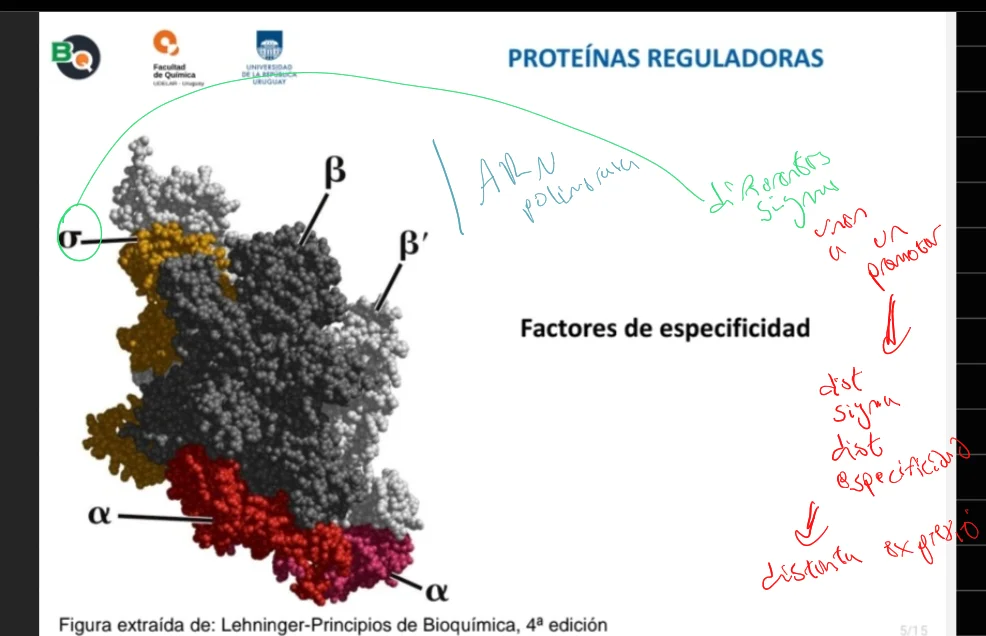
Pueden ser represores:
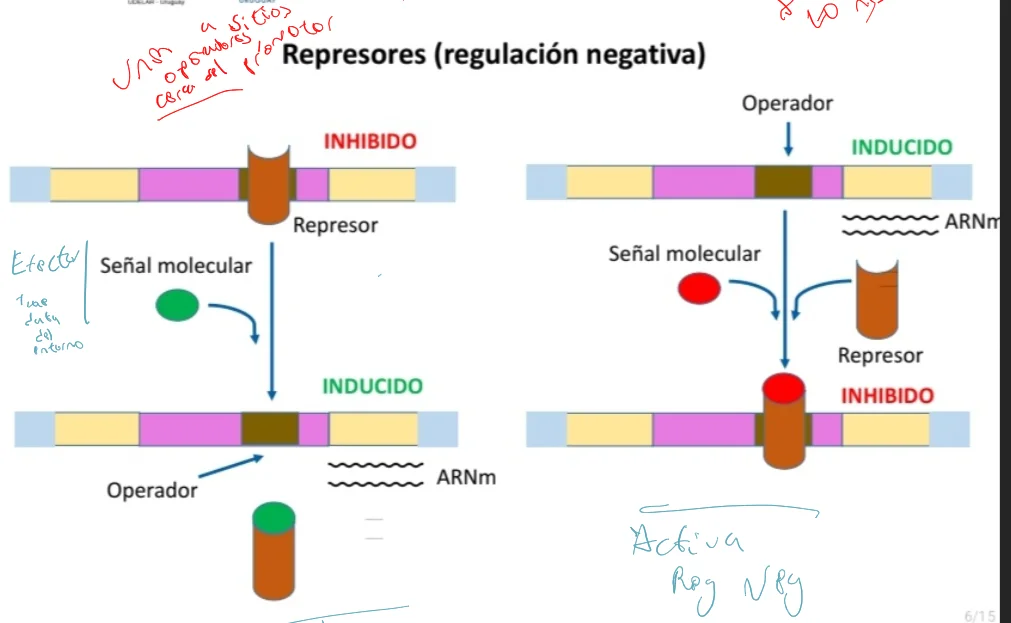
O activadores:
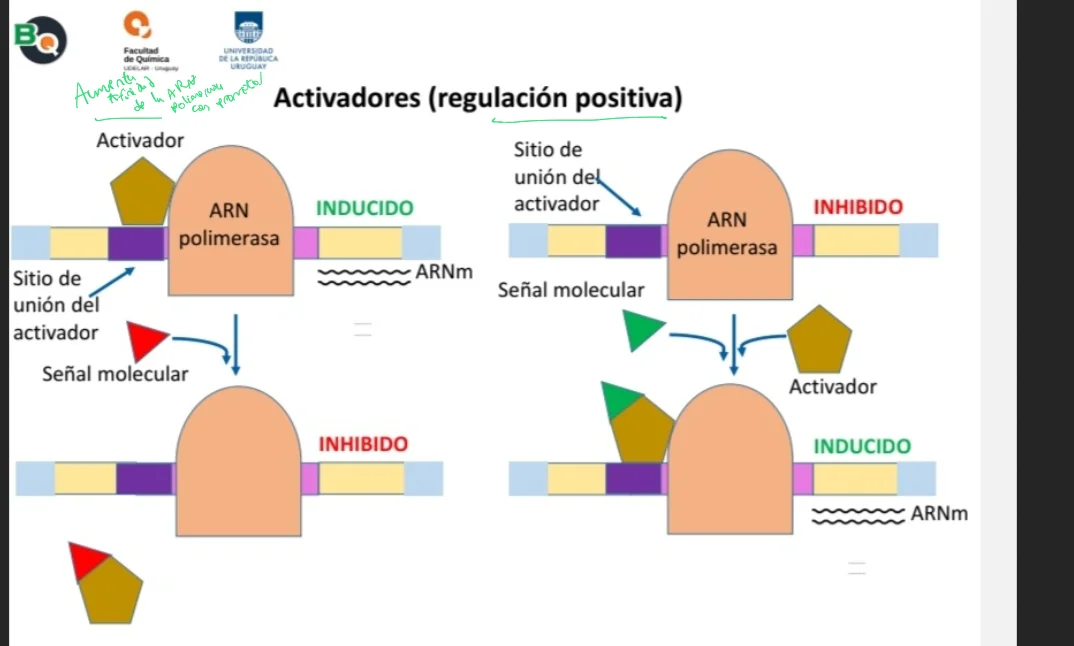
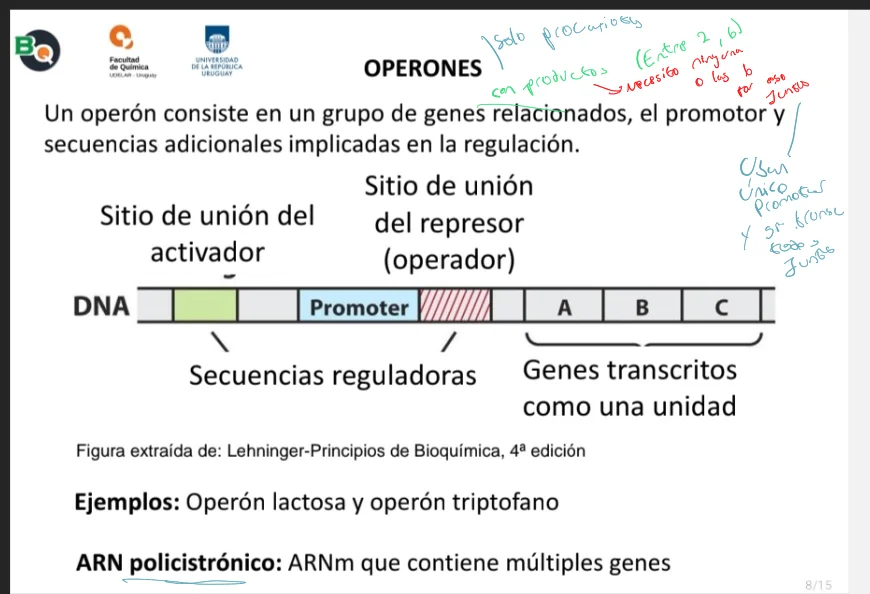
Actúan sobre los Operónes que son un grupo de genes con el mismo promotor , y algunas partes que aydan a su regulación.
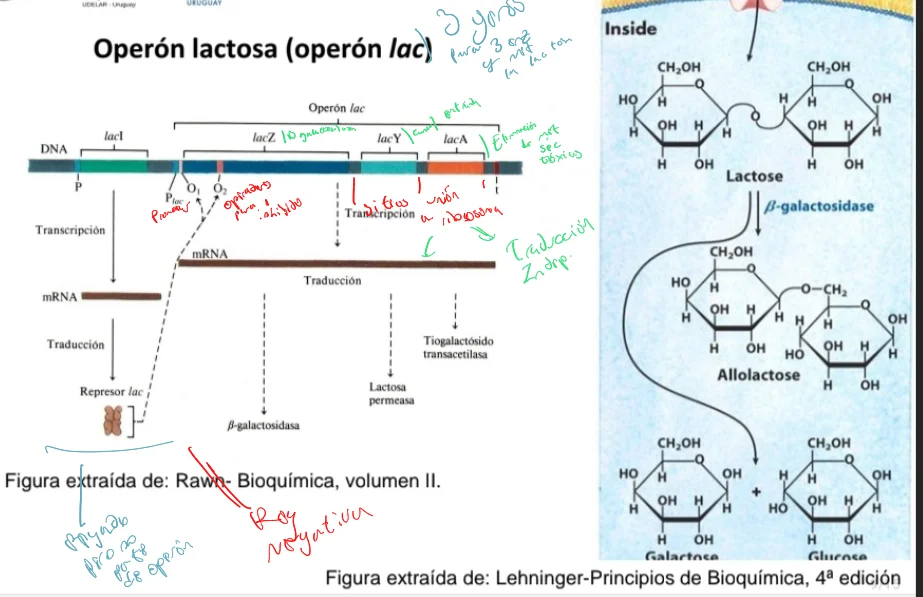
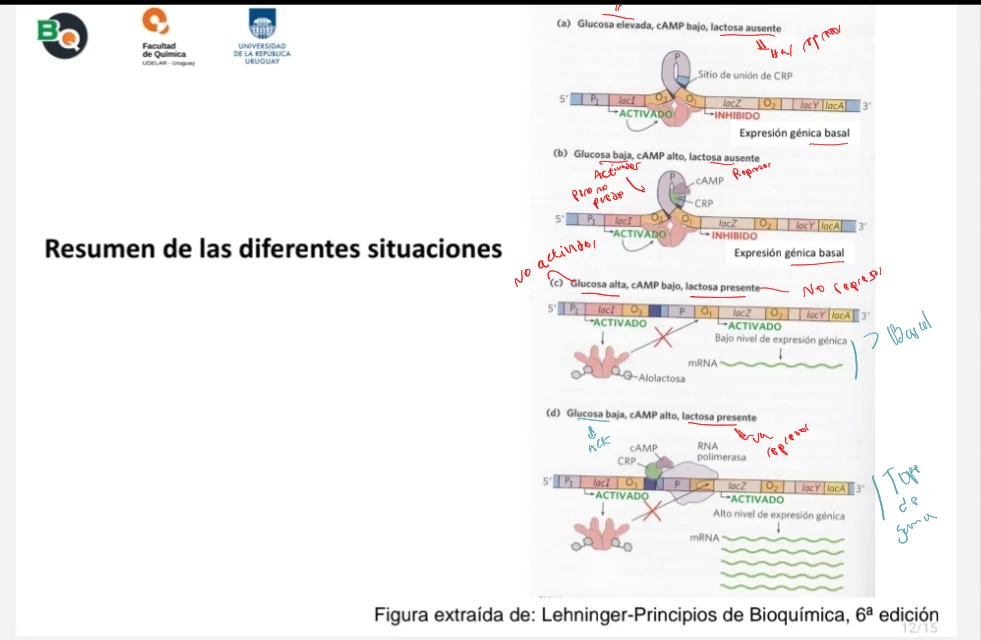
Por ejemplo el operón lactosa tiene info para las prot encargadas del metabolismo de la lactosa:
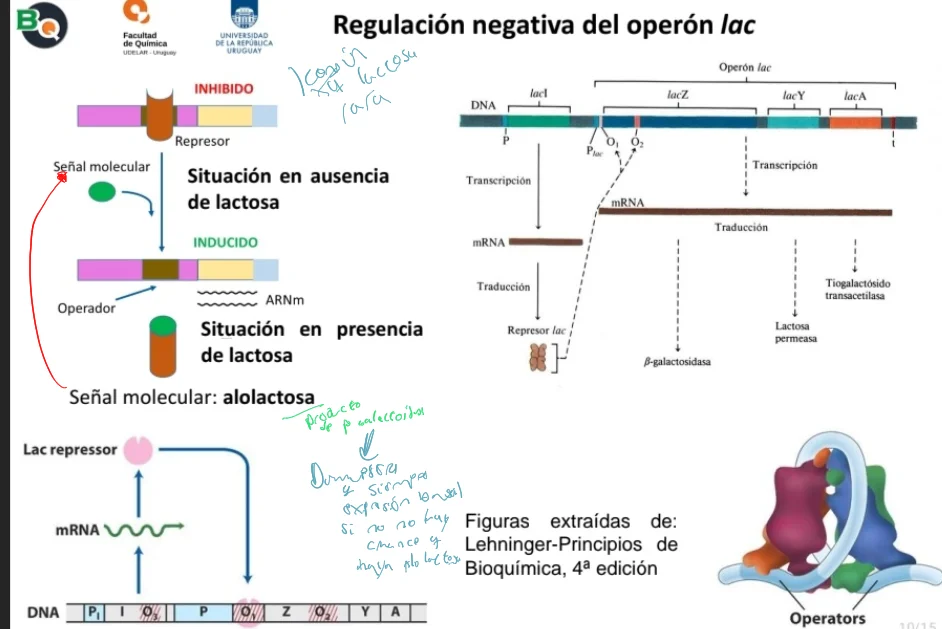
Que tienen regulación negativa donde se unen dos operadores que pliegan y disminuyen mucho la expresión.
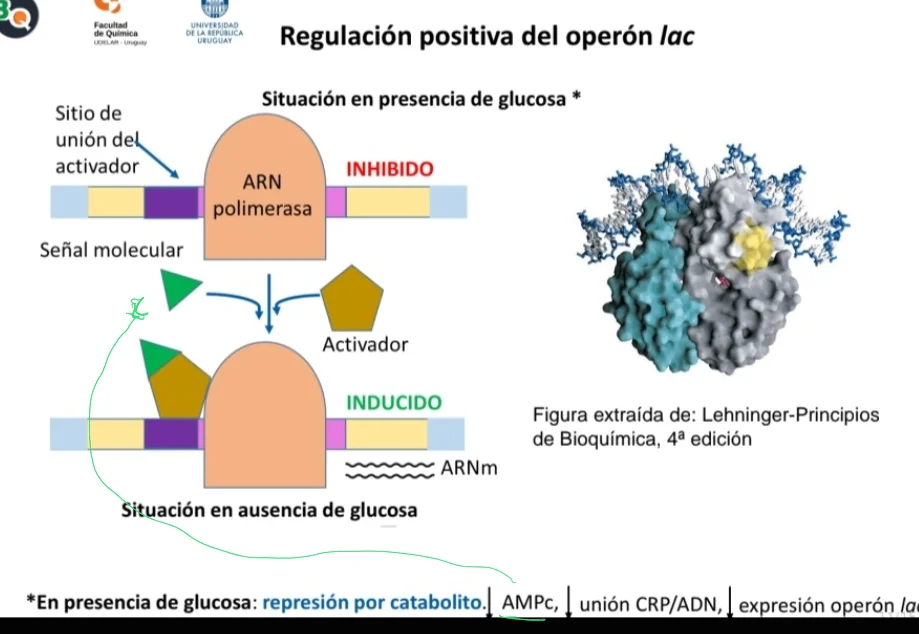
Tambiñen tiene regulación positiva según la glucosa. en presencia de esta se inhibe:
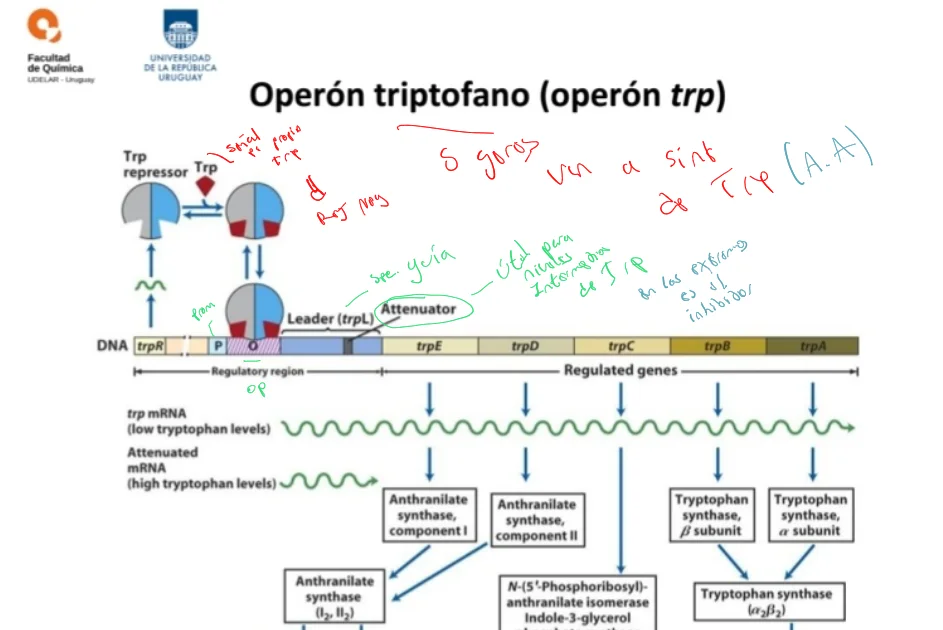
También está el operón triptofano, que además de regulación negativa, tiene un atenuador, que es útil a niveles intermedios de trp.
El atenuador se basa en la propia cantidad de triptofano. Si hay mucho se sintetizará muy rápido, y por lo tanto el atenuador se plegará y no permitirá más traducción:
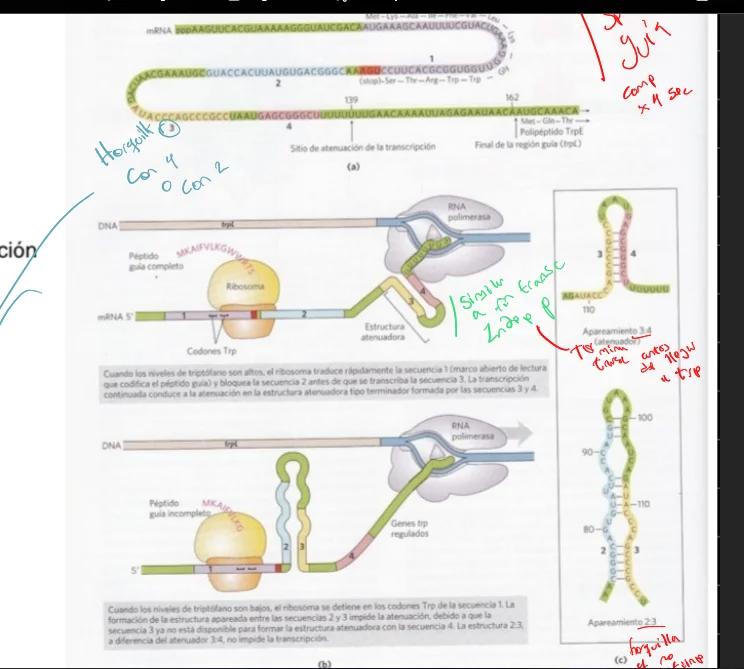
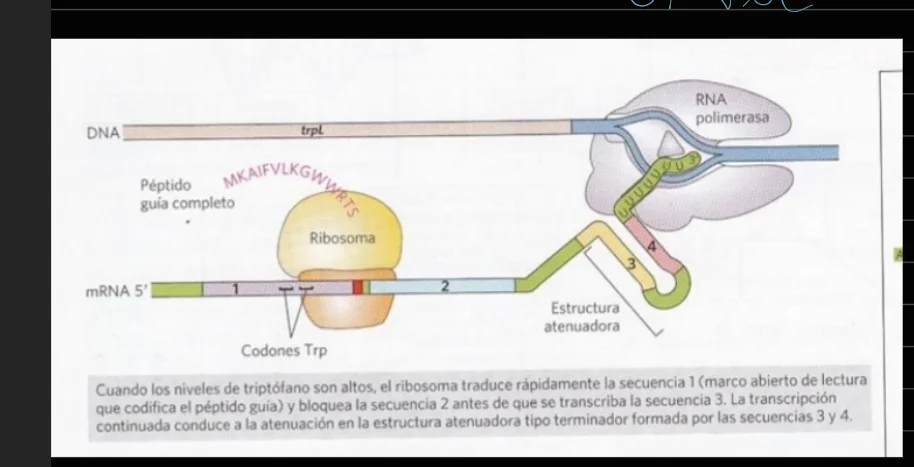
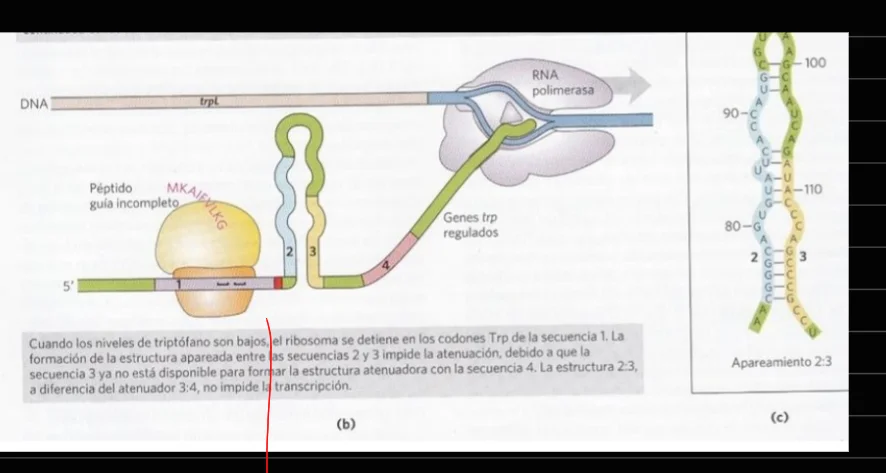
Entonces cada vez que pasa un ribosoma se va a una horquilla o la otra dependiendo de la velocidad a la que pase el ribosoma.
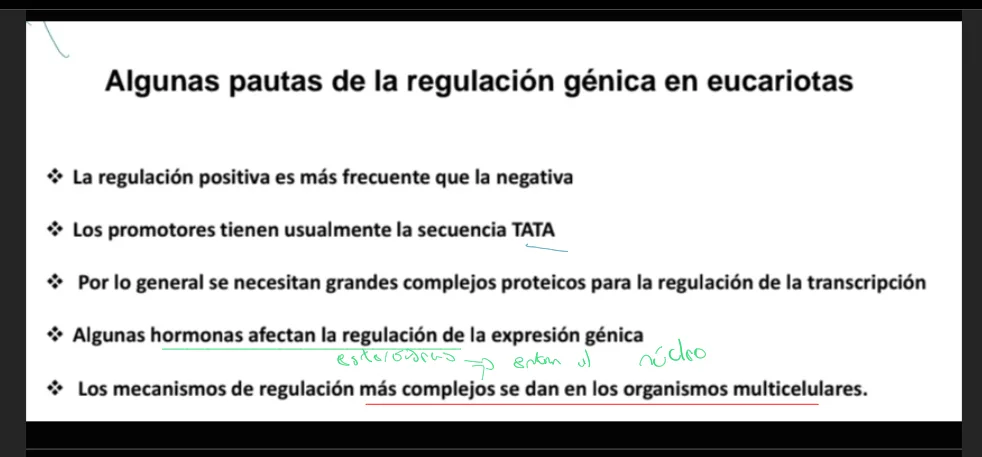
La cantidad de Nitrógeno está regulada para permanecer relativamente constante, ya que no existe forma de almacenamiento del mismo, y un exceso podría resultar tóxico.
Por eso, se deben ingerir con frecuencia, en especial los esenciales, que no pueden ser sintetizados por los humanos.
Su digestión empieza en el Estómago, Donde el ph ácido desnaturaliza las Proteínas y se liberan Zimógenos que se activan a ph bajo, que son proteolíticas.
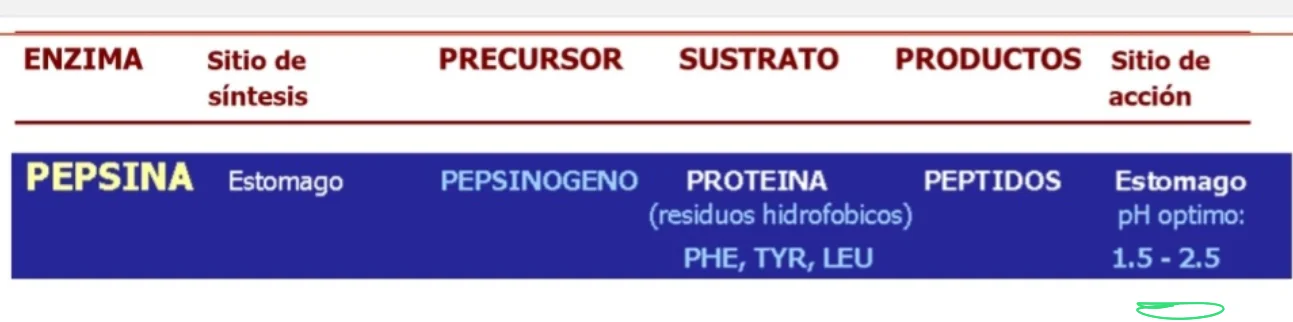
Luego llegan al duodeno, la entrada del intestino, lo que estimula mediante hormonas al páncreas para que libere enzimas proteolíticas, y libera base para neutralizar el ph:
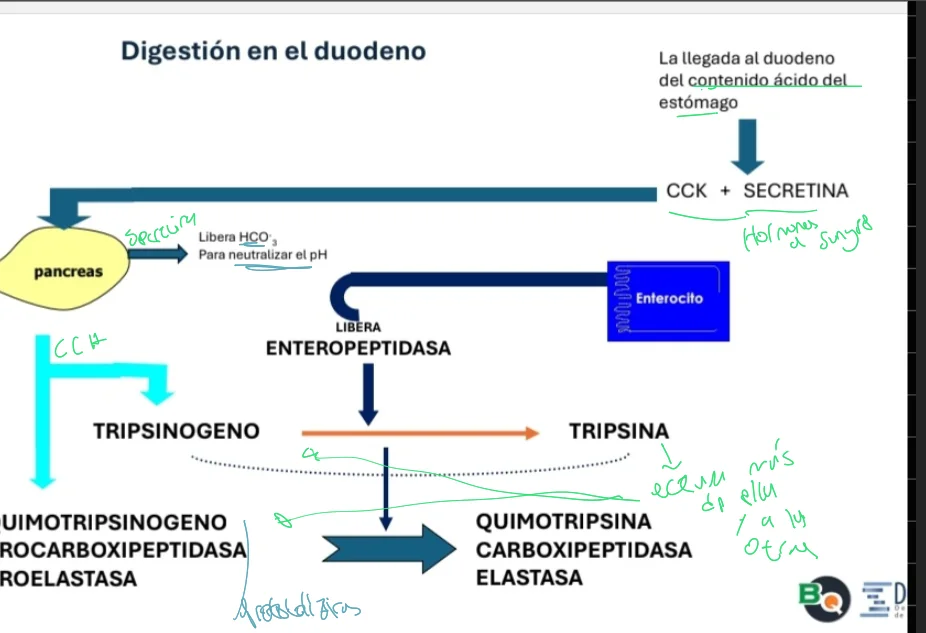
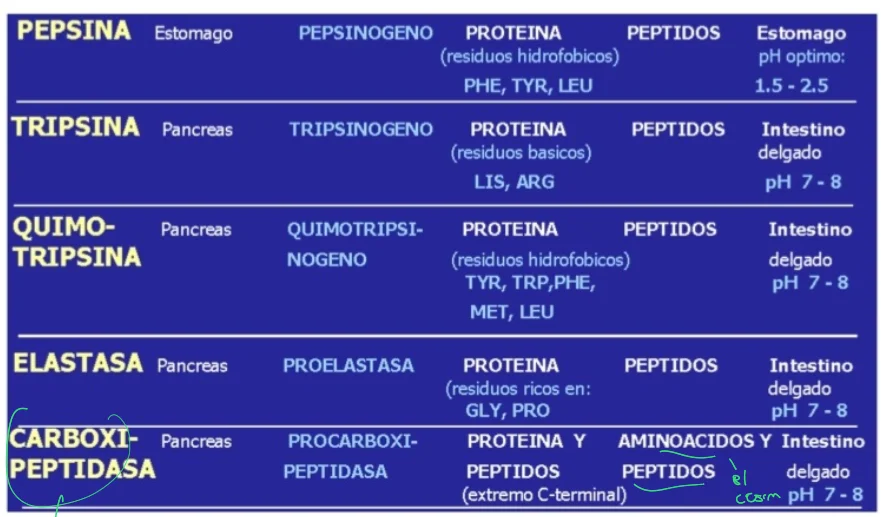
La Carboxipeptidasa es la única exoenzima. Todas cortan en lugares distintos por lo que son importantes.
Luego en el intestino los aminoácidos y oligopéptidos son transportados en cotransporte con sodioo protones:
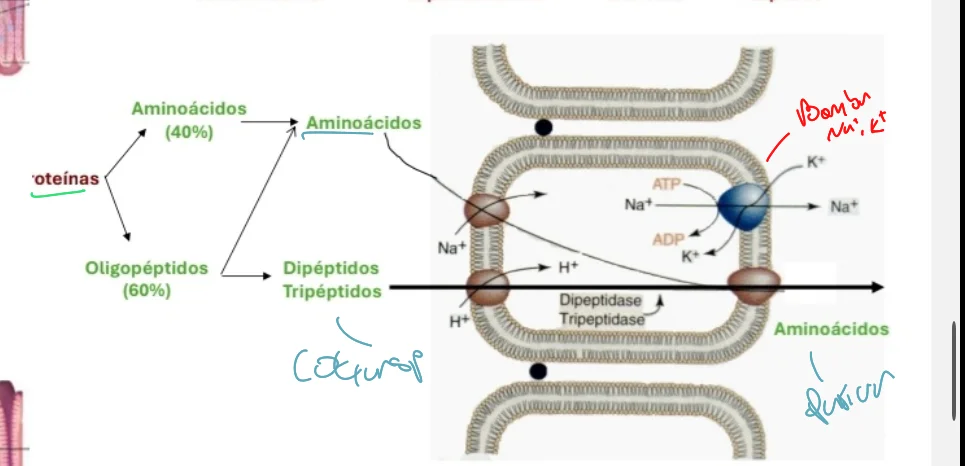
Es similar a la Glucosa.
Para cada tipo de aminoácidos hay distintos transportadores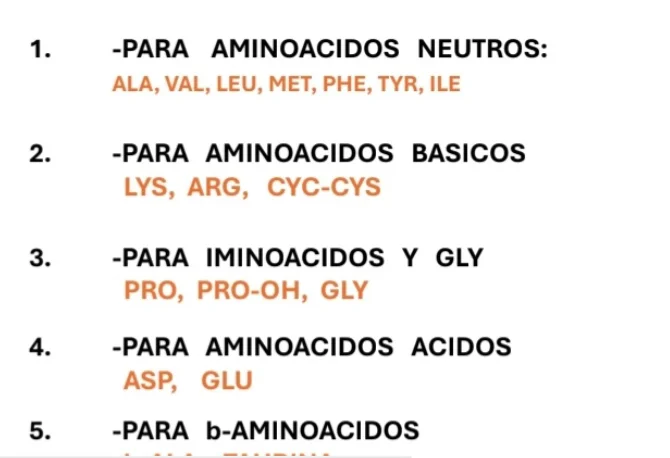
Además de para formar proteínas, se pueden hacer Transaminaciones que lleven a distintos intermediarios del Ciclo de Krebs, o a la inversa;
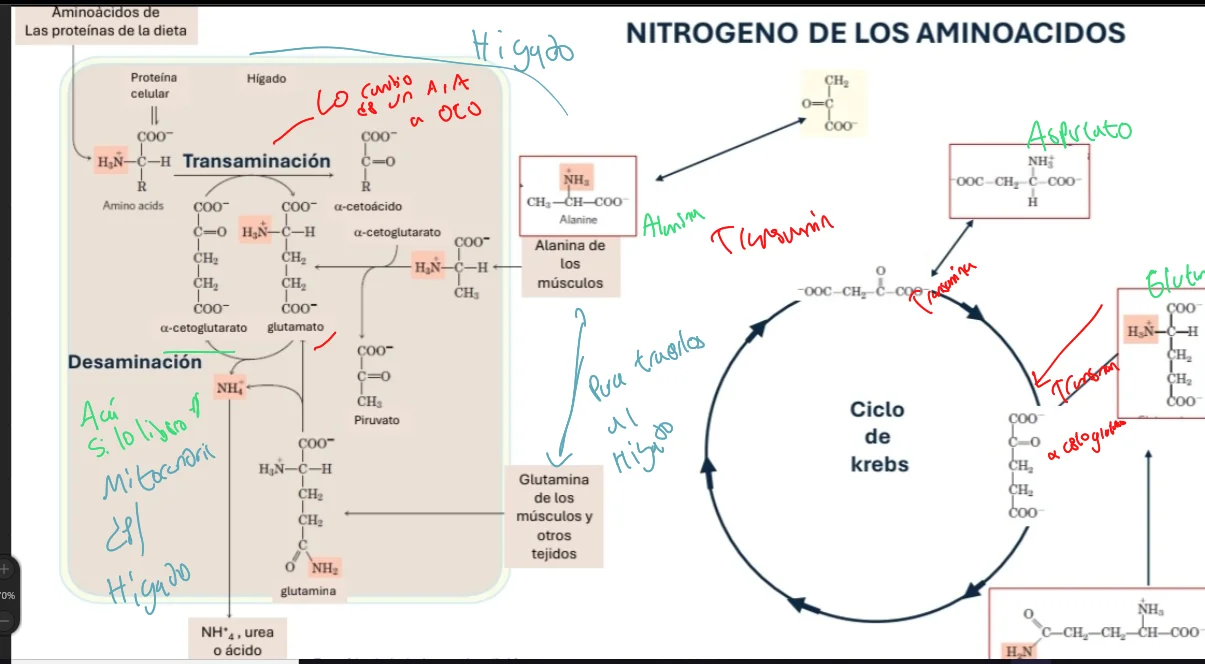
Todas las necesitan PLP de cofactor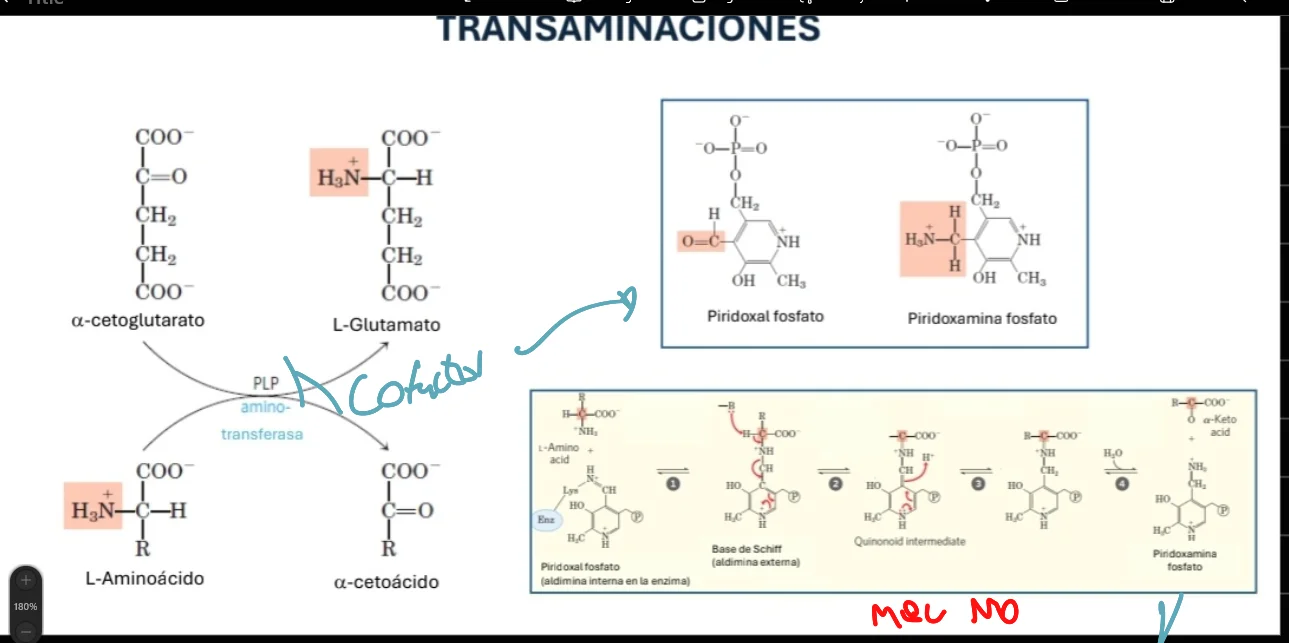
Finalmente se da la Desaminación del Glutarato, que genera Amoníaco:
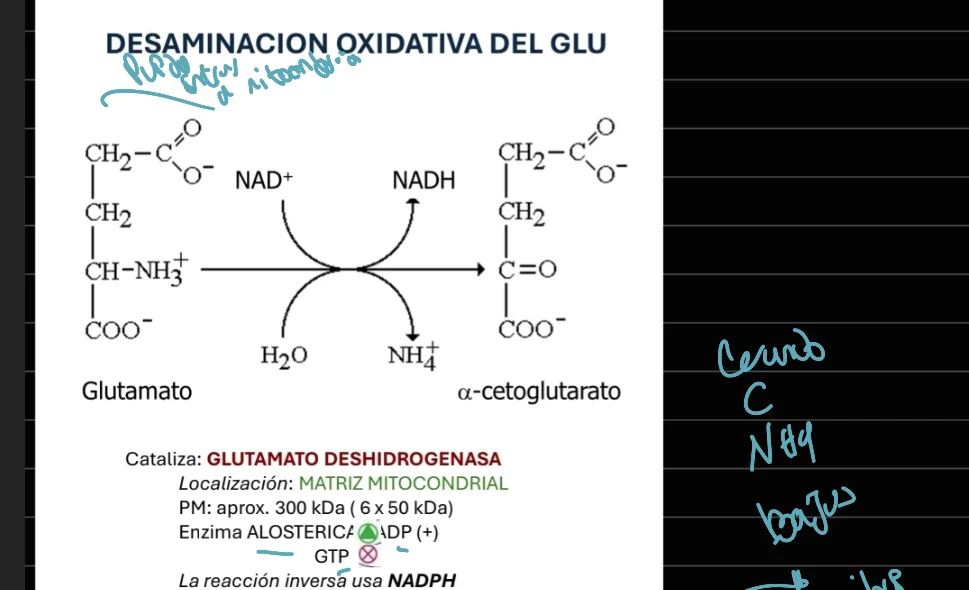
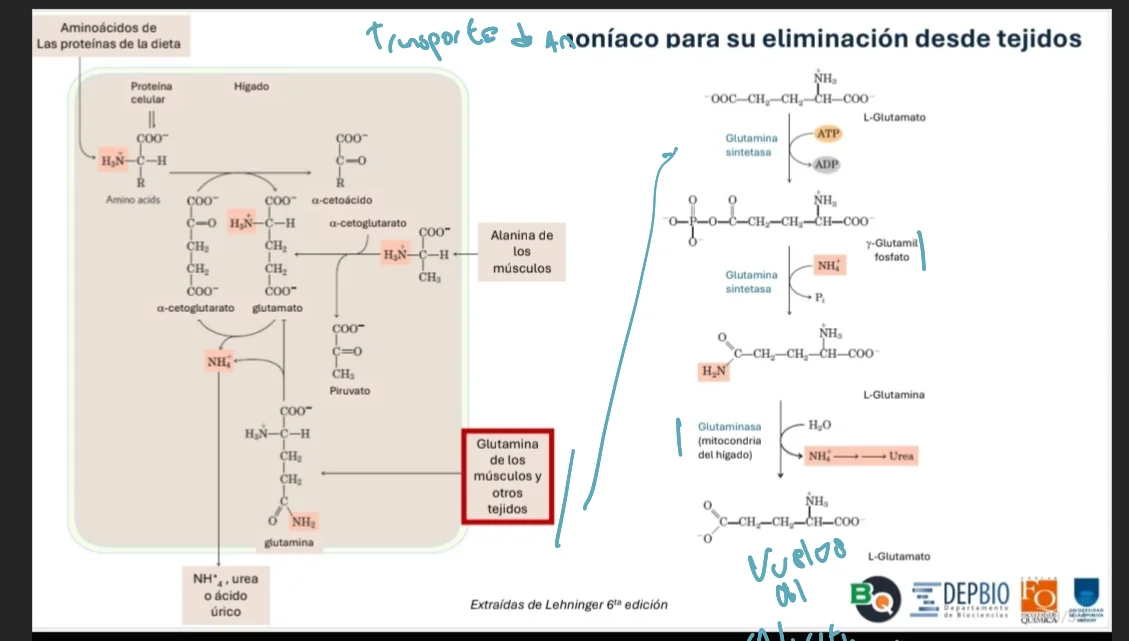
El Amoníaco es permeable a la membrana y el Amonio es tóxico para la Mitocondria porque retira un intermediario del Ciclo de Krebs:
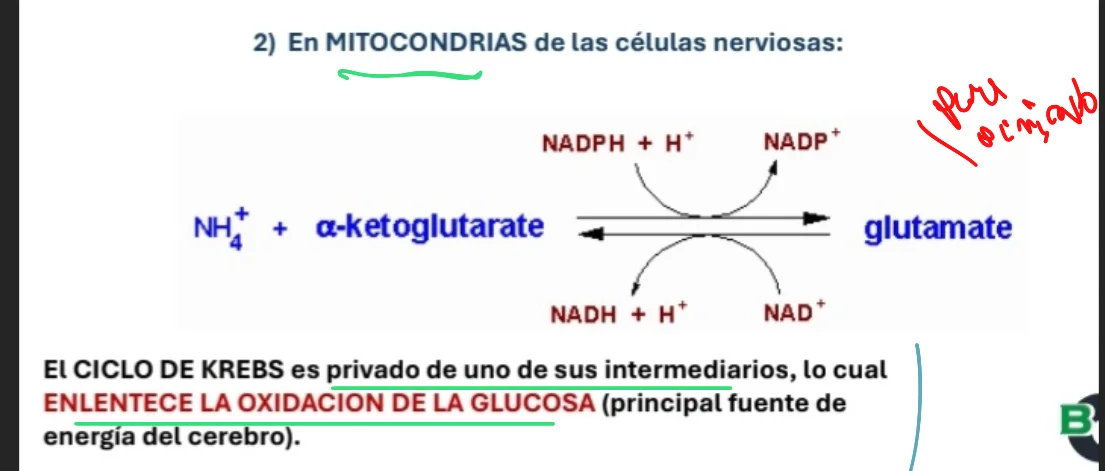
Por lo que consume atp, y genera menos. 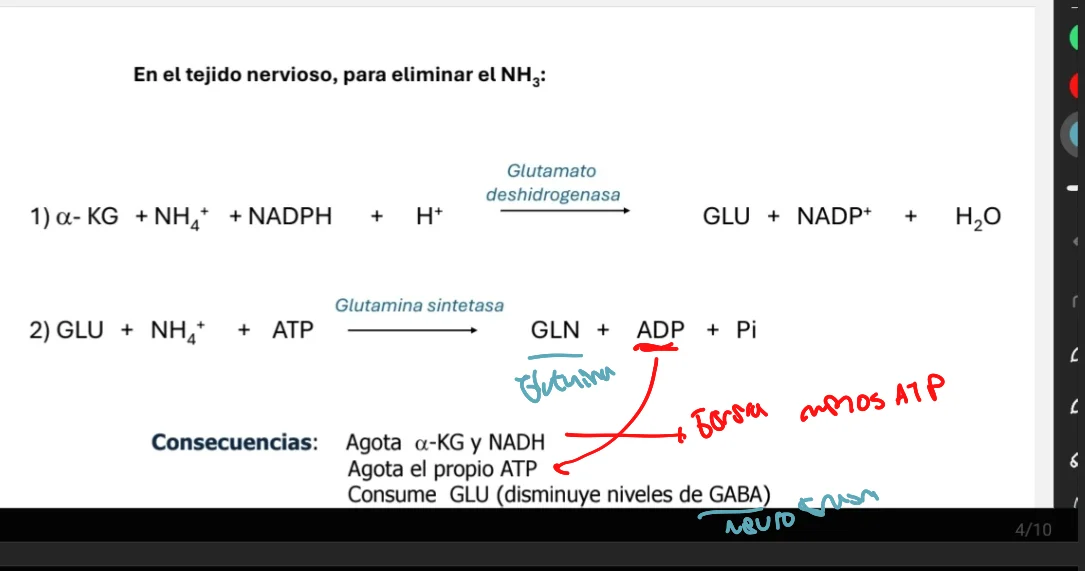
Por lo que, necesitamos eliminar el exceso, y se hace de distintas maneras:
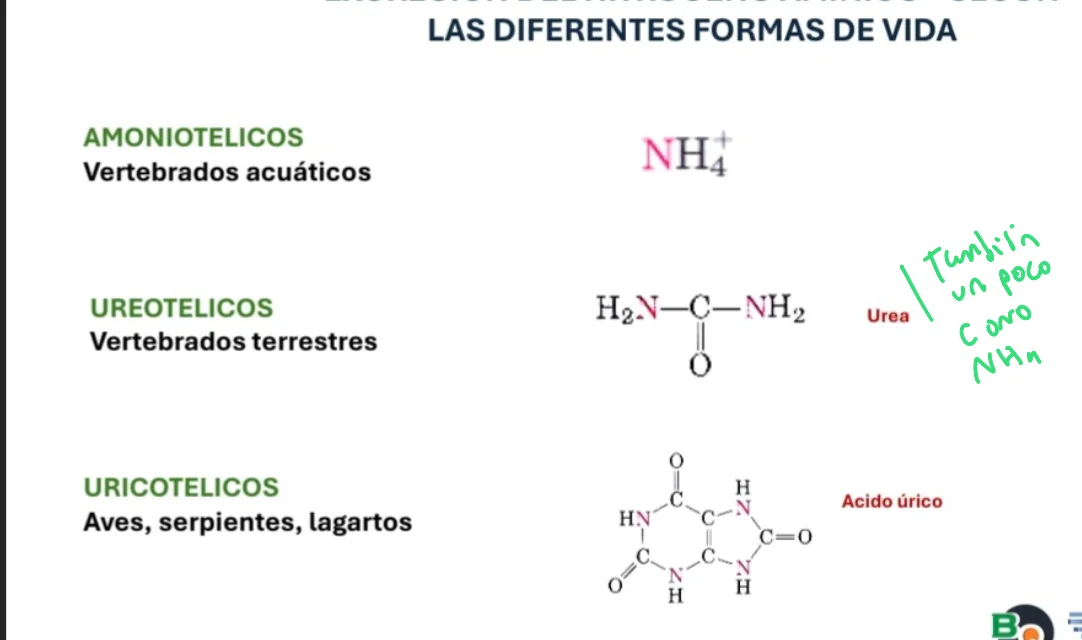
La transformación se da entre el Citosol y la Mitocondria del Hígado:
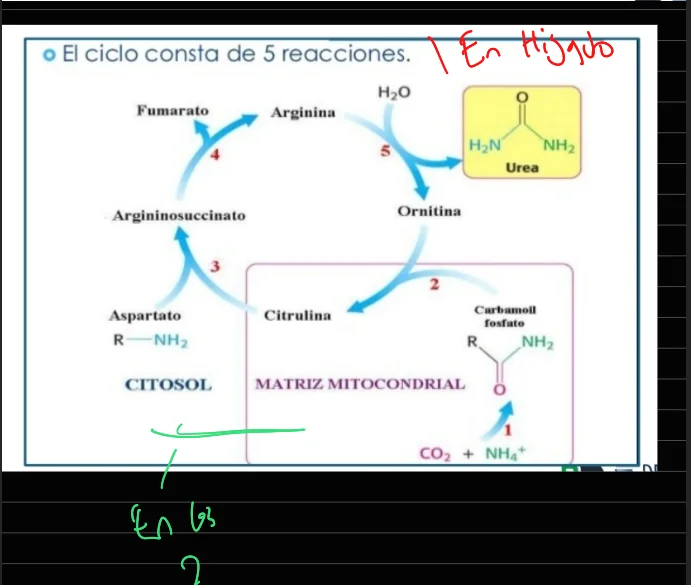
Todo llega a Glutamato y desde allí a carbamil fosfato en la Mitocondria entra en el Ciclo de la Urea;
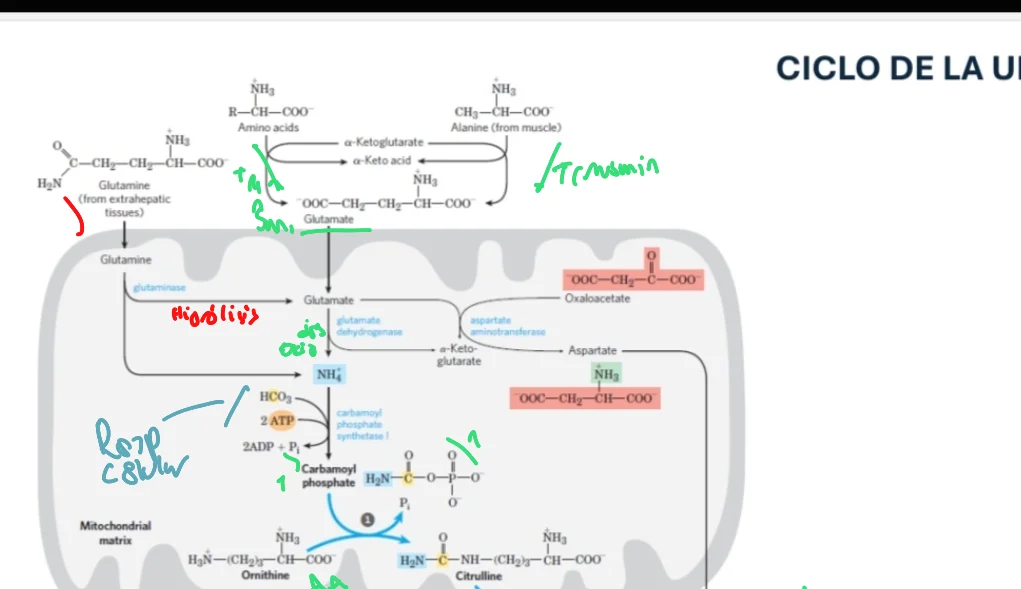
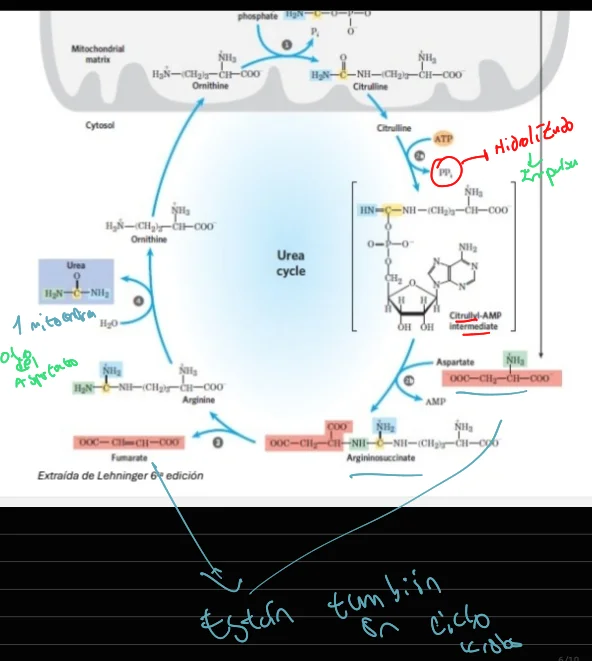
Por lo que el ciclo de la urea tiene conexiones con el de krebs, y sus lanzaderas,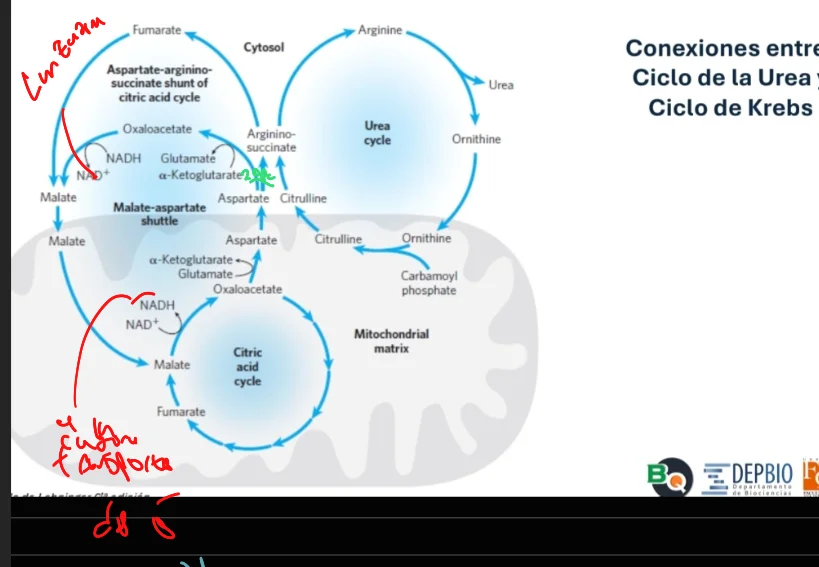
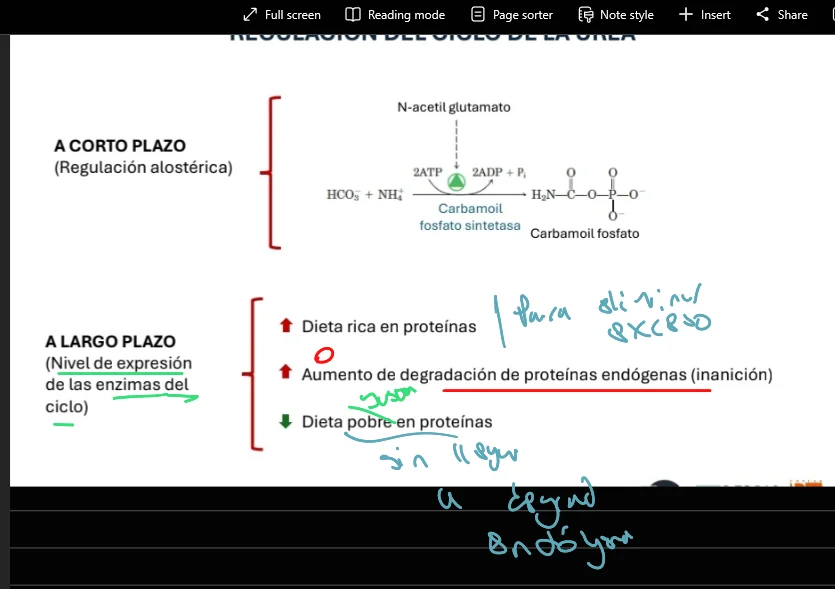
Para eliminarlo requiere energía, 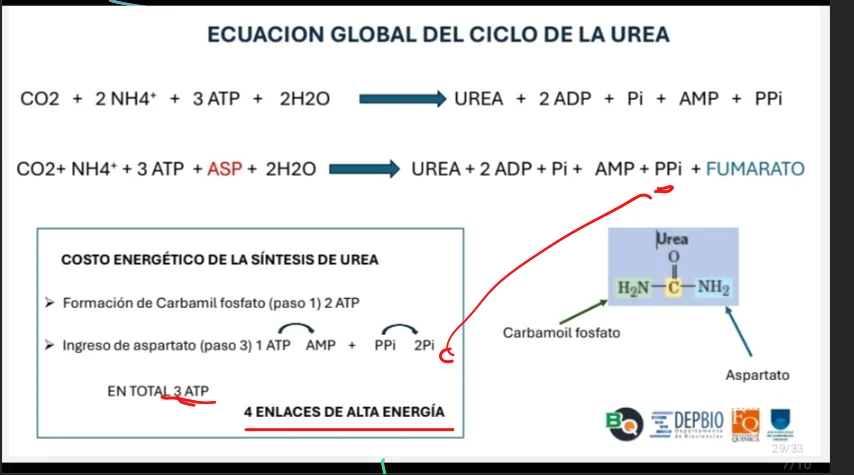
Tiene regulación a corto y largo plazo:
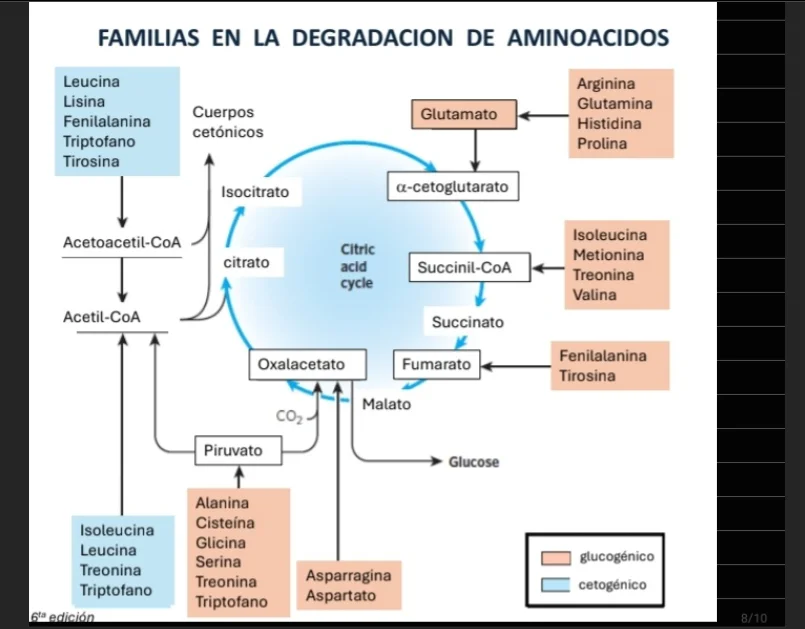
Como los aminoácidos pueden ir a distintos intermediarios de krebs se clasifican según a los que van a acetilCOA como Cetogénicos y los que van a piruvato como Glucogénicos: