ICB 1- 2
Catálisis Enzimática
Una Reacción Química puede ser favorable, pero nunca ocurrir, ya que necesitan un "Empujón" de Energía para superar la barrera de la Energía de Activación
Cuanto más alta sea la Energía de Activación más lenta será la velocidad de la Reacción Química.
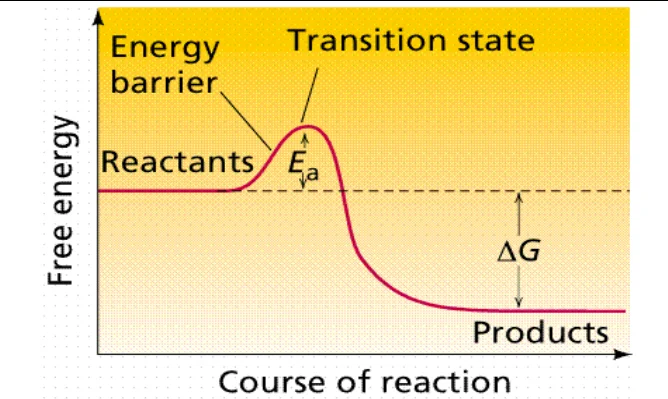
Los Organismos vivos son capaces de reducir esta Energía de Activación mediante la Catálisis Enzimática.
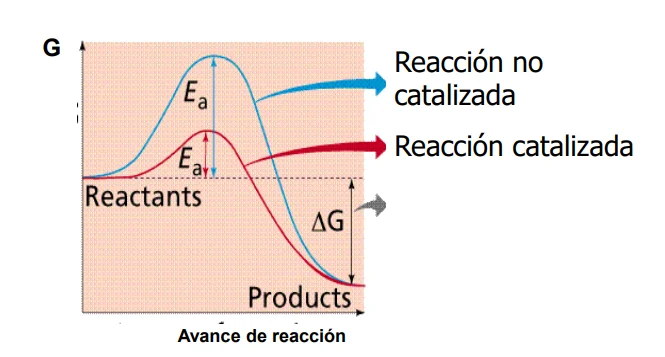
Sin afectar el Delta G, por lo tanto sin afectar las Concentraciónes en equilibrio.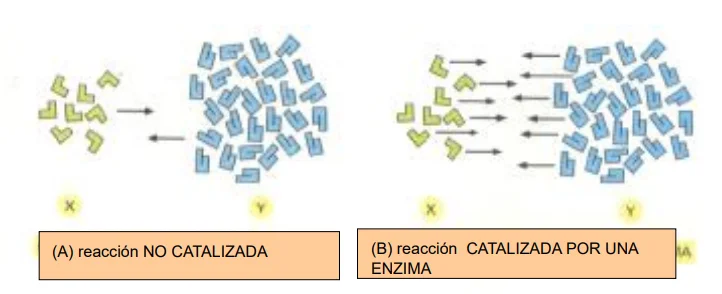
Las Enzimas son en su mayoría Proteínas, lo que les da una serie de propiedades que las diferencia de los Catalizadores químicos sencillos.
- Son Específicas (Tanto para Sustrato como para Producto)
- Gran Poder Catalítico
- Actúan en condiciones biológicas
- su actividad está usualmente regulada mediante las concentraciones.
Al igual que todos los Catalizadores no se consumen por lo que se re usan, lo que les da su elevado poder.
Aumentan entre 10^6-12 la velocidad de reacción, en promedio una Enzimas cataliza más de 1000 Sustrato por segundo.
Las moléculas pequeñas se mueven mucho más rápido que las grandes, por eso es que se encuentran con las Enzimas.
Además las Enzimas necesarias para un mismo proceso se suelen ubicar cerca en Complejos Multienzimáticos tanto dentro de la Célula como en las Capas Lipídicas.
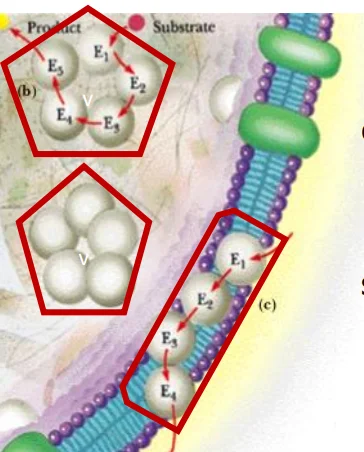
No todas las reacciones requieren Catálisis Enzimática. pero las que si lo hacen se denominan bajo Control Cinético.
Especificidad
La Enzimas actúa como molde para los Sustrato, en su Sitio Activo es donde los Sustrato son transformados en Producto.
Entonces, según la conformación de la Enzimas
en su sitio activo es el sustrato.
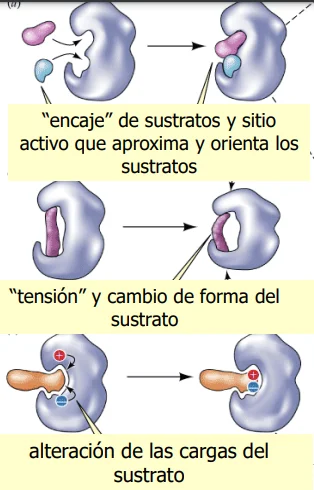
En el Sitio Activo las enzimas orientan su(s) [20 Atlas/Química/Sustrato|Sustrato] y debilita sus enlaces para poder generar los de el Producto. Por ello es que se reduce la Energía de Activación.
Las diferentes formas que tiene de hacerlo son:
- Encaje.
- Tensión.
- Alteración de Cargas.
Cofactores
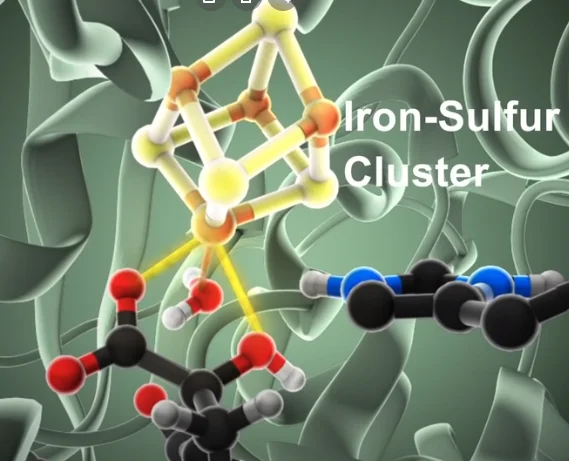
En el Sitio Activo no solo afectan las Cadenas Laterales de la Proteínas, también se suelen asociar con Cofactores, que son diferentes Moléculas asociadas a la Enzimas que no son Péptidos.
Pueden ser:
Cofactores pueden ayudar a aumentar la reactividad o regularla.
Las Proteínas unidas a Cofactor las llamamos: Holo proteínas.
Las que no, las llamamos Apoproteínas
Un ejemplo de Cofactor:
Sensibilidad ambiental.
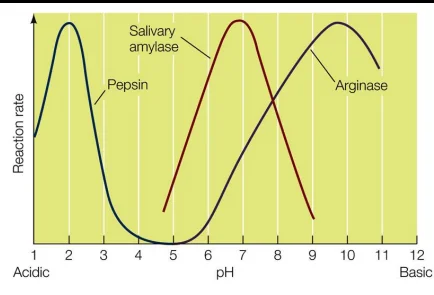
Las Enzimas son sensibles al ambiente que las rodean, y su efectividad depende de las condiciones en las que se encuentran. Por ejemplo, cada Enzimas tiene su pH óptimo.
Regulación
Alostérica
Además de por las condiciones ambientales, las Enzimas se regulan porque tienen un sitio de unión para reguladores, llamado Sitio Alostérico. Por ejemplo un regulador inhibidor puede hacerla cambiar de conformación y cerrar su Sitio Activo.
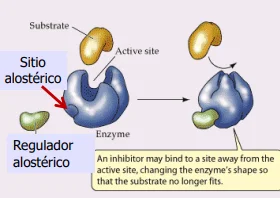
También hay reguladores que favorecen o activan a las Enzimas.
Gracias a la Regulación Alostérica es que se regula el Metabolismo.
Competencia
Otro tipo de regulación que sufren las enzimas es la inhibición por competencia, que se da cuando un sustrato muy similar, se une al sitio activo, impidiendo que la enzima actúe con normalidad.
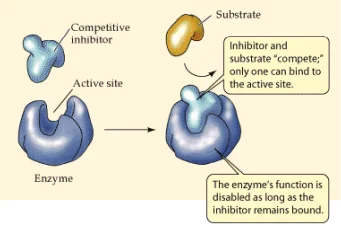
Si el competidor es el Producto de la enzima, se llama Retroalimentación negativa.
Fosforilación
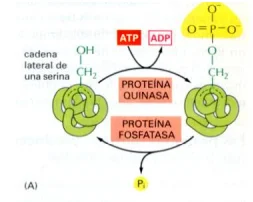
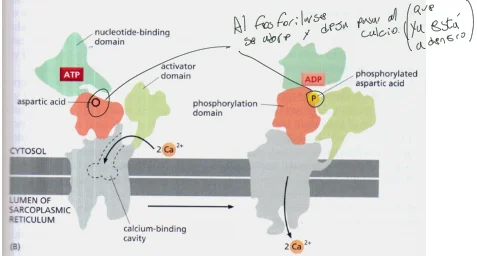
Otro método de regulación es la Fosforilación de Enzimas mediante Hidrólisis de ATP.
Las que se encargan de fosforolirar y des fosforilar son Quinasas y Fosfatasas.
Membrana plasmática
La Membrana Plasmática actúa como una barrera que controla el tráfico de moléculas hacia y desde la Célula.
Están basadas en Bicapas lipídicas, permeables a Moléculas Hidrofóbicas, e impermeable a Hidrofílicas.
Aunque en las Bicapas lipídicas también se encuentran Proteínas de transporte que se encargan de permitir el pasaje selectivo de Moléculas Hidrofílicas pequeñas.
El pasaje sin proteínas es regulado por las Concentraciónes. Ya que se mueven a favor de su gradiente de concentración (Transporte Pasivo.)
En contra se denomina Transporte Activo y requiere de un gasto de Energía u algún Acople a un transporte favorable.
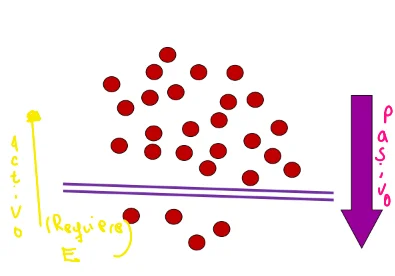
Aunque puede ser impedido por impedimentos cinéticos, por ejemplo la membrana que impide pasar a los hidrofílicos.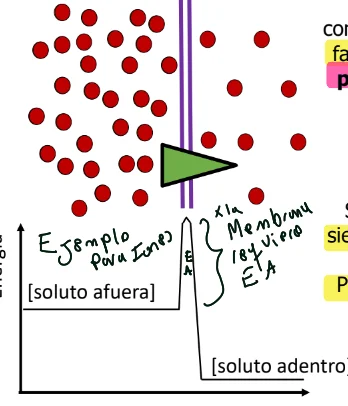
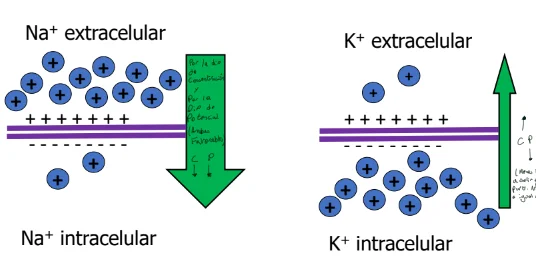
Los Iones, además del gradiente de concentraciones se ven afectado también por el potencial de la membrana, que suele ser Negativo en el interior y positivo al exterior.
Por lo tanto ellos tienen un Gradiente Electroquímico que es la suma (o Resta) de el gradiente químico con el eléctrico.
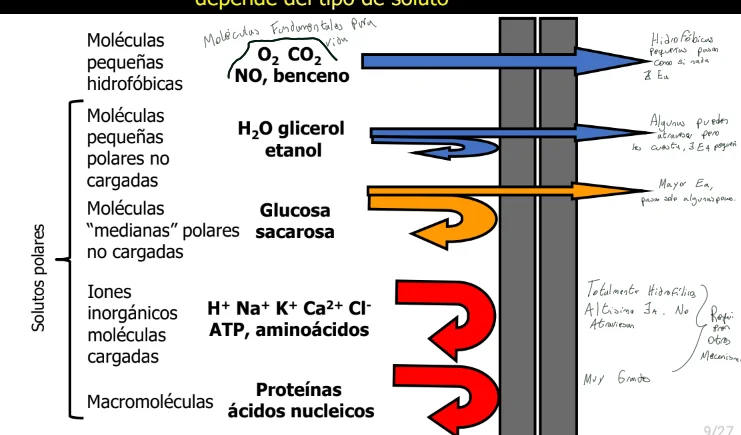
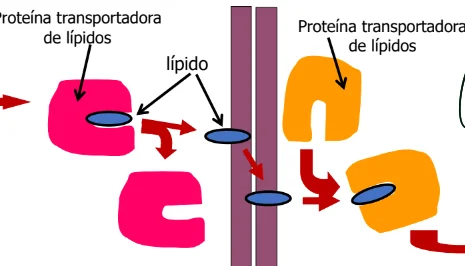
Los Lípidos pueden atravesar sin problema la membrana, pero necesitan una proteína transportadora que los acerque hacia ella, y otra que se los lleve de ella.
Transportadores.
Las Proteínas Transmembrana transportadoras disminuyen la barrera energética de el pasaje de polares. Esto se denomina Difusión Facilitada.
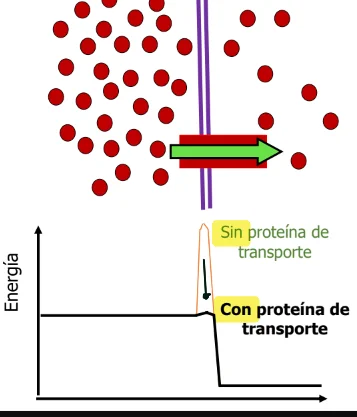
Hay dos tipos de Proteínas transportadoras:
- Canal (Discriminan por tamaño y carga)(Solo a favor del gradiente)(No cambian de conformación Durante el transporte, pero si antes o después, abierto o cerrado)
- Carriers o transportadores: Los solutos encajan en sitios de unión y se transfieren mediante cambio de conformación, puede ser a favor o en contra del gradiente (Con energía si es en contra.)
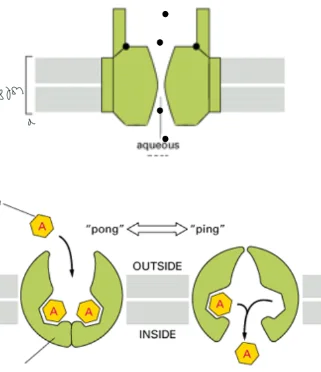
Canal
Las Proteínas Canal pueden ser varias Hélices alfa o un barril de hojas beta, hidrofílico.
Su transporte es rápido y solo a favor del gradiente electroquímico.
Pueden estar abiertos o cerrados.
Transportadores
Las Proteínas Carriers se unen específicamente a los solutos que transforman, y realizan su transporte con un cambio de conformación. Suelen estar formados por hélices alfa.
Pueden llevar tanto a favor del gradiente con un transporte pasivo, o en contra con un transporte activo que requiere energía:
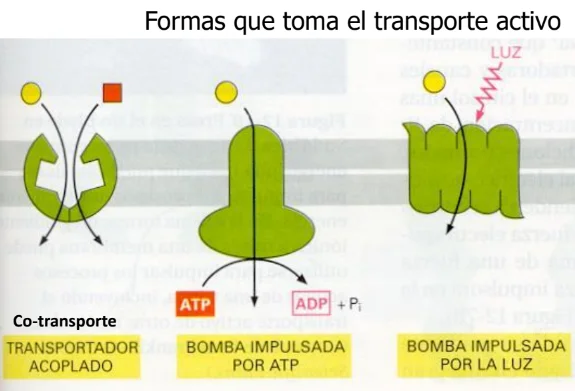
Co-transporte
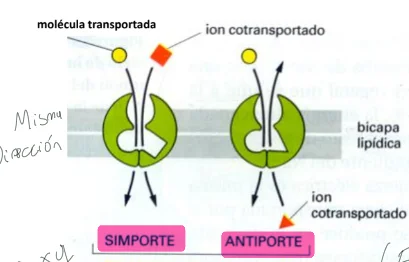
El Co-Transporte es el acople de una molécula en contra del gradiente, con una a favor que impulsa el movimiento.
Si van en la misma dirección se llama Simporte y si van en direcciones opuestas se denomina Anti porte
Hidrólisis de Atp
El Transporte Activo por Hidrólisis de ATP es el transporte en el cual la Proteínas Carriers obtienen su Energía para cambiar de conformación de la Hidrólisis.
Vías Metabólicas
Los Organismos fotosintéticos Pueden producirse su propias moléculas orgánicas gracias a la energía solar, y transforman agua en oxígeno, nosotros en cambio descomponemos las Moléculas Orgánicas en Dióxido de carbono y transformamos el oxígeno en agua, para obtener energía. Este proceso se llama Respiración. 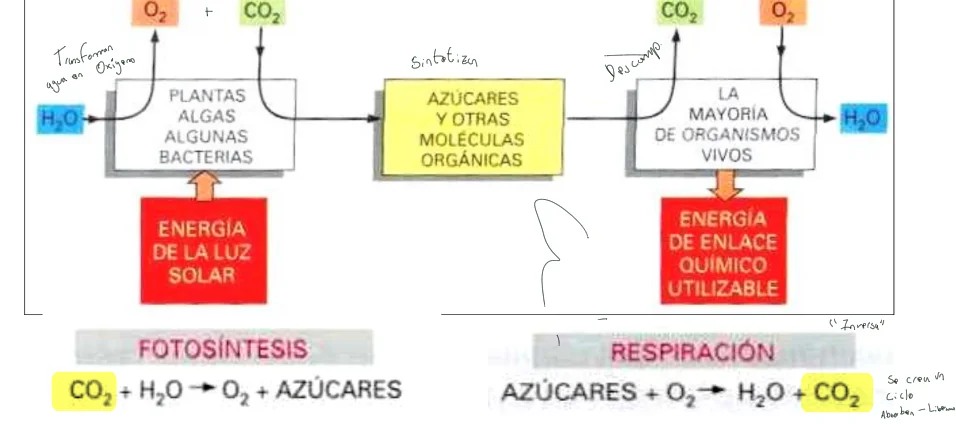
Respiración
La Respiración es la forma en la cual obtenemos energía y material para crear nuestras Macromoléculas
A grandes Rasgos está compuesta por dos Vías Metabólicas.
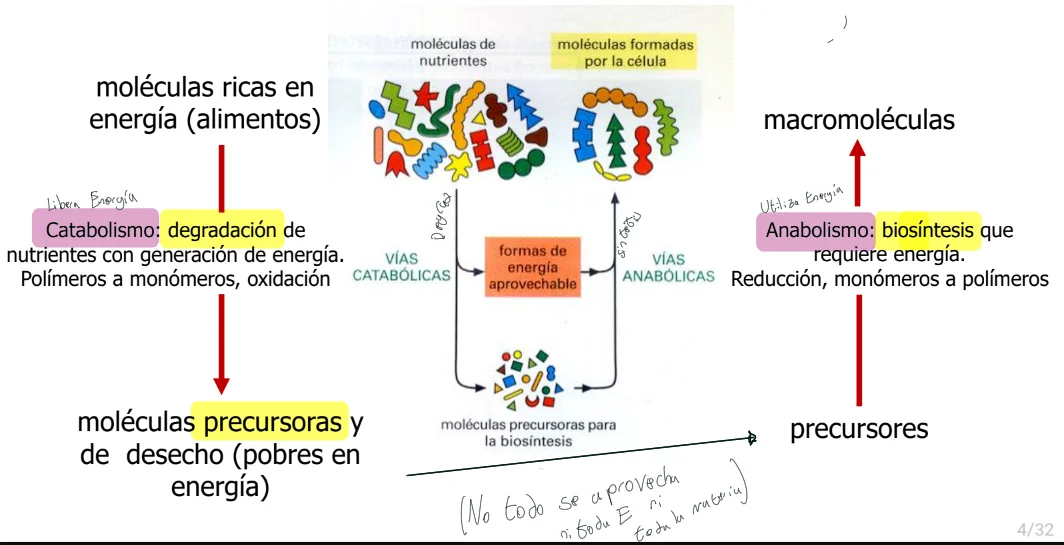
Estas dos vías están acopladas, en el catabolismo almacenamos la Energía en ATP t NAD-H, que es justamente lo que utilizamos para obener la energía necesaria en el Anabolismo.
Oxidación de la Glucosa
La oxidación de la glucosa es una de nuestras principales vías de Catabolismo.
Pero no la podemos oxidar en una sola etapa porque tendría una Energía de Activación muy alta y desperdiciaríamos mucha de la Energía liberada.
Por ello lo hacemos de forma controlada en varias etapas secuenciales catalizado por diferentes enzimas.
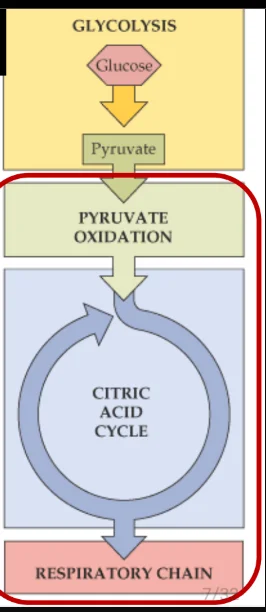
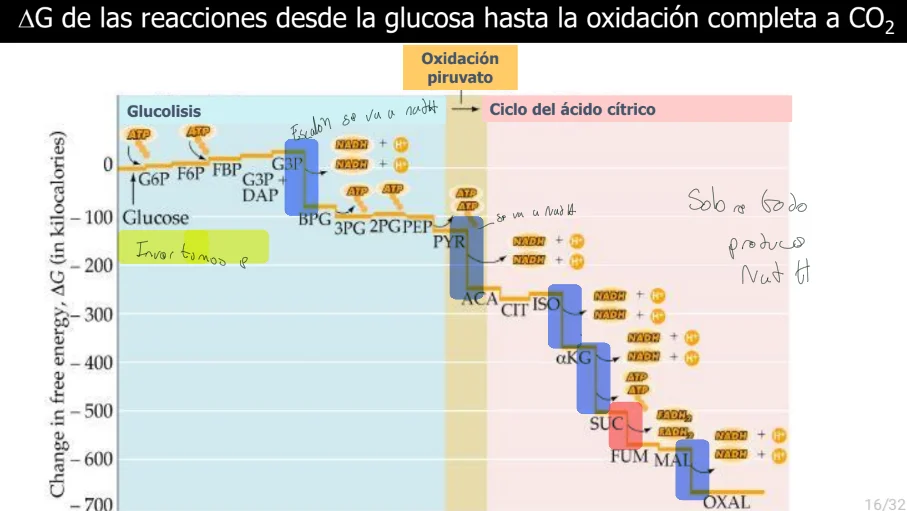
Por cada glucosa obtenemos 4 ATP, 10 NADH y 1 FADH.
Glucolisis
La Glucolisis es la primera etapa de este proceso, y consta de la Oxidación parcial de glucosa a piruvato. Para realizarla hay que invertir 2 de ATP pero luego será recuperada de sobra en la propia Glucólisis y más adelante en la Respiración.
Una glucosa produce dos Piruvatos
La Glucolisis ocurre en el Citosol.
Al Oxidar la glucosa reducimos el NAD, que siempre que pasa a NADH se Reduce.
Oxidación del Piruvato
El Piruvato recién sintetizado ingresa a la matriz de la Mitocondria. Allí es oxidado por un gran complejo enzimático con tres subunidades. Resultando en acetilCOA
Producen también un NAD-H
Ciclo del ácido cítrico
El acetilCOA recién sintetizado, se mantiene en la mitocondria e ingresa al Ciclo del ácido cítrico, también llamado ciclo de Krebs . Donde Ocurre un ciclo de reacciones catalizado por diferentes Enzimas.
Algunos de esos pasos "Eliminan carbonos" a CO2 y reducen NAD a NAD-H
Produce un GTP, 3NADH y FADH2, sobre todo es fuente de poder reductor por el nadh y el fadh2, que se usan en el transporte de electrones, para reducir oxígeno a agua y generar ATP
Oxidación de NADH
El NAD-H generado en las reacciones de oxidación de la glucosa es usado en la membrana interna de la Mitocondria para Oxidarse de nuevo a NAD+ y Reducir Oxígeno a Agua, que genera energía para sintetizar ATP
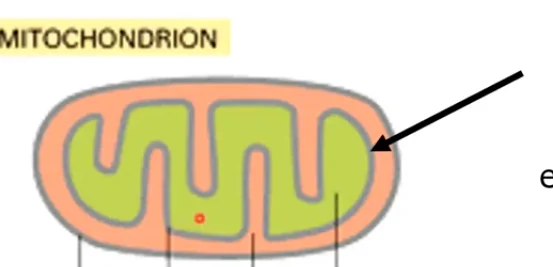
Este Proceso se llama Fosforilación Oxidativa.
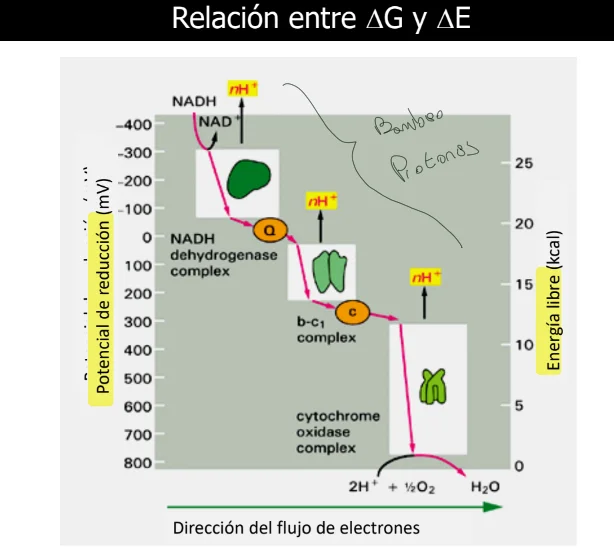
Es como un pasamanos de Electrones. Que ocurre catalizado por varios complejos enzimáticos transmembrana.
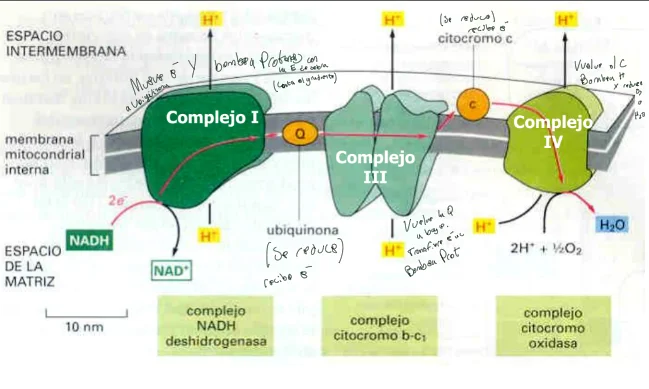
Los "pases" de electrones son favorables, y esa energía es la que se usa para el pasaje de Protones desde la Matriz Mitocondrial hasta su espacio intermembrana.
En neto solo el NADH se oxida y el oxígeno se reduce la ubiquinona y el citocromo c van y vuelven, en términos netos no les pasa nada.
Todos los pases son favorables porque se los pasan a moléculas con un mayor Potencial de Reducción. (Que es la tendencia a ganar Electrones).
El Oxígeno podría oxidar a cualquiera de los de la izquierda porque es el que posee el mayor potencial de reducción. y las diferencias entre Potencial de Reducción son proporcionales al Delta G.
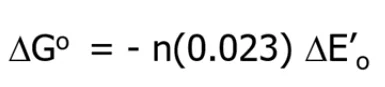
Dif De pot positivas, delta g negativo
ADN
El Genoma es el conjunto de Genes de un organismo, y se perpetúa de Célula a Célula.
Los Genes son los elementos que determinan las características (Fenotipo) de los Organismos.
Aunque no está solo determinado por la expresión de los Genes. También influyen los factores ambientales.
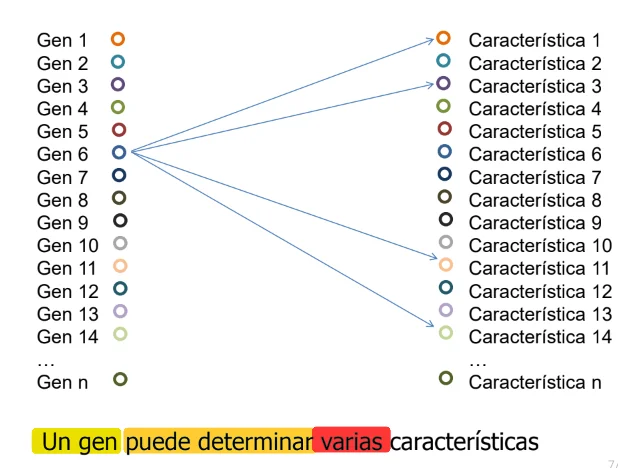
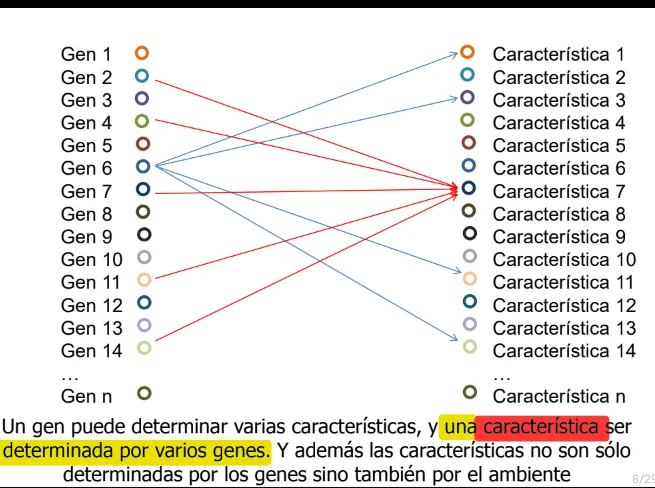
Un solo Genes puede determinar varias características.
Y una característica puede verse afectada por varios Genes.
Los Genes están hechos de ADN. El genoma humano tiene 10^10 nucleótidos.
Como las dos cadenas son complementarias podemos representar solamente la secuencia de bases de una, (Desde el extremo 5' al 3')
Los Genes se ubican en orden el ADN, con espacio sin información entre ellos. La ubicación de un gen se denomina Locus.
Un Genes habitualmente tiene la información para la síntesis de una proteína.
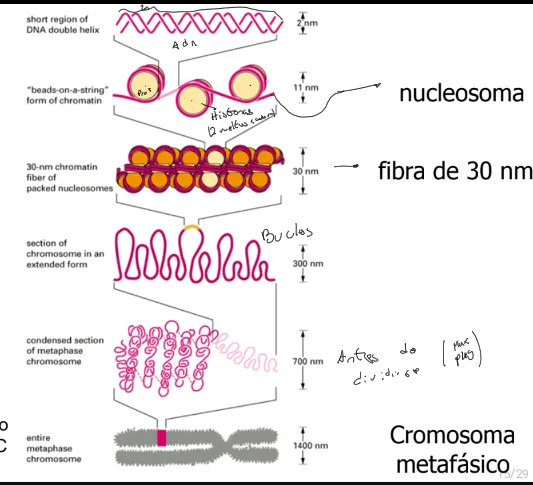
El ADN se empaca alrededor de unas Proteínas llamadas Histonas, formando una estructura llamada Nucleosoma. Esos Nucleosoma.s se Empacan en fibras de 30 nm que se enrollan en bucles. Al momento de la división celular estos cromosomas alcanzan su máximo plegamiento en forma de "X"
Los Humanos tenemos nuestros genes en 23 Cromosomas, con dos copias de cada cromosoma, de la madre y del padre.
22 de nuestros Cromosomas son de igual forma para todos, llamados Autosomas mientras que el 23 es el que define nuestro sexo. Mujeres son XX hombres XY.
Nuestro ADN se encuentra en el núcleo de la Célula.
Como tenemos los Cromosomas de a pares, somos Diploides. Esto nos hace poder tener variantes diferentes del mismo Genes. Estas variantes se llaman Alelos.
Duplicación del ADN
Antes de cada división la Célula debe duplicar su ADN, para pasar su información genética a las "Hijas". La Enzimas que cataliza su síntesis es la ADN Polimerasa, que añade Nucleótidos al extremo 3'
Las Célula de un Organismos comparten el mismo ADN, pero se especializan expresando diferentes partes de el.
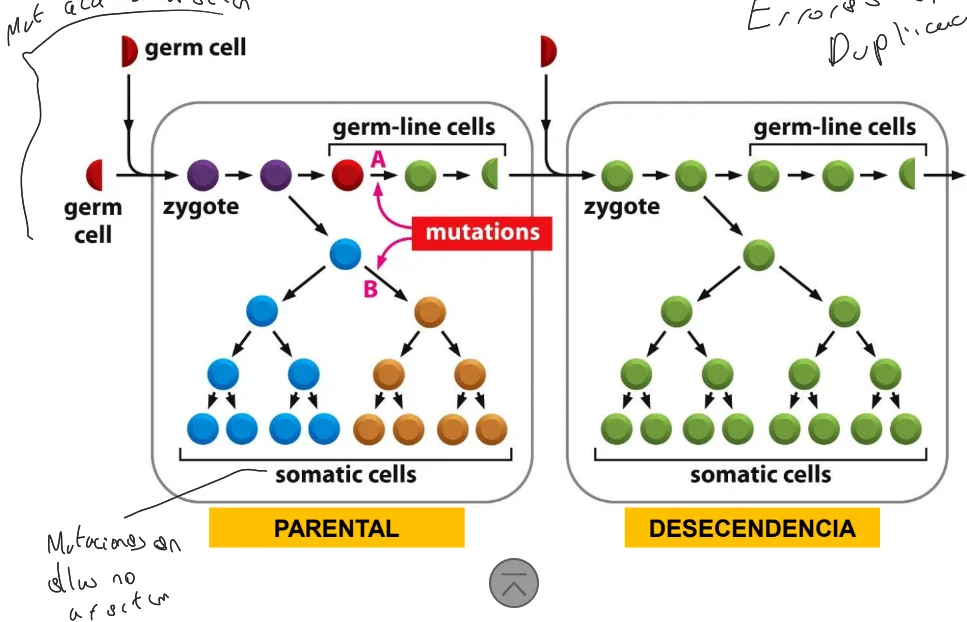
El único ADN que se transmite a la descendencia es el que ocurre en las Células Germinales, que son las que dan lugar a los Gametos. El resto de las Mutaciones solamente afectan a las Células Somáticas.
ARN
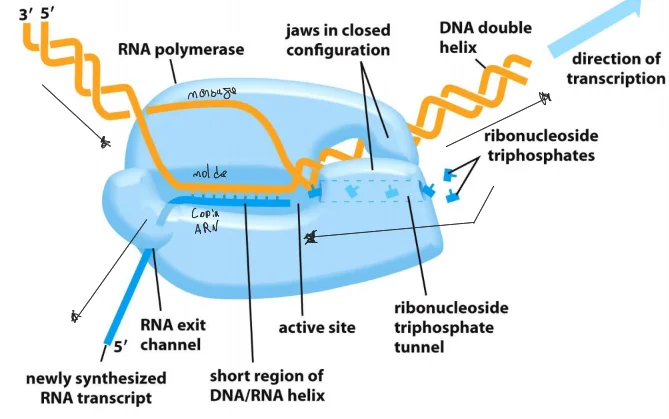
Para pasar de ADN a proteínas, primero hay que pasar la información del ADN a ARN. Este proceso se denomina Transcripción. Son estas copias de ARN lo que se utiliza como moldes para la síntesis de Proteínas en un proceso llamado Traducción.
El Extremo 5' del ARN corresponde con el extremo Amino de la Proteínas.
Solo se transcribe una hebra del ADN, usando su hebra complementaria como molde.
En el ARN también se añaden Nucleótidos en el extremo 3'.
En ADN existen señales de comienzo y finalización de la transcripción que son las que le "Indican" a la ARN Polimerasa donde comenzar y detenerse.
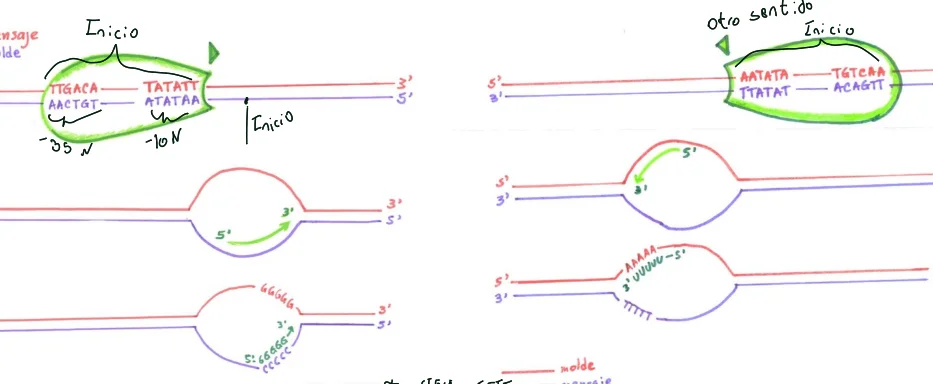
El Fin está dado por una secuencia de bases que se pliegan entre sí haciendo "Saltar a la ARN Polimerasa".
Los Organismos Procariotas pueden transcribir juntos varios genes adyacentes a partir del mismo promotor. Mientras que en los Eucariotas los genes se transcriben individualmente.
En Procariotas Hay reguladores represores, que según las necesidades que tenga la célula se acoplan al ADN, impidiendo que la ARN Polimerasa actúe.
En Eucariotas el inicio dela Transcripción es más complejo porque se requiere que estén presente varios factores factores en la ARN Polimerasa, e incluso puede verse afectado por otras secciones reguladoras que se encuentran el el mismo ADN pero alejado en la secuencia.
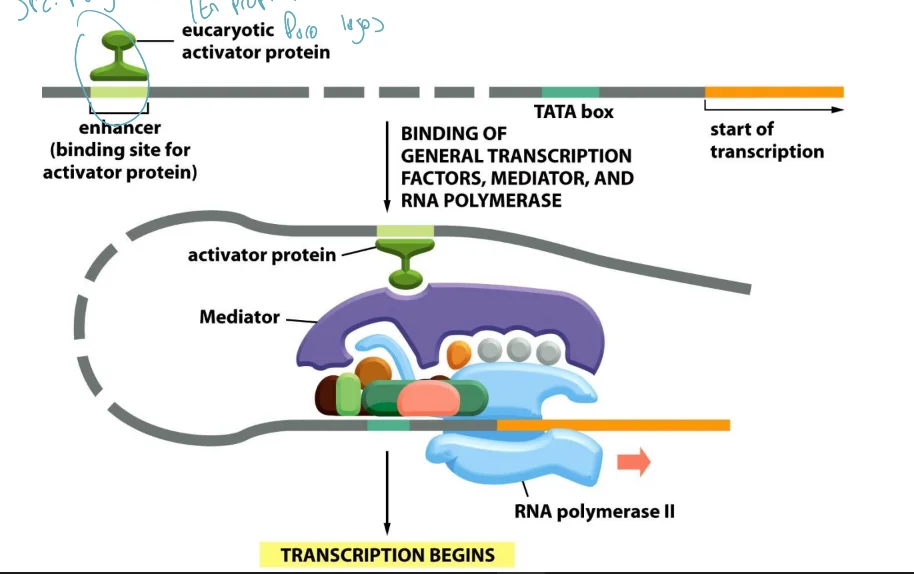
Se requieren varios "Interruptores" para encender un Genes.
Pero existe un poder combinatorio, la expresión de distintos Genes puede estar coordinado por una sola Proteínas.
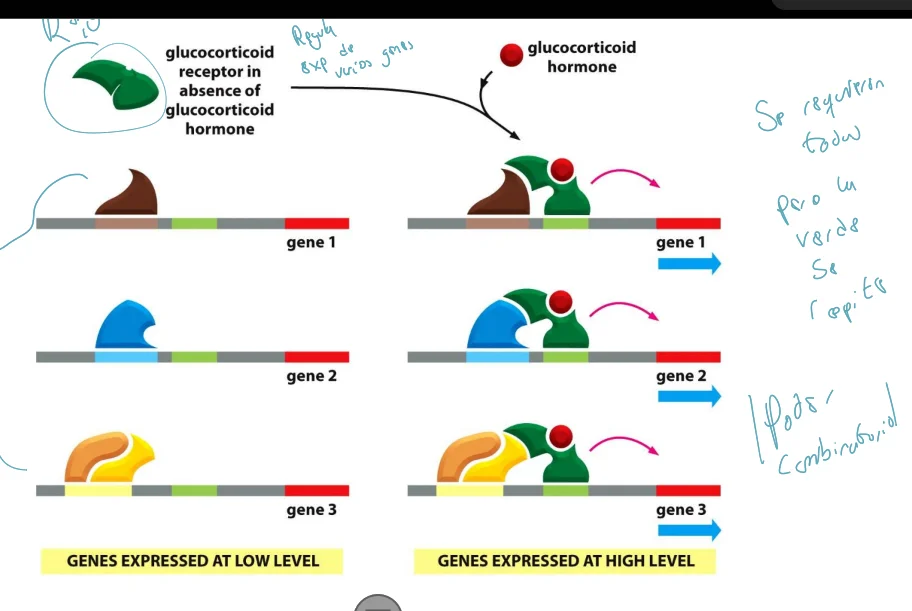
Mientras que los Procariotas reprimen lo innecesario, los Eucariotas Activamos lo necesario. Por eso tenemos reguladores positivos que aumentan la afinidad de la ARN Polimerasa por cierta región.
Otra particularidad de los Eucariotas es que tenemos la regiones codificantes "Interrumpidas" por regiones no codificantes:
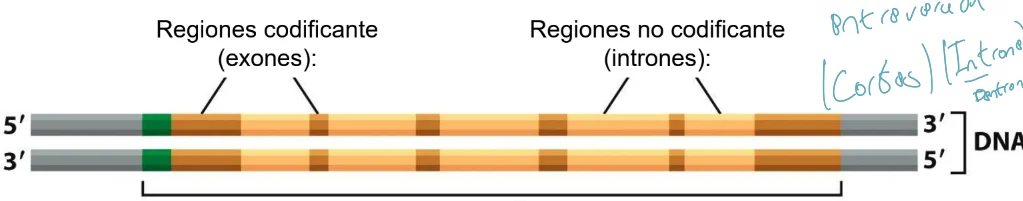
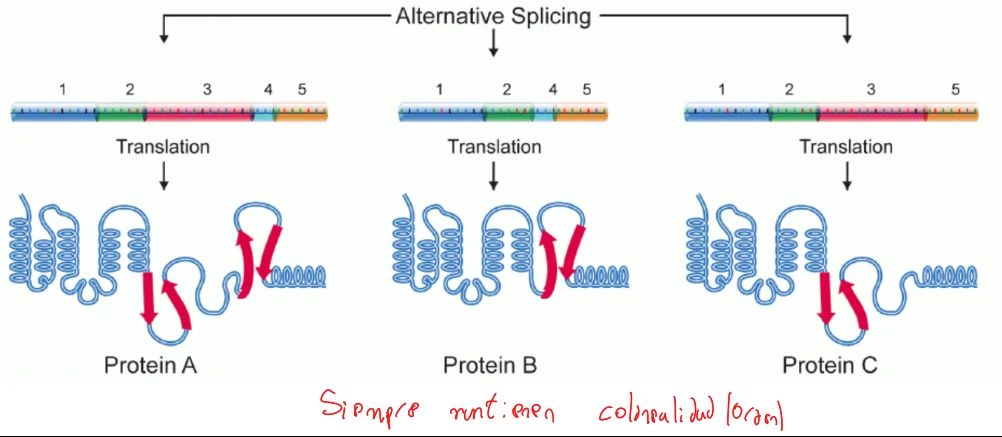
Aunque tanto Intrones como Exones son transcriptos, y juntos dan lugar al Transcripto primario, al que luego en el núcleo se le eliminan los intrones por Splicing dando lugar a un ARN maduro. Ambos procesos ocurren en el núcleo.
Aunque en el ARNm ya maduro aún quedan regiones no codificantes pertenecientes a los Exones de los extremos.
Esta distribución de intrones aporta a la variabilidad de Proteínas ya que luego del Splicing se pueden reordenar los Exones. (Aunque siempre manteniendo colinealidad)
Cuando ya están prontos los ARN para salir del núcleo se les añade una cabeza fosforilada y una cola de Poli A. Para poder ser enviados al Citosol.
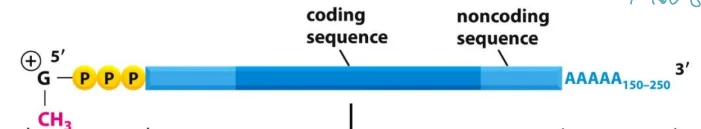
Muy poca parte del ADN Tiene realmente Información.
Traducción
Al pasaje de ARN a Proteínas lo llamamos Traducción , sigue un código de tripletes de bases, 3 bases son un aminoácido.
Además hay 3 combinaciones especiales, que son los codones de inicio y finalización de la Traducción.
La Traducción Ocurre en el Citosol, por ribosomas libres, o asociados al Retículo Endoplasmático.
Lo bueno es que hay varias combinaciones que resultan en el mismo aminoácidos por lo que pueden haber ciertos errores sin afectar el resultado final.
Gracias al Codón de inicio (Entre otras cosas) la maquinaria de traducción interpreta donde empezar la Traducción.
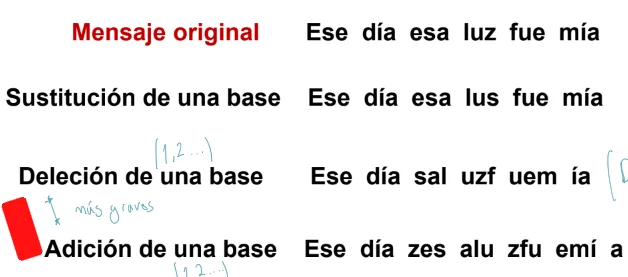
Hay 3 tipos de Mutaciones que afectan a la Traducción de Proteínas.
- Sustitución de Una Base
- Eliminación de una Base
- Adición de una Base
La deleción y adición son las más graves porque afectan todo el resto del mensaje.
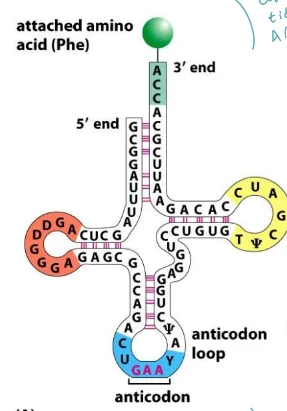
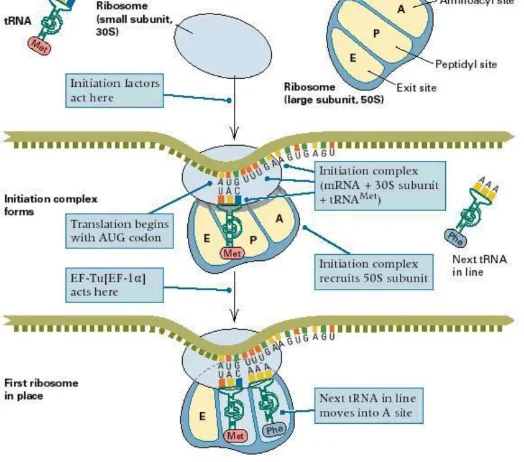
La Traducción es realizada por los Ribosomas. A partir de ARN mensajero (Usados como molde) y de Transferencia (Usados como Adaptadores).
Cada ARN de Transferencia tiene adherido su Aminoácido en un extremo, y su anticodón en el otro. (Esta unión es hecha por las Aminoacil ARNt Sintetasas)
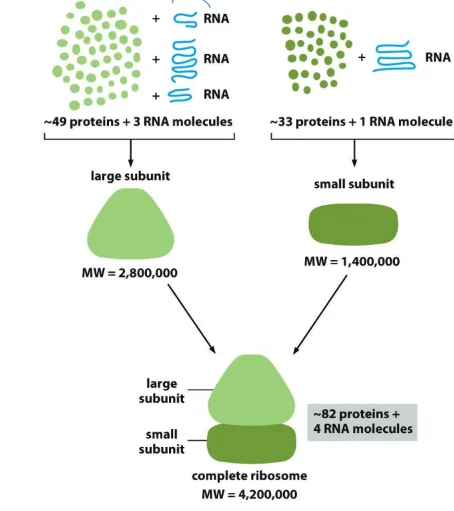
El Ribosoma está compuesto de dos subunidades de proteínas y ARN Independientes
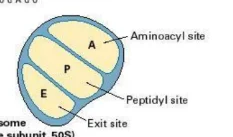
La Subunidad Grande tiene 3 Sitio Activo,
El primer paso es la Colocación de la subunidad pequeña junto con el primer ARNt. Luego se suma La subunidad Grande, y de ahí comienzan a sumarse más ARNt
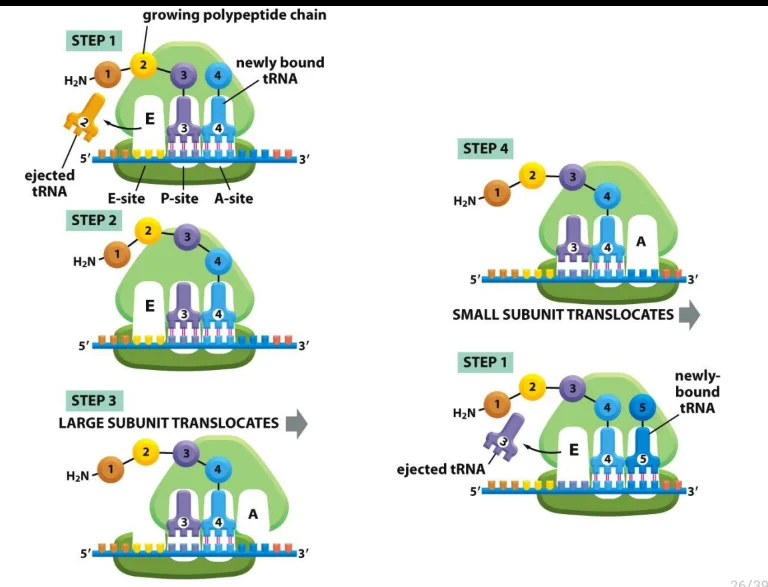
Para seguir con el proceso la subunidad grande se desplaza dejando el del P en el E y el A vacío, luego se mueve la chica, y luego se libera el del E y se añade uno nuevo al A.
Los Codones de Finalización no tienen ARNt de finalización. A ellos se une un factor de liberación que hace "saltar" al Ribosoma.
Varios Ribosomas pueden estar copiando a la vez el mismo ARN si así es necesario.
En los Procariotas de un solo ARNm pueden surgir varias proteínas, y además todo se hace en el mismo lugar.
En Eucariotas 1 ARNm es una Proteína, y la Transcripción ocurre en el Núcleo de la Célula y la Traducción en el Citosol.
Diferenciación Celular
Las Célula se diferencian por su expresión génica:
Que está regulada por los procesos tratados anteriormente:
Y también por la actividad que tengan esas proteínas creadas, y la degradación que sufren.
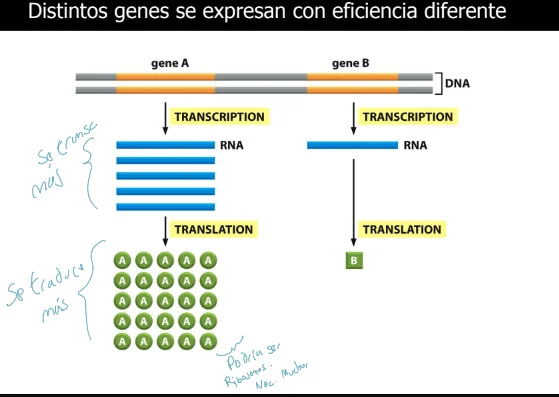
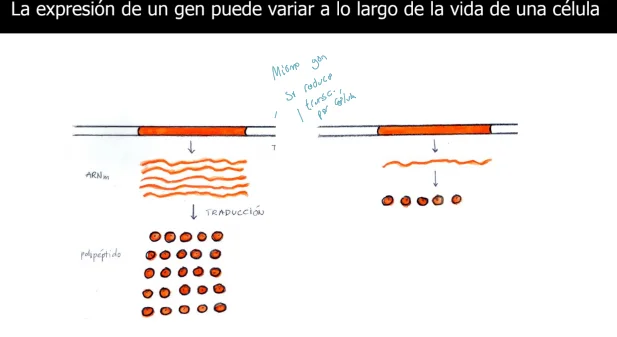
La regulación en la transcripción permite a la célula responder a los cambios en el ambiente y dejar de sintetizar ciertas proteínas.
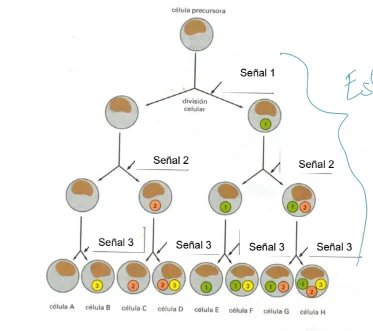
Obviamente una Célula puede cambiar la expresión de sus genes pero nunca hasta tal punto de transformarse en otra.
Además el control combinatorio en respuesta a señales externas ayuda a generar mayor variedad de células.
Estructura Celular
Las Células Eucariotas tienen muchas membranas internas, que delimitan diferentes compartimentos de la célula, con diferentes funciones, llamados Organelo.
Cada Organelo tiene su propia Membrana y Lumen. Y lo que está entre la Membrana Plasmática y las Membranas Internas se llama Citosol.
Citosol
El Citosol es el compartimento más grande de la Célula, ocupa casi la mitad de su Volumen, y en el ocurren reacciones muy importantes para las vías Metabólicas.
Por la gran acumulación de Moléculas (Proteínas, ARN y Ribosomas)en el, parece más un gel que una solución.
Núcleo
El Núcleo de la Célula de la célula es el compartimento que contiene la mayor parte del ADN de la célula (Cromatina).
Allí ocurre todo lo que involucra al ADN.
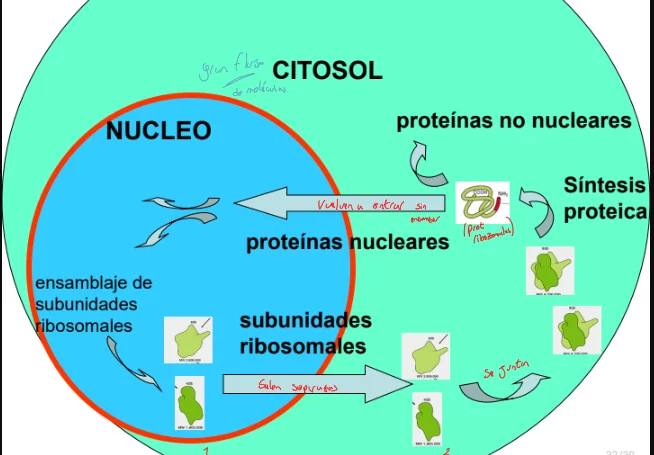
Hay una zona llamada Nucleolo que es donde se transcribe y ensamblan las subunidades del Ribosoma.
El Núcleo de la Célula está separado del Citosol por una doble Membrana pero que tiene Poros, en los cuales es casi como si hubiera una ausencia de membrana.
En los poros hay complejos de proteínas que dejan pasar a los solutos pequeños pero no a las grandes como proteínas o demás macromoléculas.
Las Proteínas que necesitan ingresar o abandonar al Núcleo de la Célula lo hacen porque tienen una Señal de Localización que hace que sean transportadas por proteínas transportadoras a través de los poros. (Sin Desplegarse.)
Señales de localización
Las proteínas que necesitan "Viajar " a un compartimento de la célula requieren tener una Señal de Localización y a veces incluso una conformación específica.
Vesículas
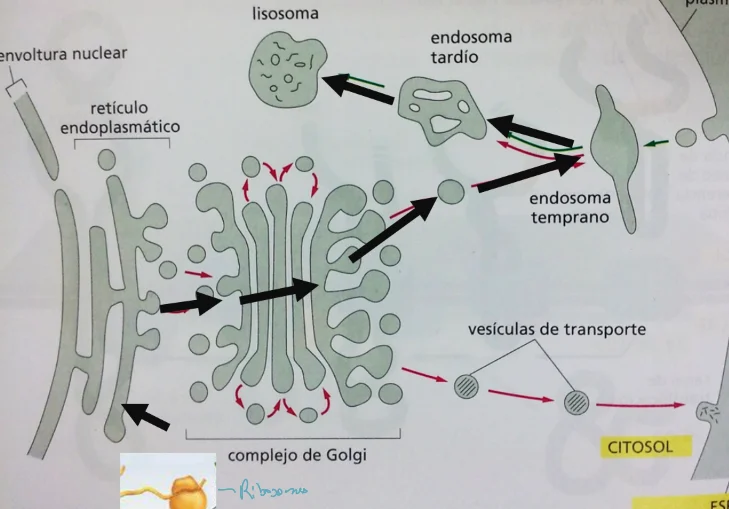
Los Organelos de la célula (Excepto Mitocondria) se Comunican mediante el transporte de Vesículas.
Al transportar vesículas se transfieren moléculas y lípidos del Lumen de un compartimiento al Lumen del otro.
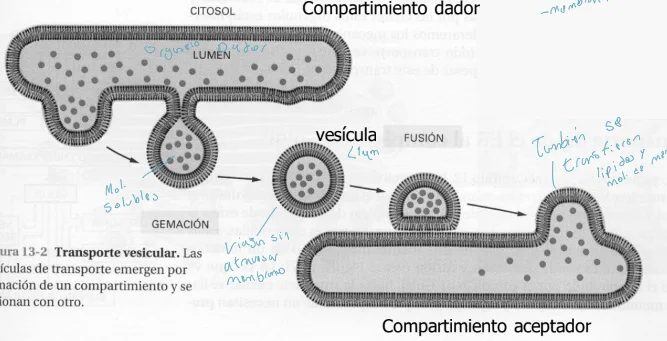
Sigue Rutas pre-establecidas. La Vía Biosintética- exocítica y la Vía Endocítica (Para afuera o para adentro.)
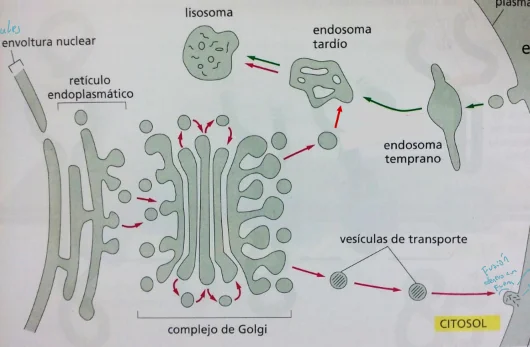
El Fin o el Inicio de estas vías, es en los fenómenos de Exocitosis y Endocitosis.
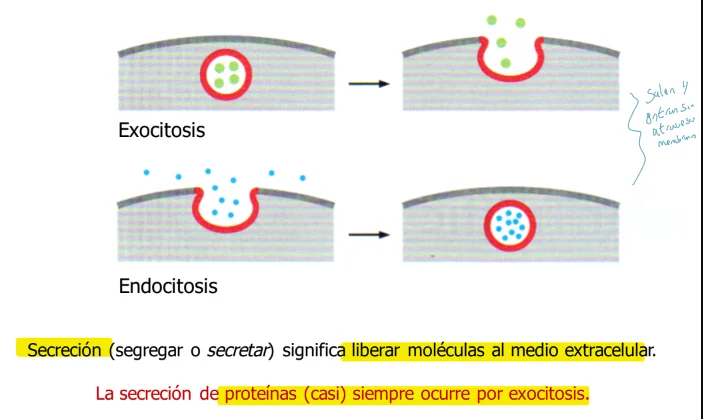
Las Proteínas destinadas a salir de la Célula deben ser sintetizadas por ribosomas asociados al Retículo Endoplasmático para luego ser modificadas en el Complejo de Golgi y luego liberadas por Exocitosis.
Retículo Endoplasmático
El Retículo Endoplasmático es como un laberinto de membranas con dos zonas delimitadas:
- Liso
- Rugoso
Liso
El Liso es muy poco abundante en la mayoría de las células, posee Enzimas encargadas de Metabolizar lípidos (Sintetizar).
Que surgen entre una de las capas de la membrana del RE Liso, y tienen parte de sus proteínas etc. Las podemos ver como un nuevo organelo. 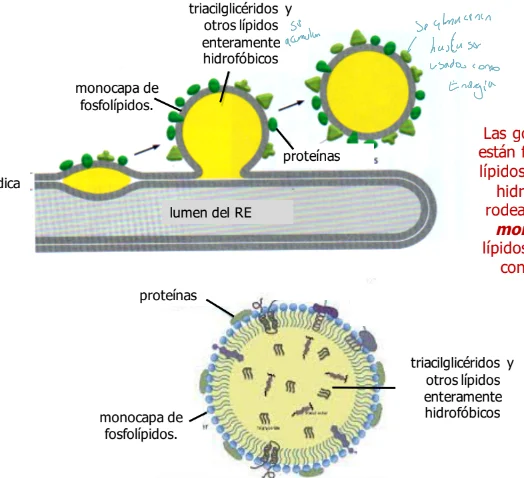
Rugoso
Mayor parte del R.E, y es mayor cuanto más es la necesidad de la célula de enviar proteínas al sistema vesicular. Tiene Ribosomas acoplados sintetizando Proteínas.
Que hacen que las proteínas con señal para el RE sean sintetizadas en la propia membrana y vayan entrando desplegadas, hasta finalmente plegarse dentro.
Aparato de Golgi
El Complejo de Golgi es el encargado de recibir moléculas del Retículo Endoplasmático y realizarle Modificaciones Post-Traduccionales en secuencia, por ejemplo la Glicolisis.
Algunas modificaciones comienzan en el Retículo Endoplasmático y en el Complejo de Golgi se terminan.
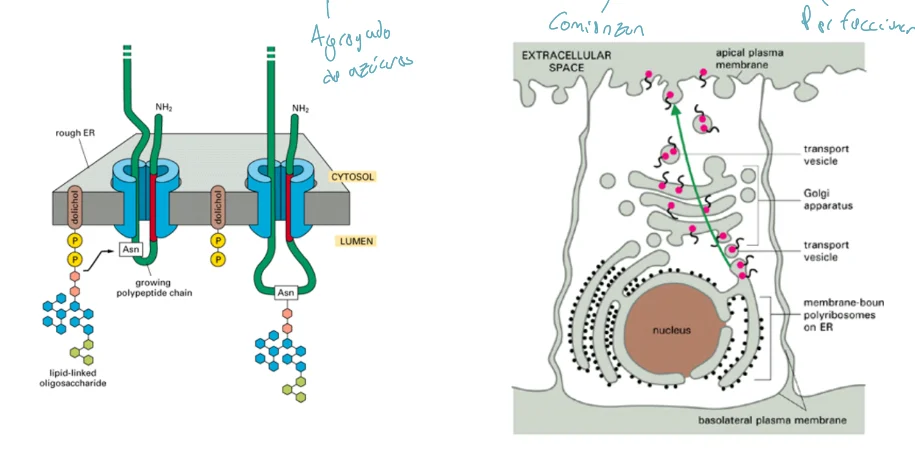
Tiene dos caras y una zona media, y cada una de esas partes tienen enzimas diferentes.
- Cara cis (Hacia el núcleo)
- Media
- Cara Trans Hacia Fuera.
Vía Endocítica
Hay tres formas de Endocitosis.
- Pinocitosis (Moléculas disueltas) (Todo el tiempo din discreción), (Van a endosomas)
- Por receptor (Moléculas específicas), (Van a Endosomas)
- Fagocitosis Se internalizan moléculas grandes incluso otras células, se crean Fagosomas.
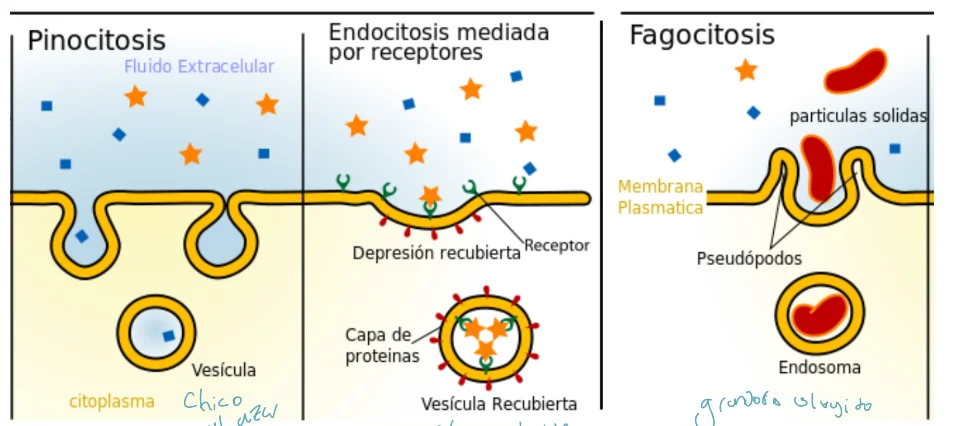
El Interior de los Endosomas va reduciendo su pH con el tiempo y se transforma en un Lisosoma. Y los Fagosomas en Fago lisosomas.
Estos dos, son los componentes degradativos de la célula. A ellos llegan diversas Enzimas Hidrolíticas que digieren lo que haya, y el resultado es luego transportado mediante transportadores transmembrana.
Las Proteínas destinadas a los lisosomas deben pasar por el Complejo de Golgi.
Mitocondrias
Las Mitocondrias no participan en el sistema vesicular, tienen su propio ADN de forma circular (Típico de Bacterias) y además tienen dos Membrana.
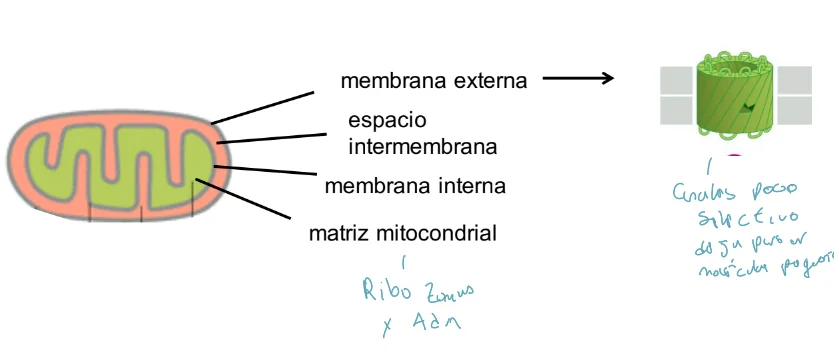
La membrana externa deja pasar solutos pequeños indiscriminadamente.
Se cree que tienen origen fagocítico. La mayoría de las proteínas mitocondriales son importadas desde el Citosol, por lo que tienen una señal de importación, son transportadas y desplegadas para pasar transmembrana:
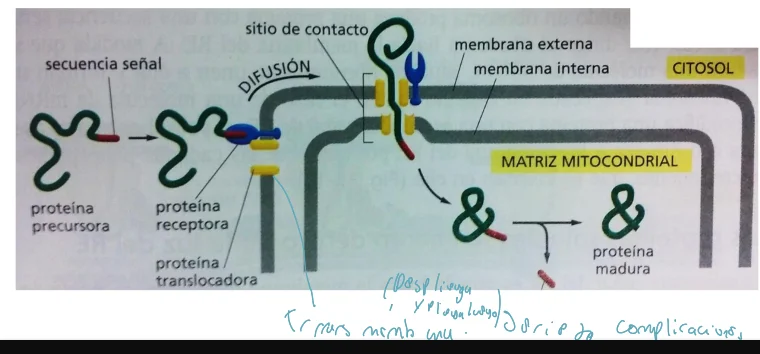
Sin embargo algunas proteínas son sintetizadas por la propia Mitocondria, esas no necesitan señal de importación.
Citoesqueleto
El Citoesqueleto es una característica que solo las células Eucariotas tienen, y se encarga de Organizar el transporte vesicular y los cambios de forma de la célula.
Está formado por tres tipos de Estructuras proteicas que pueden alargarse o acortarse mediante la adición de más subunidades.
Las subunidades son solubles, mientras que los filamentos no por su gran tamaño.
Los tres tipos de filamentos son:
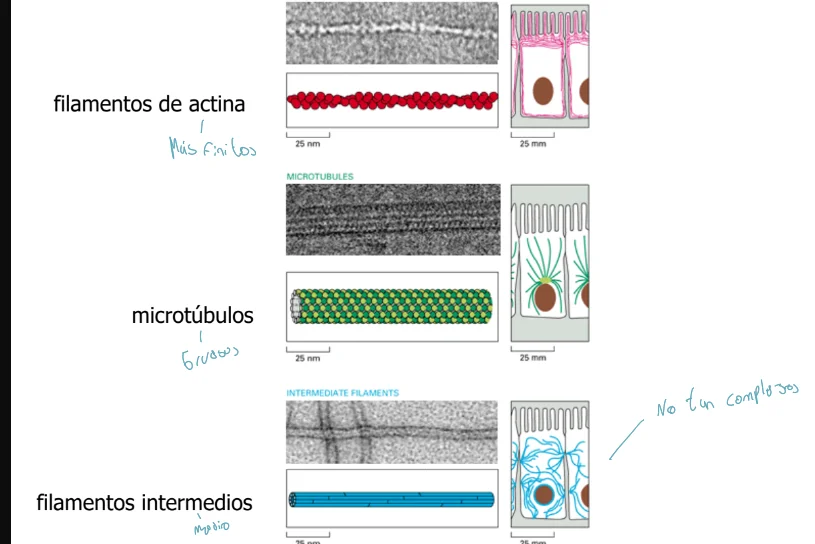
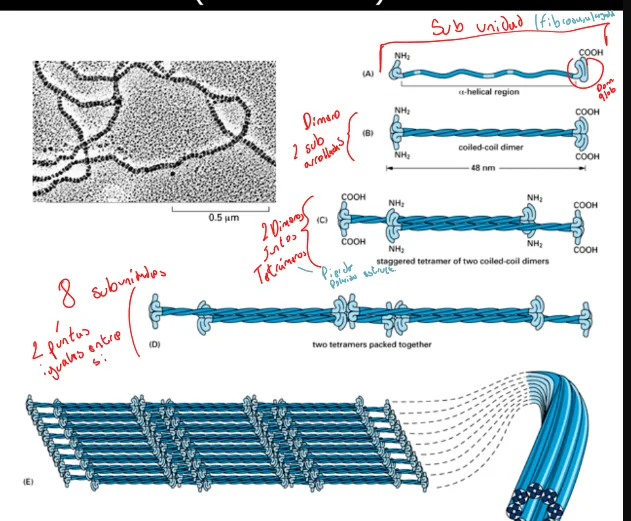
Filamentos Intermedios
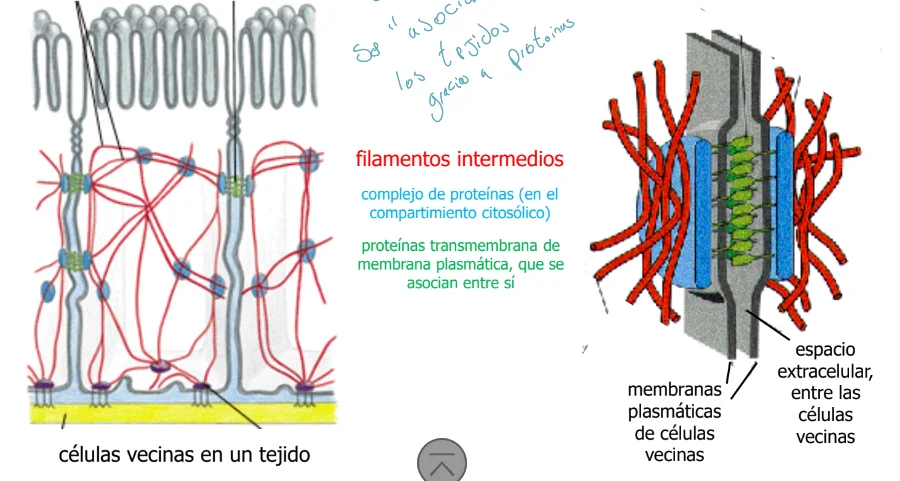
Los Filamentos Intermedios están especializados en resistir fuerzas de tracción.
Las subunidades tienen una estructura fibrosa.
No se puede distinguir un extremo del otro por la forma en que se agrupan sus subunidades.
Son los encargados de conectar las Células con sus vecinas y mantenerlas unidas con ayuda de proteínas:
Microtúbulos:
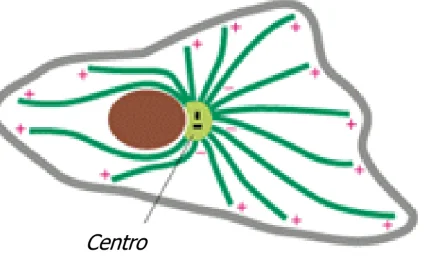
Los Microtúbulos son los organizadores de la célula.
Están ubicados de forma radial a partir del Núcleo de la Célula.
Están formados por Tubulina, alfa y beta, una proteína globular. Y quedan con dos extremos diferentes.
El polo más está orientado hacia fuera de la célula porque es el que permite que la célula se alargue o acorte usando energía.
El extremo menos está acoplado a un Centro Organizador de Microtúbulos
Sobre los Microtúbulos se mueven Proteínas Motoras, que se encargan de guiar a las vesículas. Algunas hacia el extremo más y otras hacia el menos. Lo hacen mediante hidrólisis de ATP que las hace mover las patitas.
Actina
Los Filamentos de Actina son muy similares a los Microtúbulos , pero con ambos extremos libres para añadir o quitar subunidades.
Al tener los extremos libres pueden tomar varias formas, cumpliendo varias funciones. Los filamentos de Actina trabajan junto a las Proteínas Motoras llamadas Miosinas, algunas de ellas mueven filamentos de actina en relación a otros, generando contracciones.
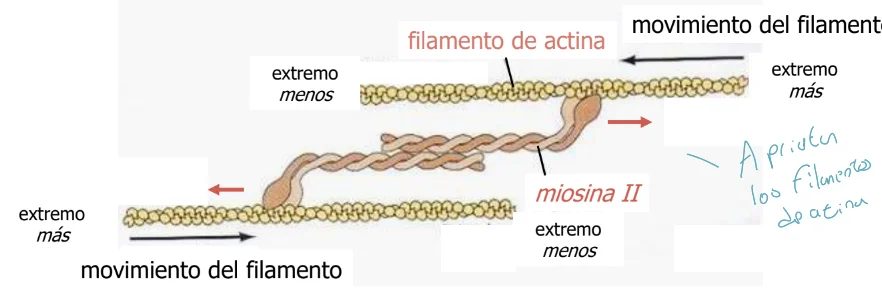
Filamentos de Actina conectados por miosinas se llaman Haces Contráctiles.
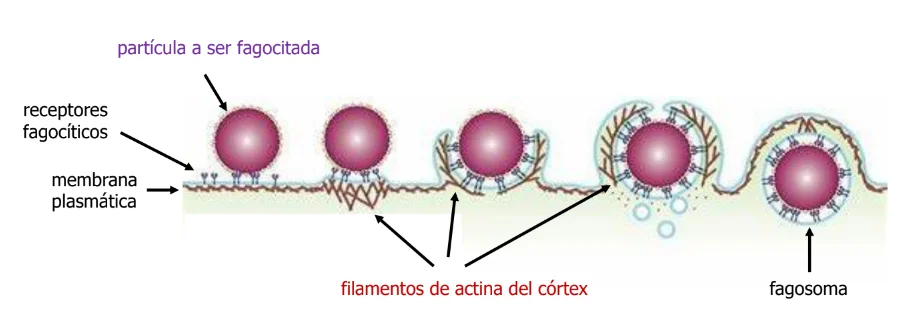
Los Filamentos de Actina son abundantes en el Córtex celular(Conexión del Citoesqueleto con la Membrana Plasmática.)
Al alargarse los filamentos generan presión en la membrana
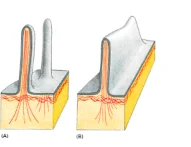
Estos filamentos son los que permiten la Fagocitosis. y el movimiento celular:
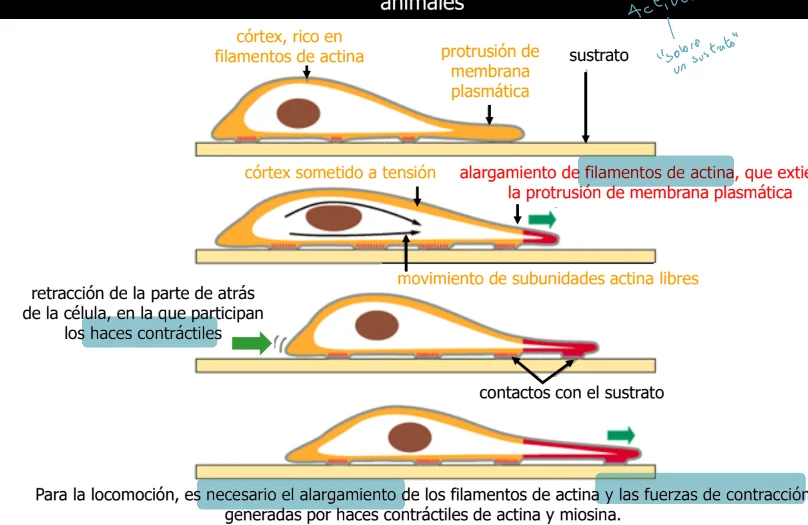
Para el movimiento celular es necesario un sustrato para apoyarse, en los Tejidos suele ser la Matriz Extracelular.
Tejidos
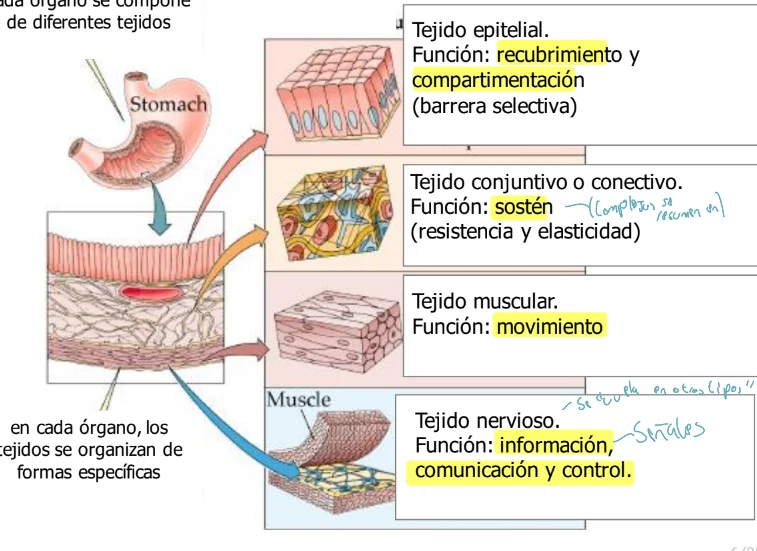
En los animales se reconocen cuatro grandes tipos de tejidos:
- Tejido Epitelial (Recubrimiento y compartimentación)
- [20 Atlas/Biología/Tejido Conjuntivo|Tejido Conjuntivo]
- [20 Atlas/Biología/Tejido Muscular|Tejido Muscular]
- Tejido Nervioso(Información, comunicación y control).
Epitelios
Hay varios tipos de epitelios diferentes:
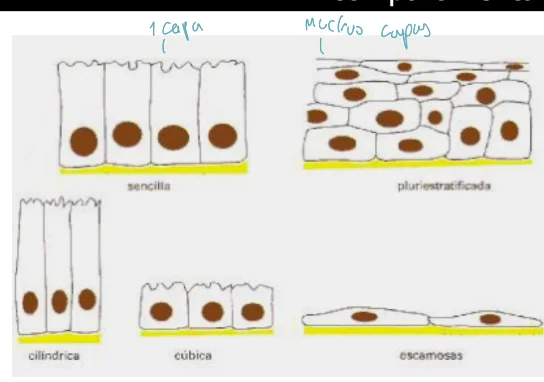
Pero básicamente las células se disponen de forma bidimensional en superficies. Durante el desarrollo ciertos epitelios se pliegan formando Cavidades y tubos.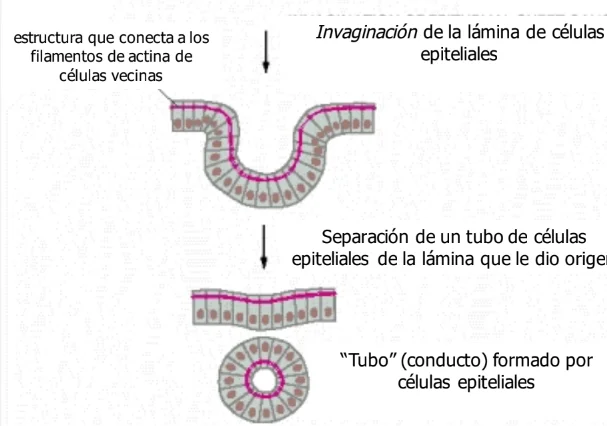
Las Células Epiteliales tienen dos polos diferenciados:
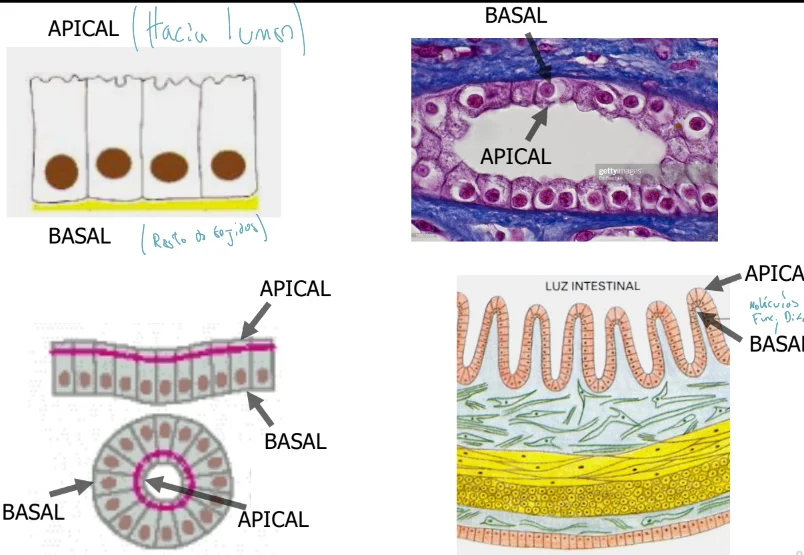
Los Epitelios con uniones estancas permiten separar cavidades con diferentes cavidades fisiológicas, y que solo pasen las moléculas seleccionada a través de la membrana de las células.
En el lado basal está la Lámina Basal que deja pasar moléculas peo puede filtrar por tamaño.
Conjuntivo
Los Tejido Conjuntivo se caracterizan por una "Escasez" de células pero abundancia de Matriz Extracelular.
Además las células están desconectadas y pueden moverse.
Además de Células, en la Matriz Extracelular también se encuentra una gran variedad de Macromoléculas.
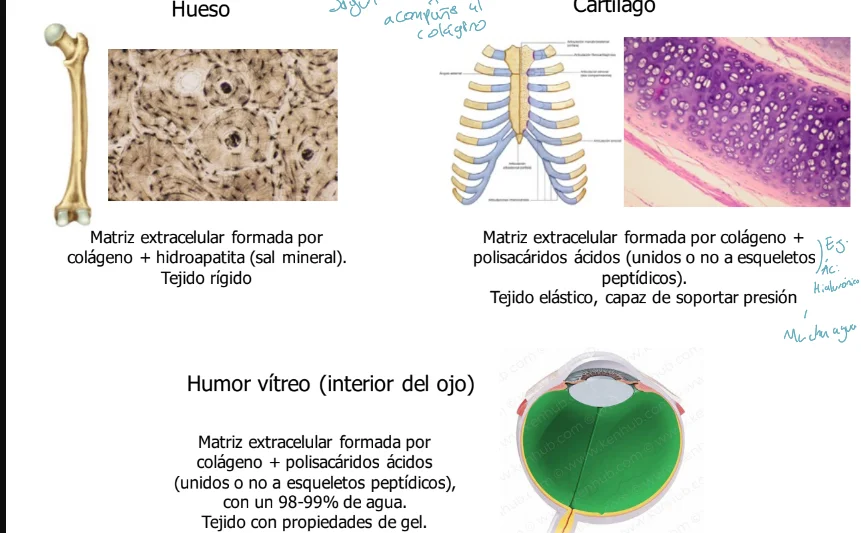
Todos los Tejido Conjuntivo tienen en común la Presencia de Colágeno que le da resistencia a la tracción.
La dureza del tejido va a depender de lo que acompañe al colágeno, y la cantidad que haya de este:
Comunicación Celular
Las células de comunican entre sí a través de Moléculas señales secretadas o por contacto de Membrana Plasmática.
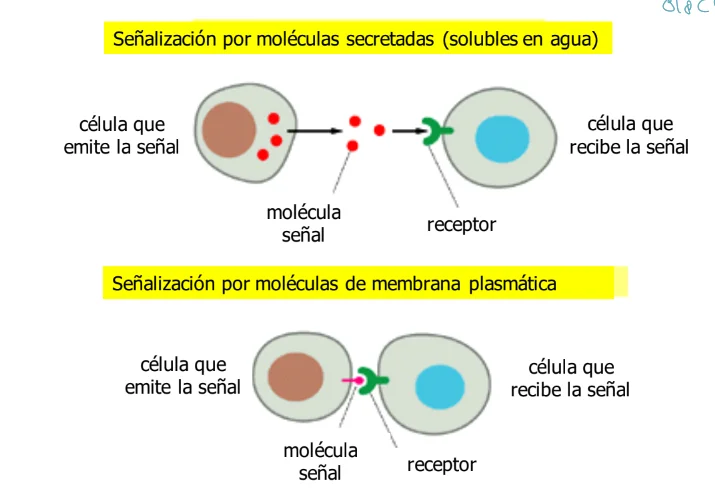
Las moléculas pequeñas e hidrofóbicas son recibidas dentro de la célula, (En el citosol o en el núcleo).
Las que son levemente polares pueden difundir por la membrana lentamente y ser recibidas por un receptor intracelular.
Los receptores de membrana reciben la molécula señal y liberan moléculas señal intracelulares:
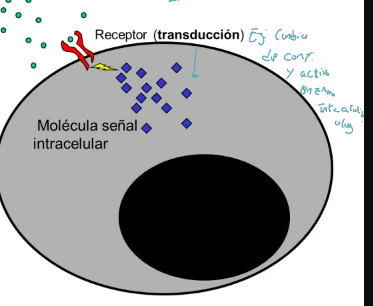
Estas comunicaciones terminan en cambios de la expresión génica, actividad enzimática o el citoesqueleto.
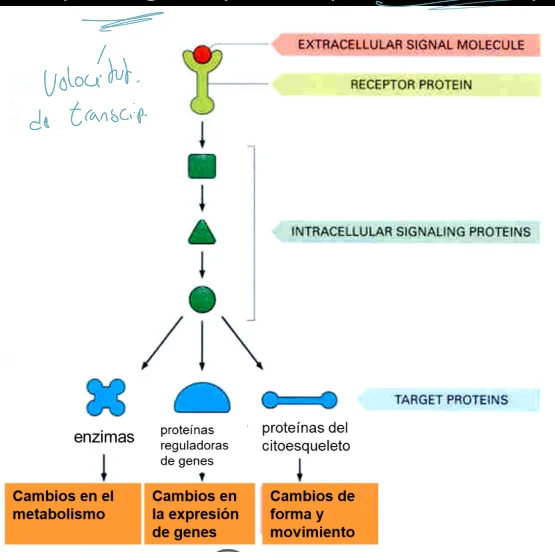
También se pueden recibir señales del medioambiente.