ICB 1
Genoma: Conjunto de toda la información genética de un organismo.
Se encuentra "almacenada" en el ADN y clasificada en 4 "Letras" , los Nucleótidos A,T,G,C.
Los Humanos diferimos del chimpancé en 1 nucleótido cada 100, y de otros humanos en 1 cada 1000.
Los Genes se almacenan en los Cromosomas, y su información se interpreta interpretando la secuencia de aminoácidos. Los humanos tenemos aprox 3*10°10 Nucleótidos en el genoma.
Cada tipo de Célula 1 va a interpretar y expresar partes diferentes del genoma, lo que la va a hacer ser diferente a las demás.
Los genes también determinan como se forman las Proteínas ya que determinan cuál de los 20 aminoácidos se va a ir sintetizando en cada paso.
Proteínas con diferente secuencia van a tener formas diferentes, por lo tanto también funciones diferentes.
El Metabolismo es la forma de un organismo o Célula 1 de obtener energía, mediante reacciones químicas.
Todas las células funcionan con las mismas macromoléculas.
Sabiendo lo que está en una hebra de ADN ya sabemos lo de la otra porque se aparean siempre : AT y GC
Errores al copiar ADN llevan a las Mutaciones
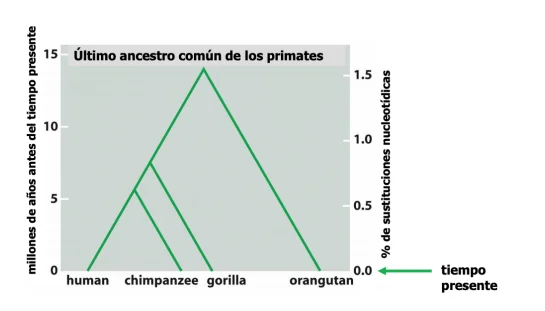
Lo anterior es un árbol filogenético, que muestra los ancestros en común entre especies. A pesar de qué el chimpance y gorila estén cercanos entre sí, en realidad están más arriba en el tiempo.
10 Niveles de organización de lo viviente:
I. Moléculas (simples o macro);
II. Complejos supramacromoleculares (Ej.: ribosoma: formado por moléculas de ADN y 80 proteínas diferentes se encarga de sintetizar proteínas);
III. Organelos: se especializan en una función y están recubiertos por membrana (Ej.: mitocondria, obtiene energía);
IV. Células: se reproducen y obtienen energía de forma autónoma, es el máximo nivel de organización para organismos unicelulares.
V. Tejidos: conjunto ordenado de células que funcionan de forma coordinada;
VI. Órganos: conjunto de tejidos que funcionan de forma coordinada;
VII.Organismos (pluricelulares);
VIII. Poblaciones (misma especie);
IX. Comunidades ecológicas (diversas especies);
X. Biosfera (todo lo viviente).
Una célula proviene siempre de otra preexistente , los pluricelulares surgimos del cigoto, que se auto divide y va formando celulas que se especializan interpretando diferentes partes del genoma. porque Todas las células poseen el mismo ADN si son del mismo ser.
El ADN que se transmite entre generaciones es únicamente el de las células reproductivas. (Línea Germinal).
Todos los seres pluricelulares son Eucariotas (Con núcleo de ADN) y organelos.
Microscopio Óptico: permite aumentar hasta 2000nm (1000x el ojo desnudo humano). Nos permite observar células vivas, bacterias y organelos. Utiliza la luz como fuente de energía y cristales como lentes. Y se suelen teñir o modificar para fluorescencia las células.
Electrónico permite aumentar hasta 0.2 nm, (1000x mas que el óptico y 1.000.000x mas que el ojo humano). Nos permite observar virus, proteínas, lípidos, moléculas y átomos. JG 3 Utiliza haces de electrones como fuente de energía y sus lentes son electromagnéticos. No es posible ver organismos vivos ya que requiere un procesamiento no compatible con la vida. Dentro del microscopio electrónico, podemos encontrar aquel que es de transmisión (imágenes en 2D) y aquel de barrido (3D).
En los seres vivos hay un conjunto restringido de elementos:
H, O, C, N, Mg, K, Ca.
El agua ocupa el 70% de las células, y el otro 30% son las macromoléculas.
El C tiene gran capacidad de formar enlaces covalentes entre sí y con 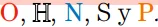
C Forma 4 enlaces covaelntes.
N Forma 3 enlaces covalentes.
O Forma 2 enlaces covalentes.
H forma 1 enlace covalente
Siempre buscan completar su capa de valencia, y el Enlace covalente simple puede rotar dando lugar a isómeros ópticos si el carbono es quiral, mientras que el Doble no puede rotar, pero se puede formar cis o trans
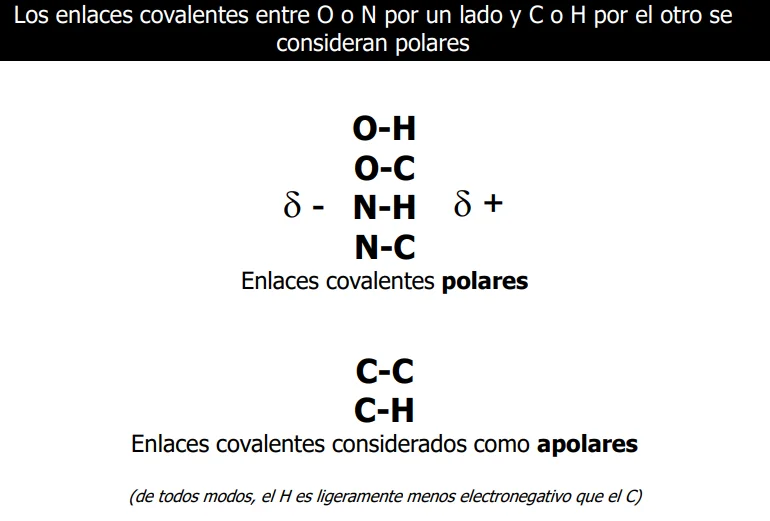
**El Enlace de Hidrógeno
se forma por la presencia de moléculas polares. 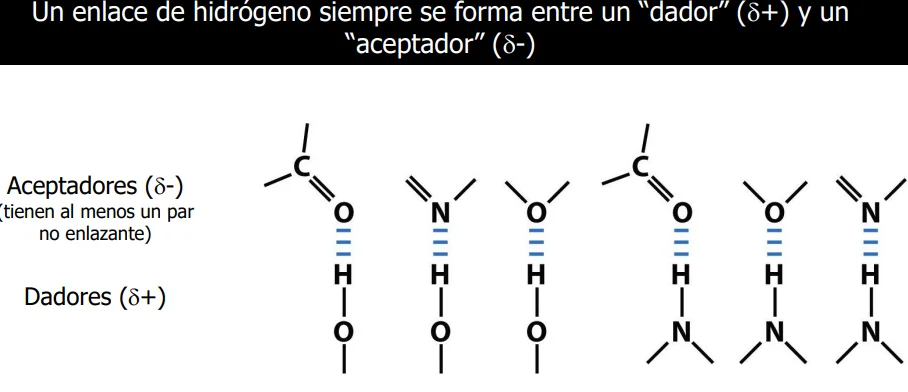
(El Hidrógeno debe ser por un enlace polar)
Enlace de hidrógeno permite que el agua forme 4 enlaces de hidrógeno, aunque en estado líquido van a ser transitorios.
Gran capacidad de disolver moléculas polares con capacidad de generar enlace de H, e iónicas. ya que El agua debilita, por competencia, los enlaces de H entre otras moléculas. (Apantallamiento de cargas)
Por esto las moléculas polares son hidrofílicas, las apolares hidrofóbicas y algunas anfipáticas.
El agua es capaz de ionizarse. 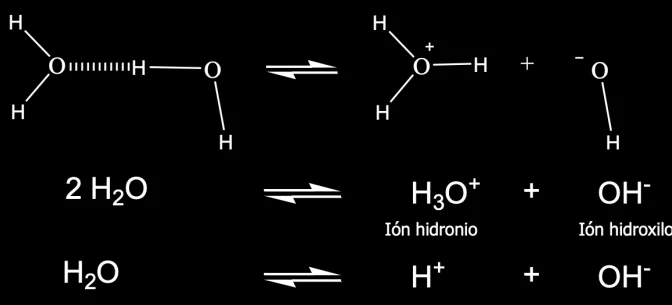
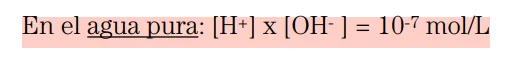
**Equilibrio ácido Base
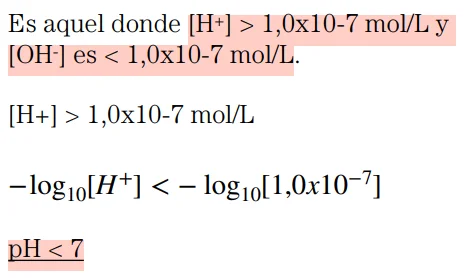
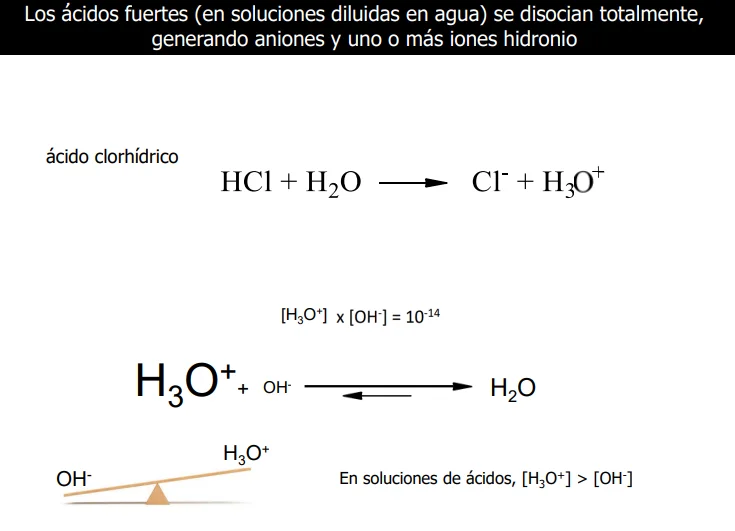
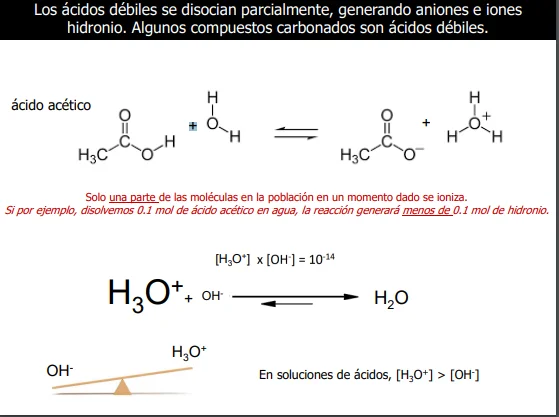
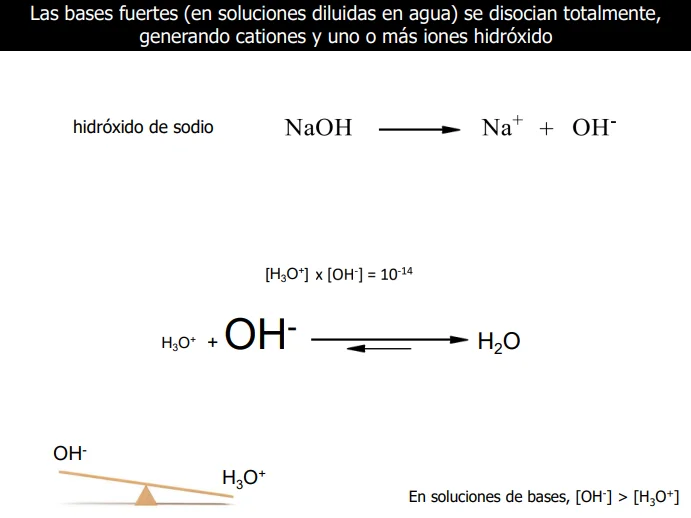
Al añadir un ácido o base al agua, cambiamos la concentración de hidrogeniones(protones) e hidroxilos.

Al añadir un ácido, liberará protones lo que aumentará su concentración de hidrogeniones y disminuirá la de hidroxilos. y desplazará el equilibrio a favor de la generación de H.
El medio ácido
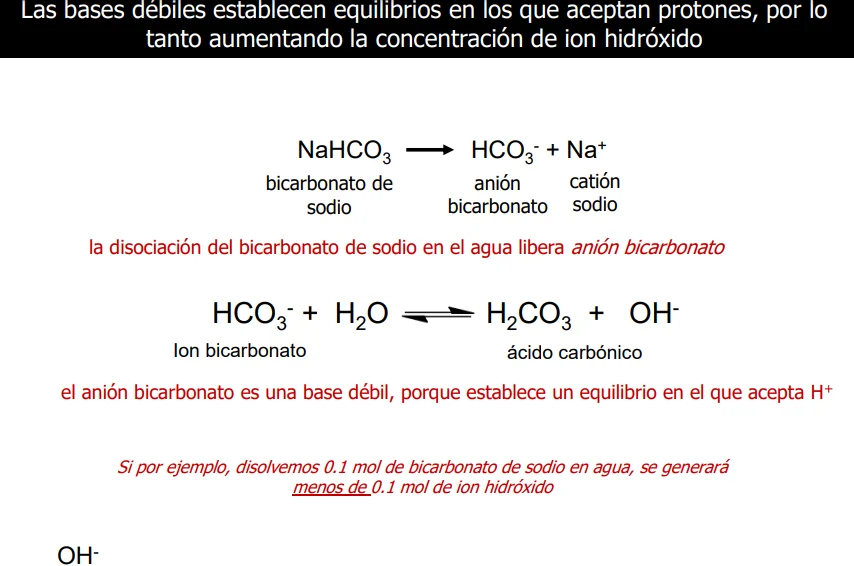
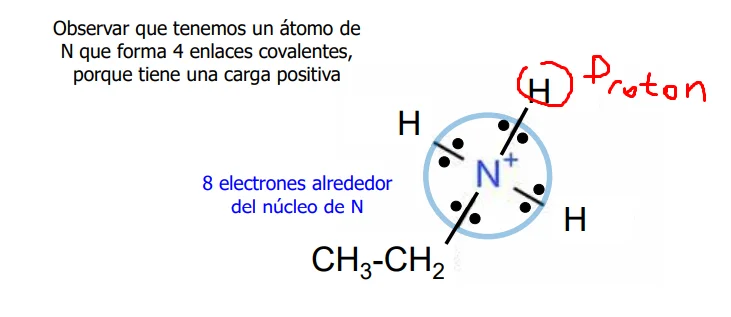
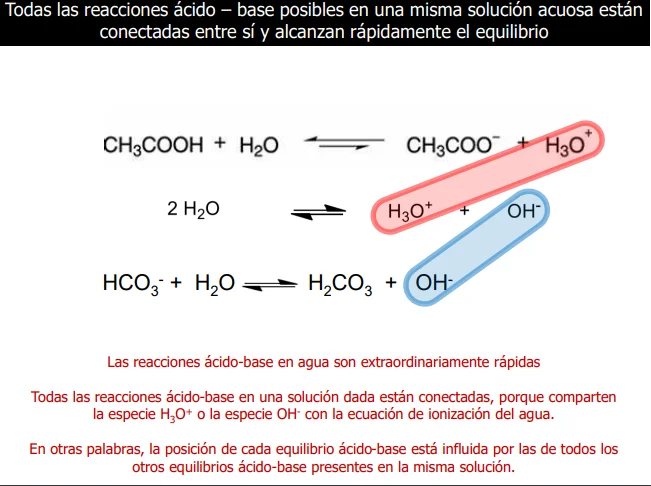
Los fluidos biológicos tienen sus PH fijos por la acción de amortiguadores (Buffer).
**Grupos Funcionales.
Son heteroátomos unidos a cadenas carbonadas mediante enlace covalente.
***Alcohol .
Son los OH (hidroxilos) unidos a C que no están unidos a otros átomos.
Puede ser primario, secundario o terciario dependiendo de a cuantos C está unido el C al que el grupo alcohol está unido.
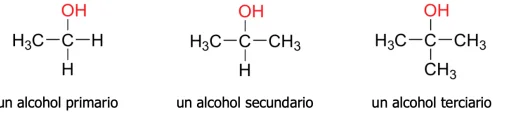
Aceptador y dador de Enlace de Hidrógeno. Neutros
***Aldehídos y Cetonas.
Son Carbonilos C=O unidos al extremo o al medio de una cadena.
EXTREMO= Aldehido.
CENTRO= Cetona (Cen , Ce para acordarme)
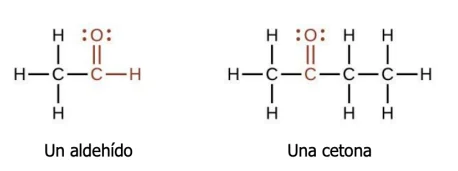
Aceptadores de enlace H, no dadores. Neutros
***Ácidos Carboxílicos
Carbonilo C=O, e hidroxilo OH, unidos al mismo carbono.
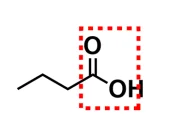
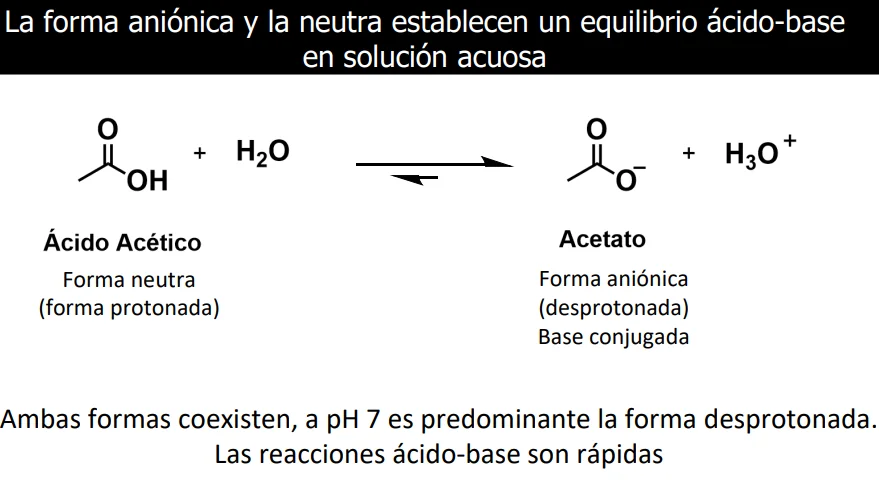
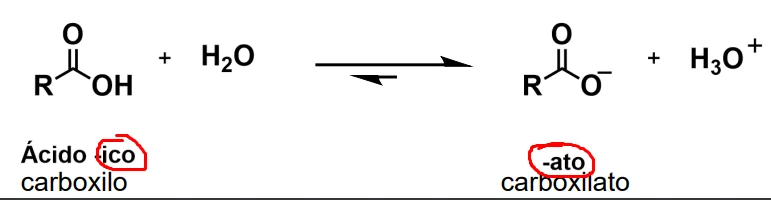
Aporta polaridad, y en agua se desprotona,
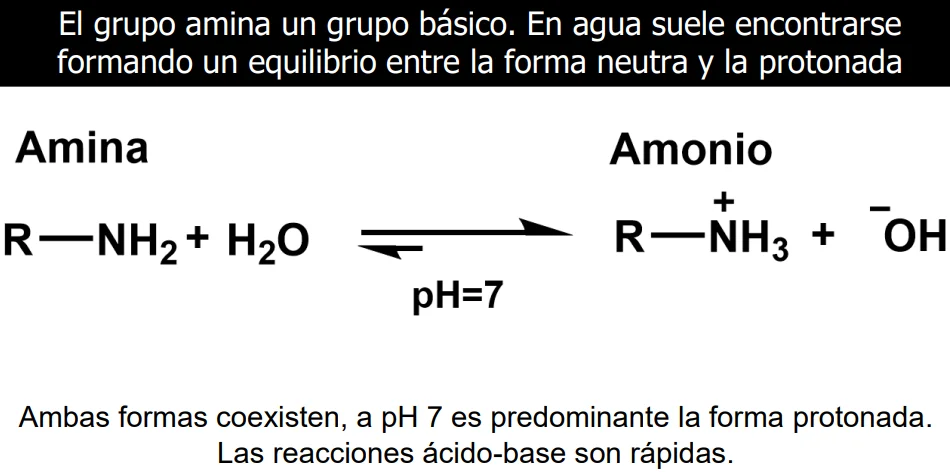
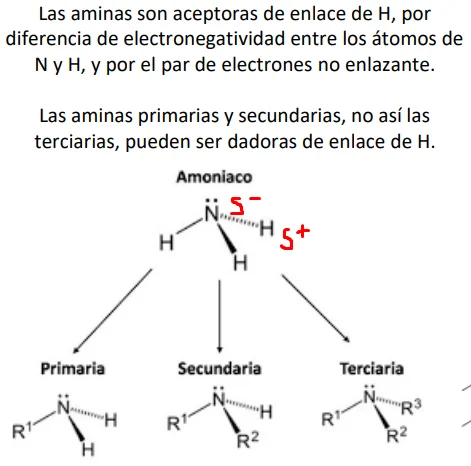
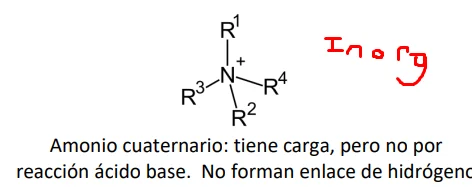
***Aminas
Nitrógeno y carbono no unido a otro heteroátomo. N-C 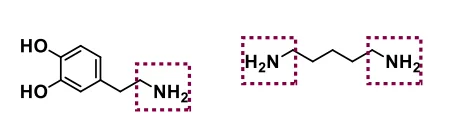
Aporta polaridad.
***Esteres
"remplazar el h del ácido carboxílico por una cadena de carbonos empezando por carbón".
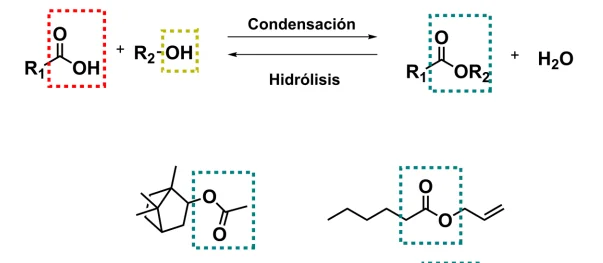
Neutros, aceptador de enlace H, menor polaridad.
Amidas
"Como ésteres pero la cadena carbonada empieza por amina". 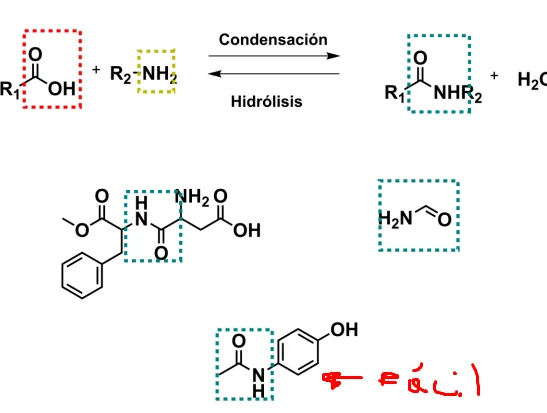
Dador de enlace H y aceptador. Neutros, menor polaridad.
***Fosfato.
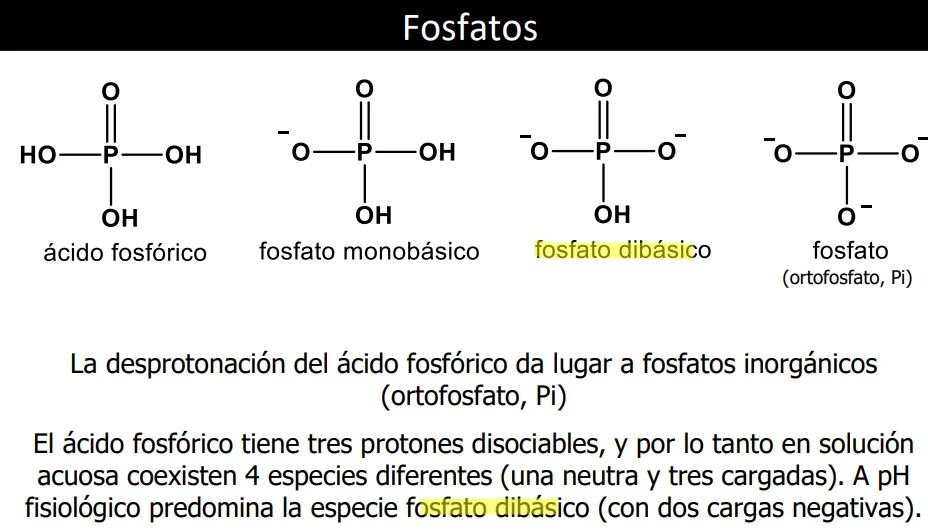
Fosfoéster.
Como éster pero de fosfato a alcohol.
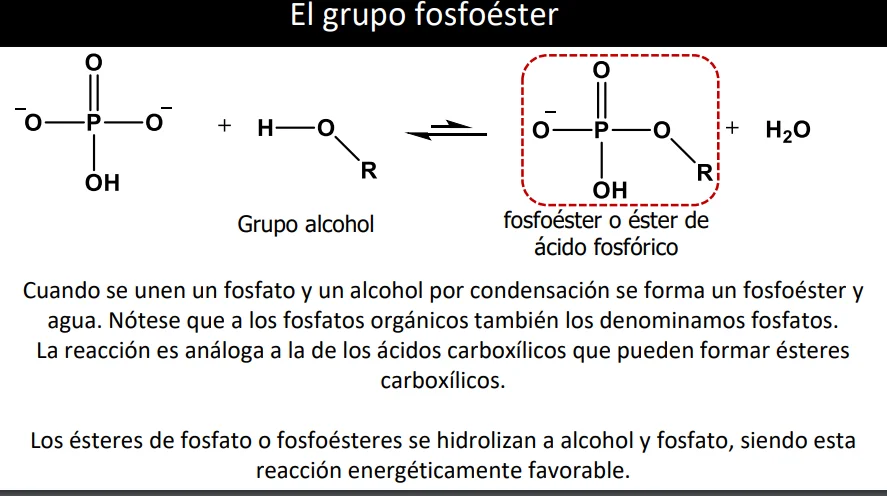
El mismo fosfato puede ser esterificado dos veces formando un fosfo di éster.
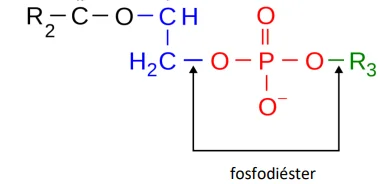
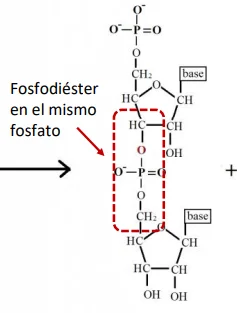
Unión entre fosfatos no es fosfodiéster
Es Fosfoanhídrido 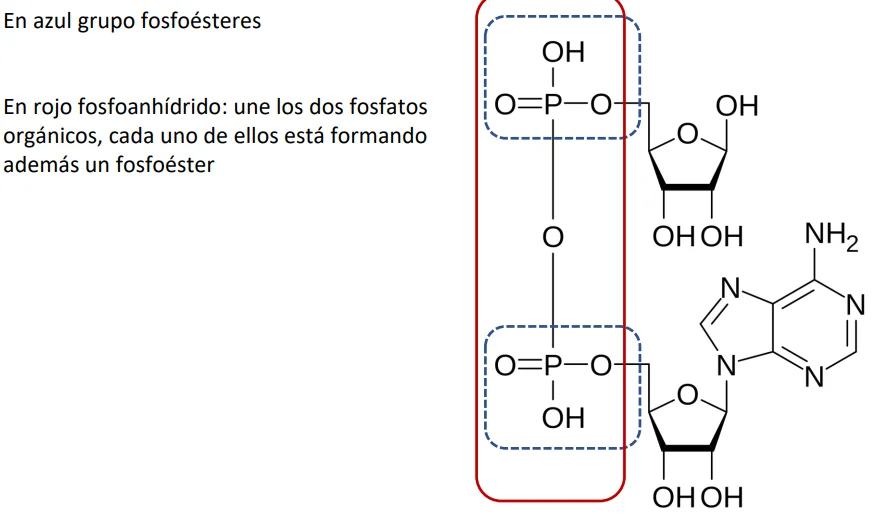
**Redox
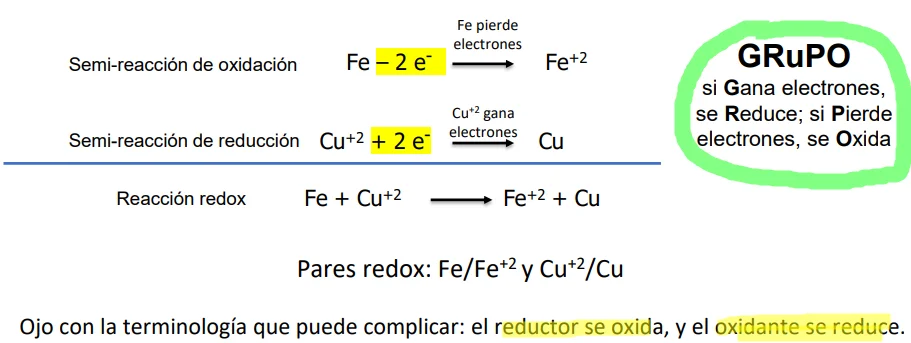
Reacciones en las que un átomo gana electrones y otro los pierde.
Cada reacción redox se compone de una semi reacción reducción y una semirreacción de oxidación.
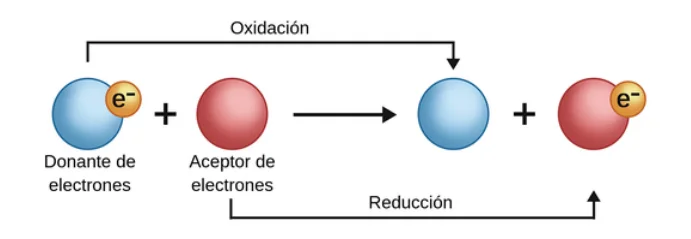
Los Pares de moléculas de esta reacción se llaman pares redox.
El carbono es levemente más electronegativo que el hidrogeno, por lo que en un enlace C-H "gana" electrones, y su estado de oxidación es -1 (se redujo). Pero es carga parcial porque en enlace es covalente
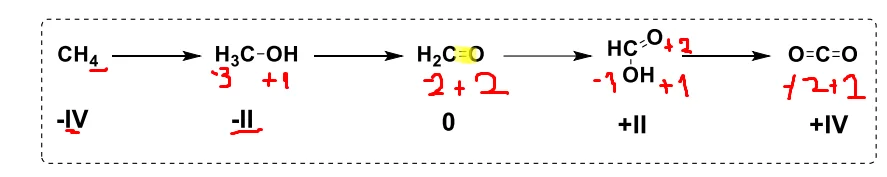
C-H -1, C-O +1, C-N +1.
Cuándo ocurren reacciones redox en moléculas carbonadas, suceden cambios en los enlaces entre carbonos. De simple a doble por ejemplo.
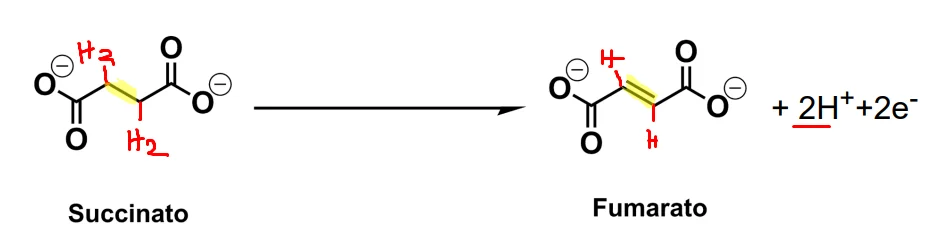
En las células se usa la Nicotina Adenina Dinucleótido (Nad) para el transporte de electrones.
***Polímeros
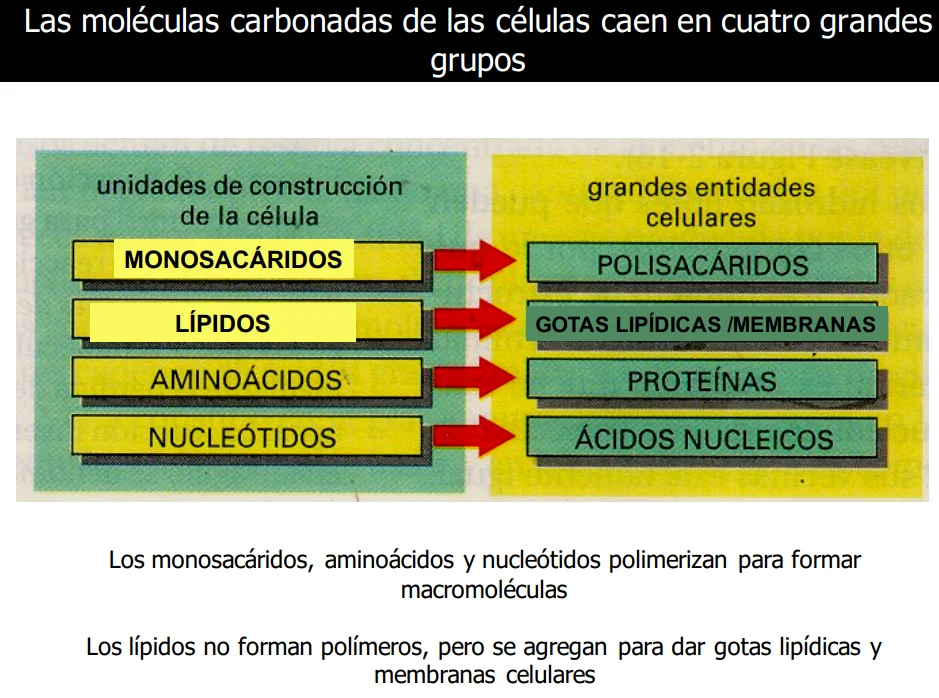
Azúcares, glúcidos y carbohidratos son sinónimos.
Tienen a los monosacáridos como unidad mínima.
Monosacáridos se componen de 1 Aldehido o Cetona(C=O) y 2 o+ Alcohol(C-OH) .
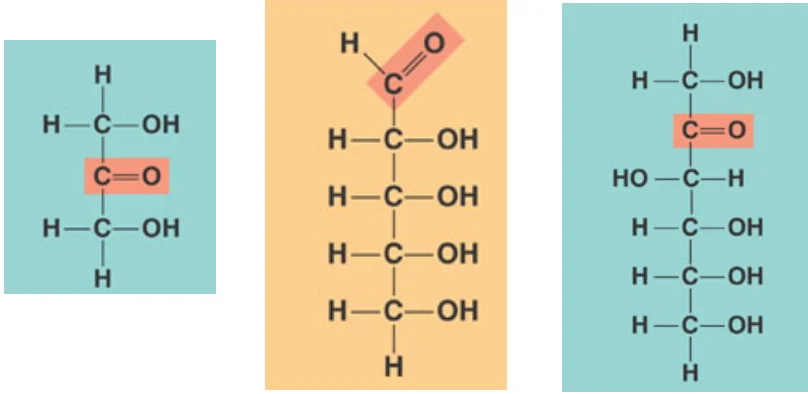
Son muy Polares. El Carbono con el anomérico es el Anomérico marcado en rojo arriba.
Si son de :
Aldehído son Aldosas (Se cuentan desde el Anomérico, y son reductoras.(Puede transformarse en ácido carboxílico.))
Cetona son Cetosas (Se cuentan desde el más cercano al Anomérico, no son reductoras.)
Tienden a existir en forma cíclica. El anomérico se distingue por estar unido a 2 O
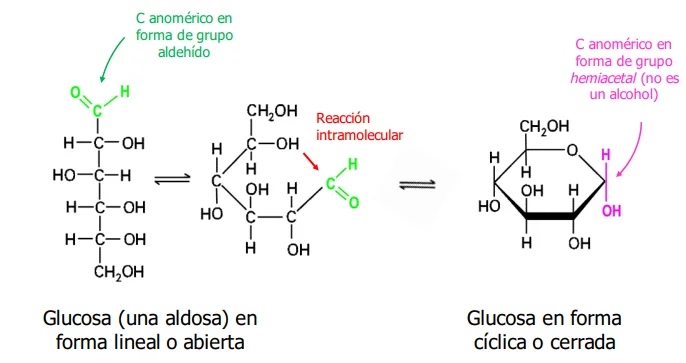
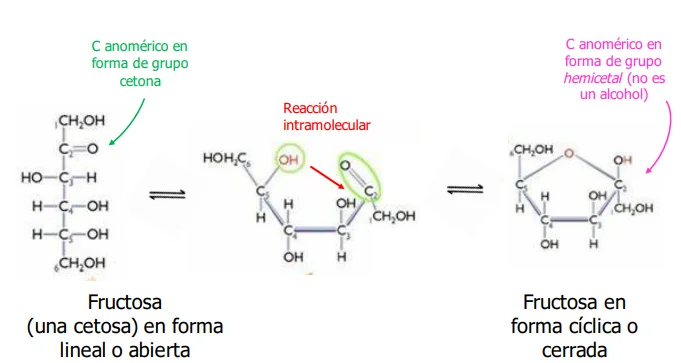
Se pueden formar dos configuraciones cíclicas diferentes:
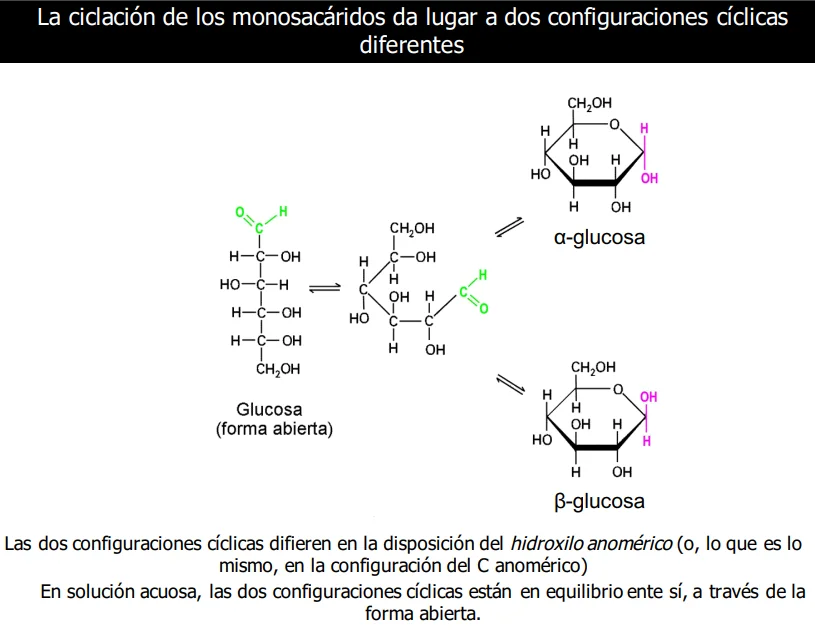
Las diferencias en los demás alcoholes no anoméricos también dan lugar a carbohidratos diferentes, y estos cambios no pueden ser modificados facilmente.
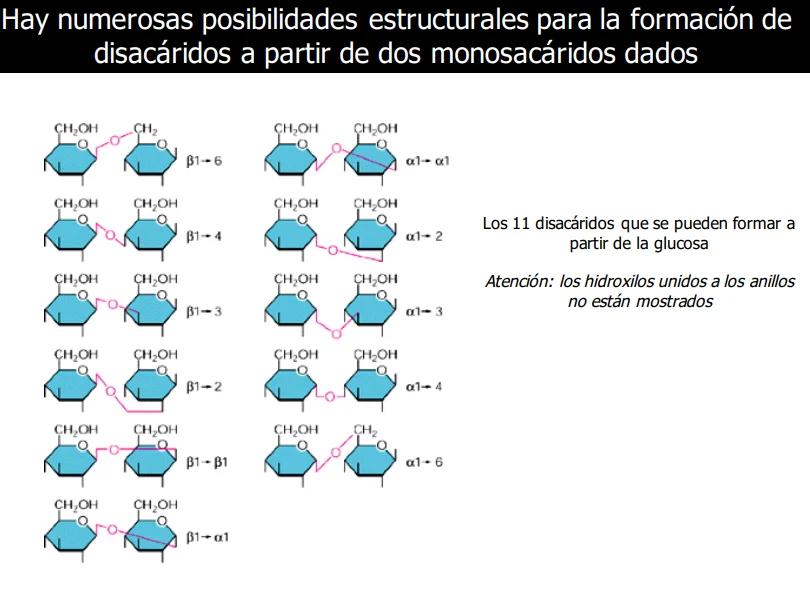
***Unión entre azúcares.
Unión O glucosídica 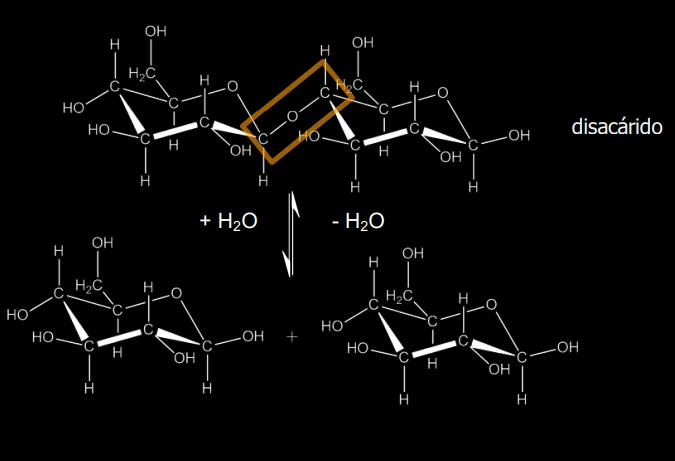
Desaparece el equilibrio entre formas alfa y beta para la que une su Carbono anomérico, que queda fija en la forma que toma.
Para diferenciar fácil aldosas y cetosas:
Aldosas no tienen enlace con C en el anomérico
Cetosas si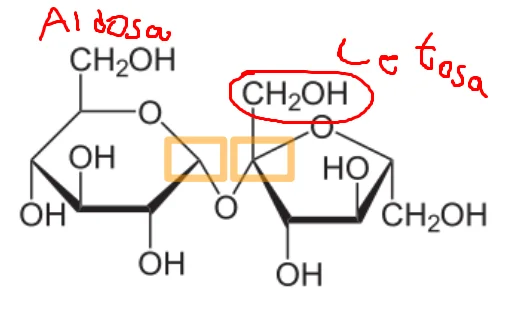
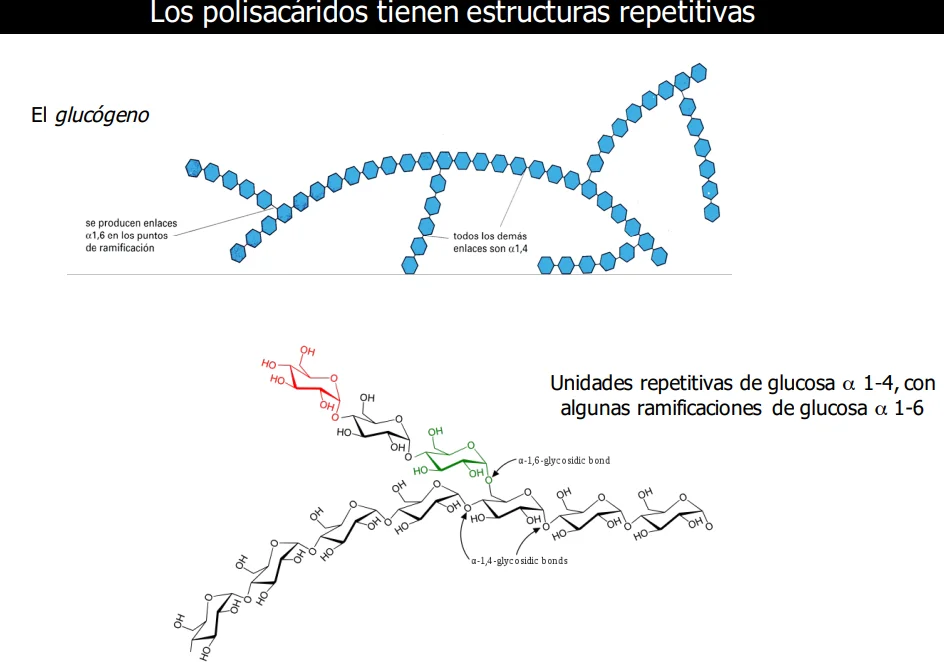
Los Polisacáridos son los únicos polímeros que se ramifican
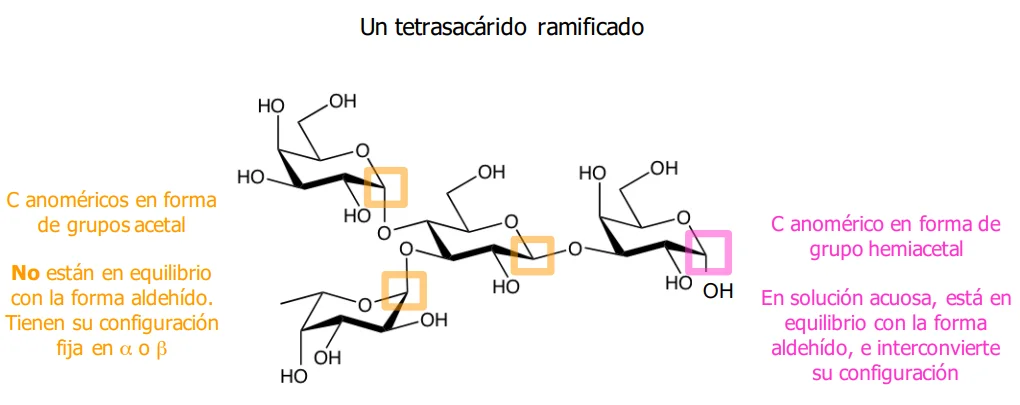
Oligosacáridos complejos (Polisacáridos sin estructuras repetitivas) casi siempre unidos por uniones O glicosidicas a Proteínas o Lípidos.
Mientras que los polisacáridos, tienen estructuras repetitivas en cadenas, con algunas ramificaciones también repetitivas.
Nucleótidos y Ácidos nucleicos.
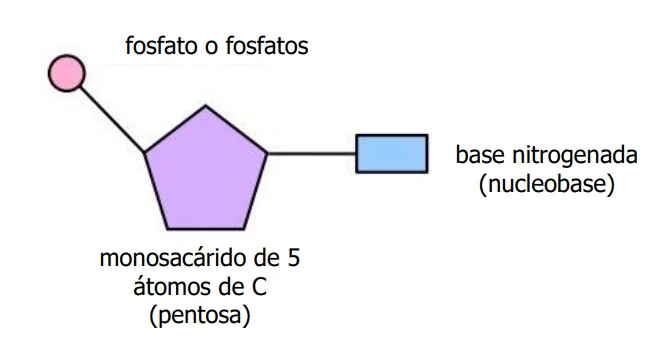
Cada nucleótido está formado por una base Nitrogenada(Nucleobase), un monosacárido, y uno o más fosfatos.
***Nucleobases
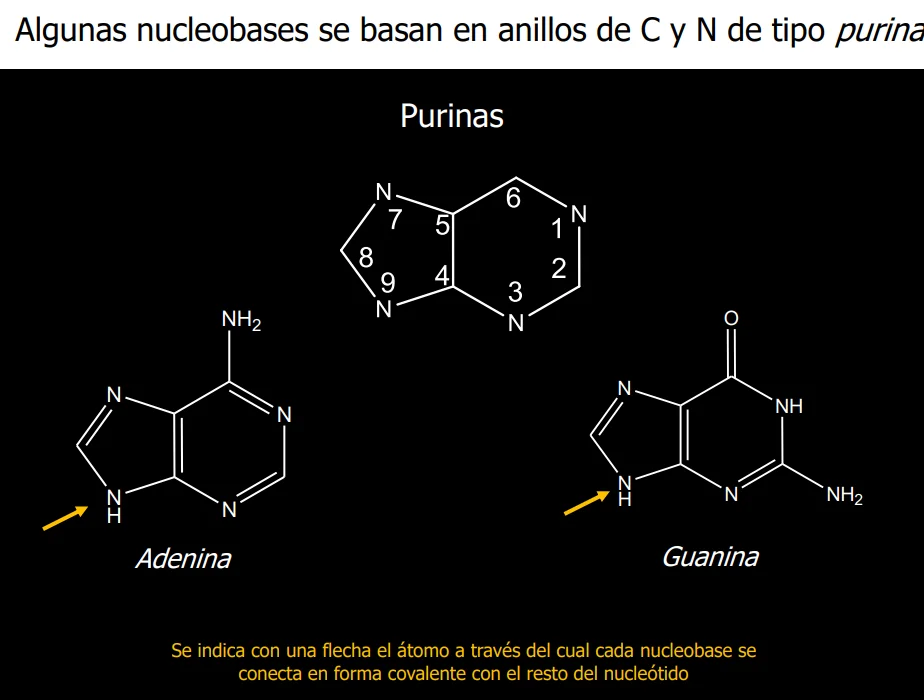
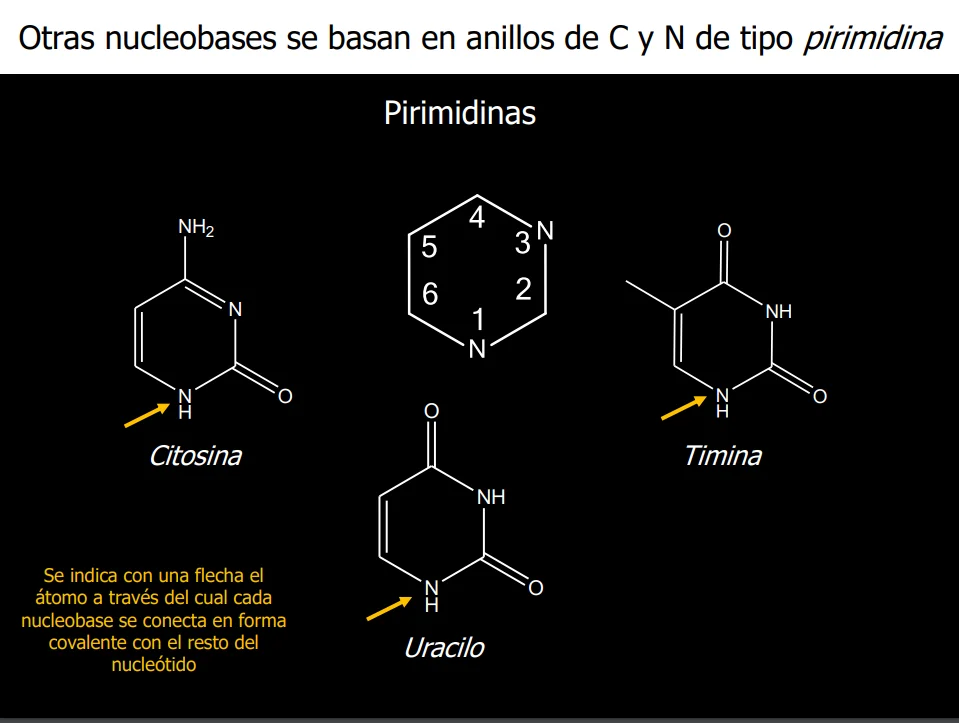
Ambos tipos de Nucleobases son Rígidas y planas por la multitud de doble enlaces y su forma cíclica.
***Nucleósidos
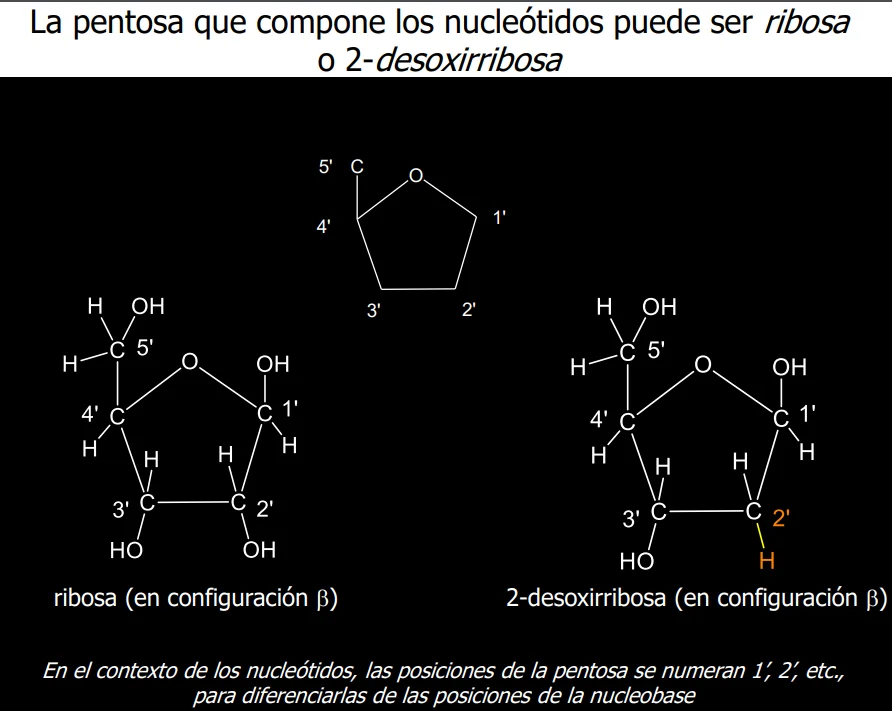
Y se unen a las bases por uniones N- Glicosidicas. Dando lugar a los Nucleósidos.
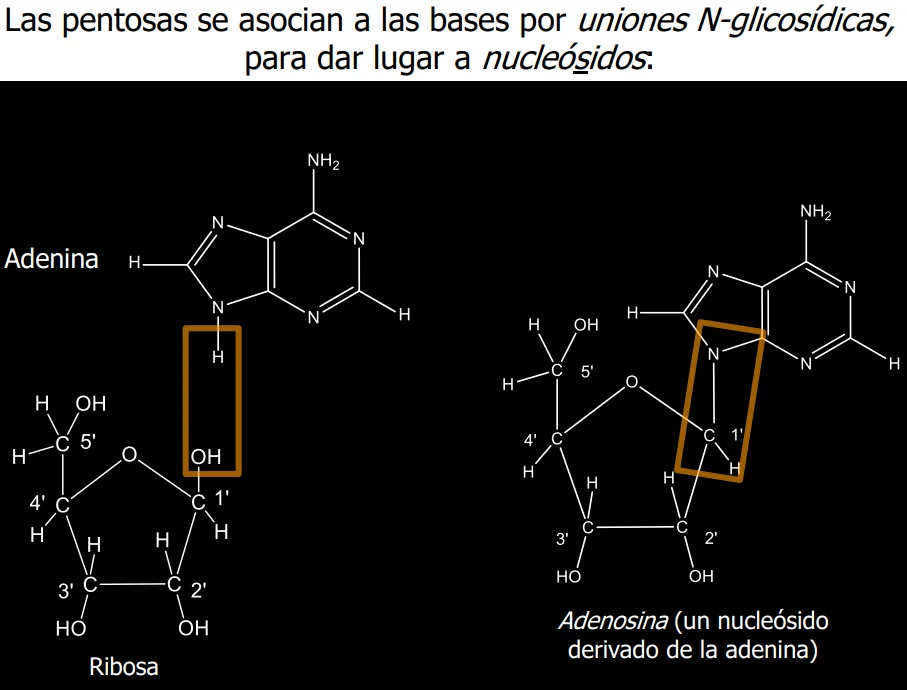
El Carbono anomérico queda unido a un átomo de O y uno de N, quedando fijo en la configuración dada.
En los nucleósidos la ribosa y desoxirribosa siempre está en posición beta.
***Fosfatos.
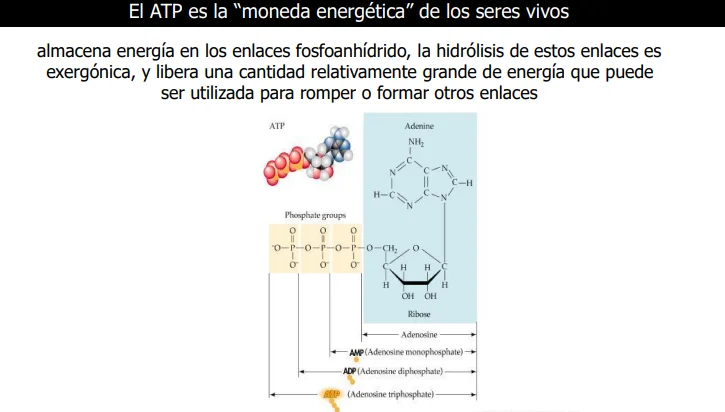
Pueden tener uno o varios fosfatos unidos por fosfoester y fosfoanhídrido.
(Generalmente son 1,2 o 3 fosfatos en la posición 5)
ATP: adenosina trifosfato
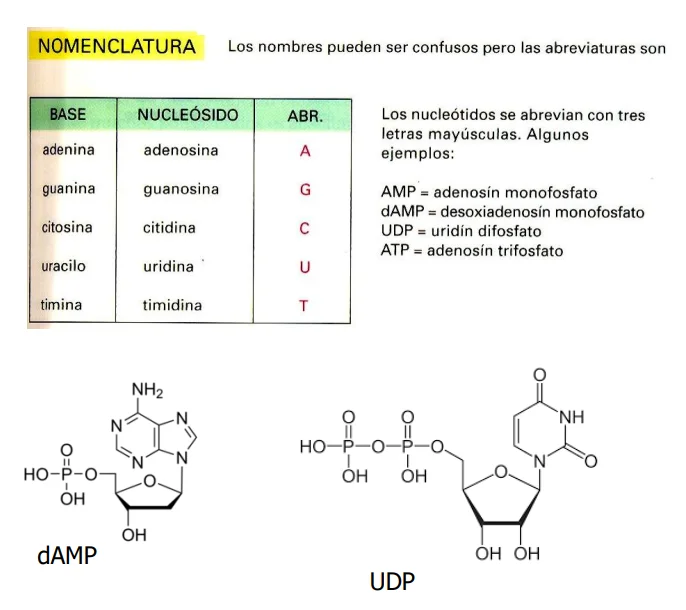
Algunas de las funciones de los nucleótidos individualmente (como Monómeros) son:
Transporte de energía en sus fosfoanhídridos. (ATP)
Combinarse con otros grupos para formar coenzimas.
Como moléculas señalizadoras.
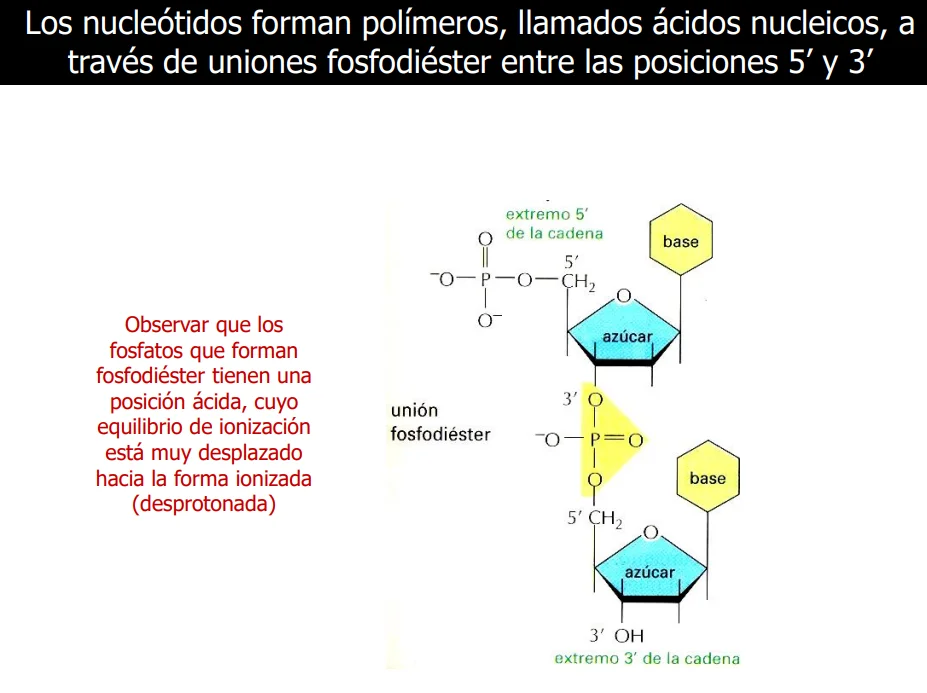
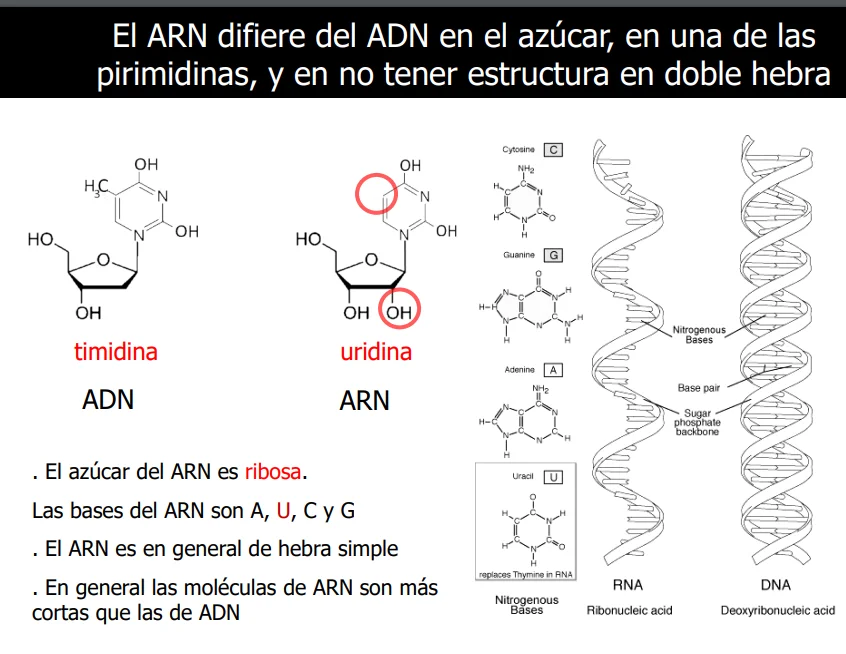
Como las uniones entre nucleótidos no dependen de las bases nitrogenadas, se unen formando un Esqueleto azúcar Fosfato.
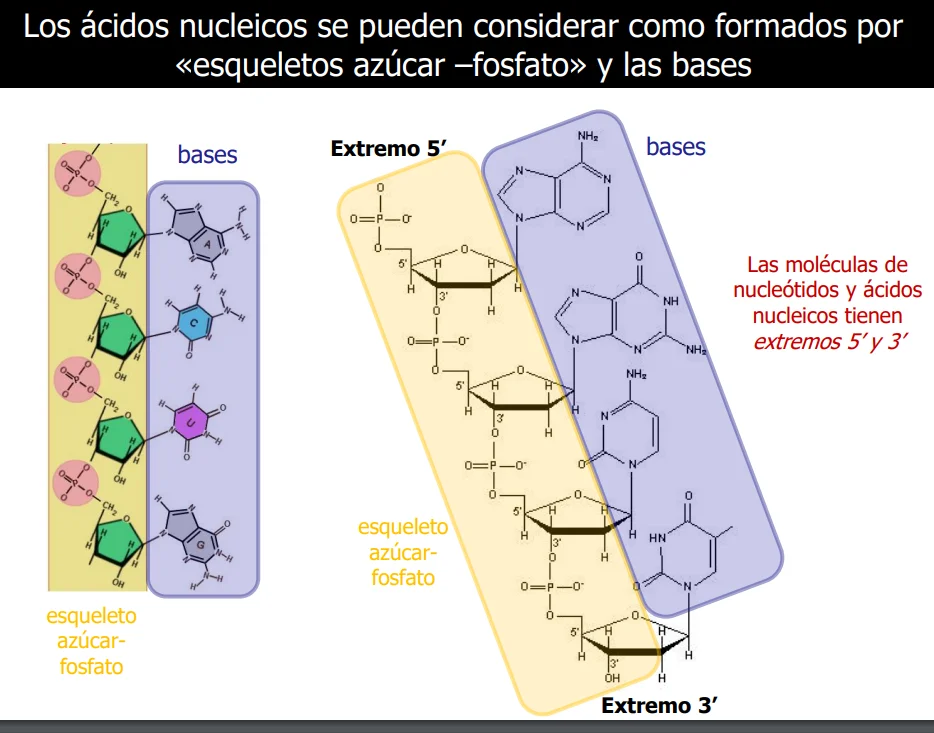
Por lo que podemos identificar los diferentes Ácidos nucleicos. simplemente por sus secuencias de bases. EJ: 5' AGTC 3'
Dos cadenas de nucleobases pueden aparearse mediante enlaces de hidrógeno.
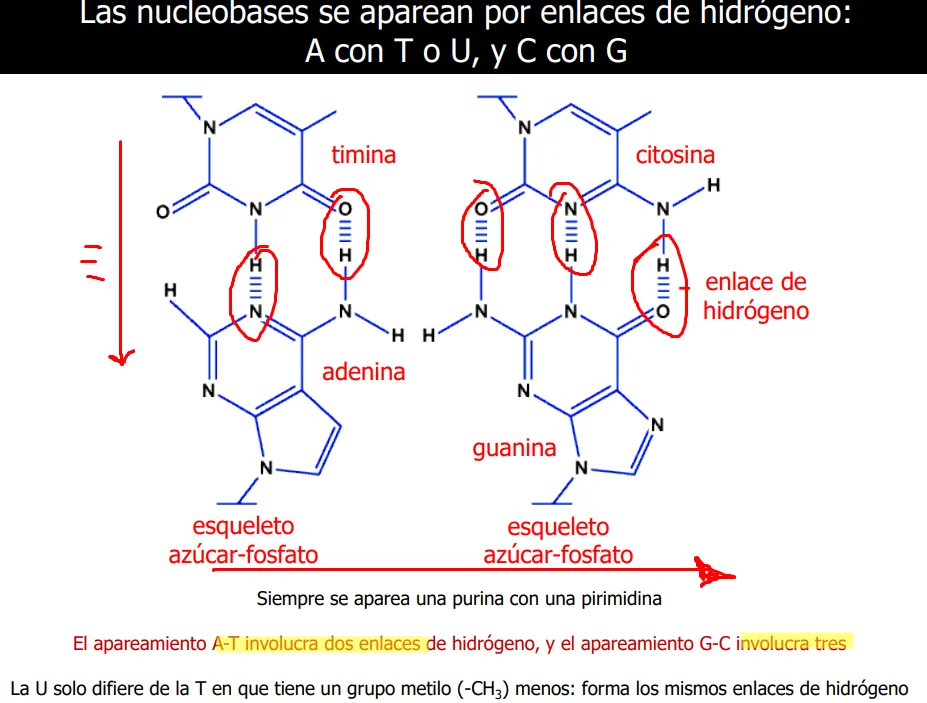
Los pares de nucleobases también son rígidos, pero como los enlaces entre azúcar fosfato son covalentes simples pueden rotar, lo que le da la forma al ADN que es 2 hebras de ácidos nucleicos antiparalelas enlazadas.
Al formarse miles de enlaces de hidrógeno simultáneos, el agua no puede competir y disolverlos, ya que entre ellos se "ayudan".
Para secuenciar el ADN basta con secuenciar una hebra, porque la otra siempre va a ser su par.
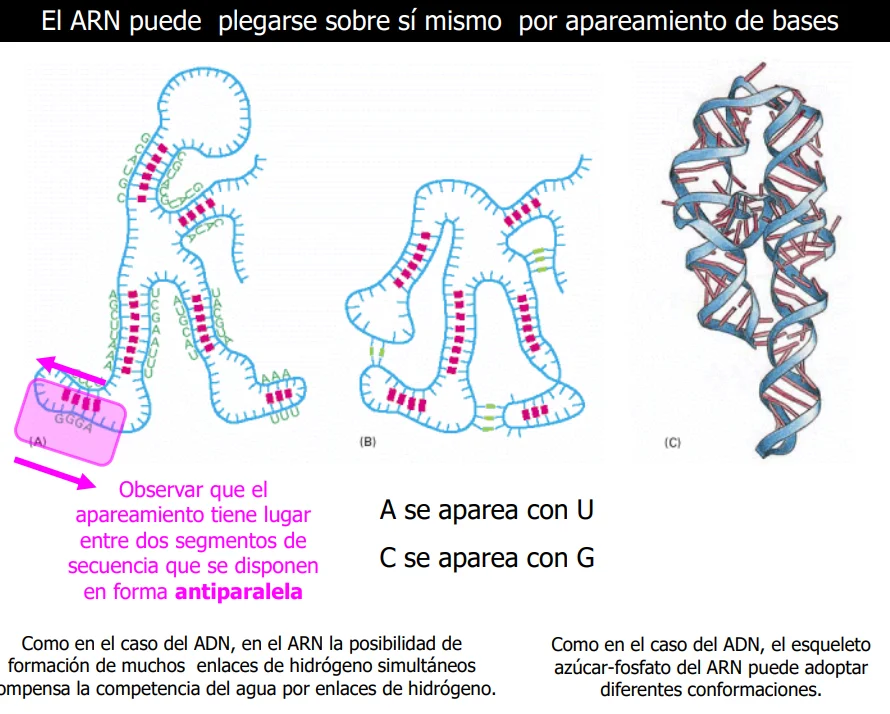
El ARN puede plegarse sobre sí mismo por apareamiento de bases.
Como funcionan de una manera similar a las Proteínas se les da también 3 niveles de estructura.
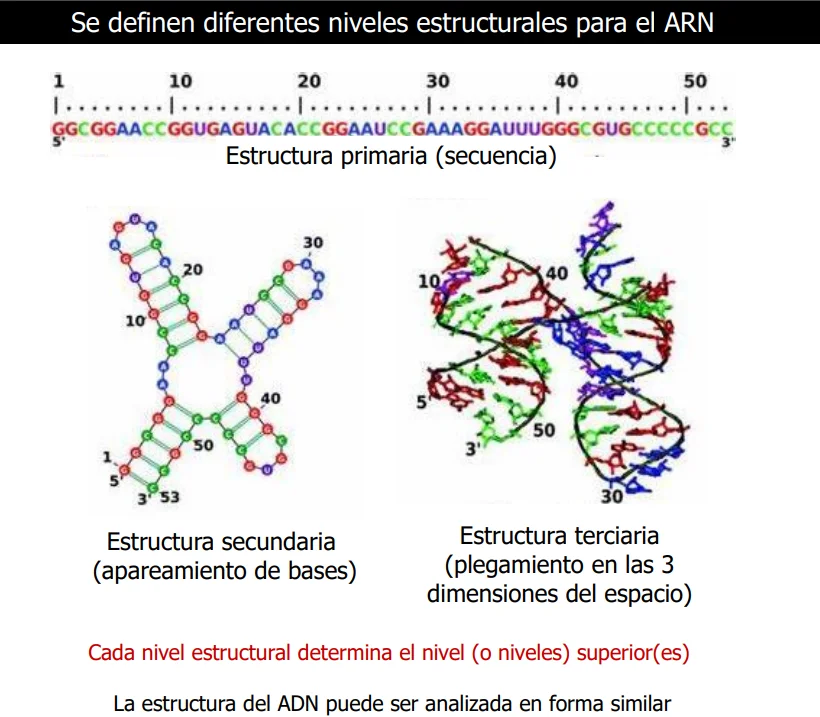
El ARN puede funcionar como el ADN (transportando información en su secuencia.) o como proteínas, realizando una función según su estructura tridimensional.
PROTEINAS.
Las proteínas son los "personajes principales de todos los procesos celulares."
Su gran variedad de funciones se debe a la gran cantidad de formas que puede tomar. Una encima típica suele tener unos 5nm de Diámetro.
Están compuestas de miles de átomos, y su forma está definidas según la posición de cada uno de esos átomos.
Cada proteína puede ser vista desde varios sitios con diferentes propiedades químicas.
Son Polímeros de entre 20 tipos de aminoácidos. (moléculas con un grupo amino y un ácido carboxílico) Deben estar unidos al mismo carbono alfa
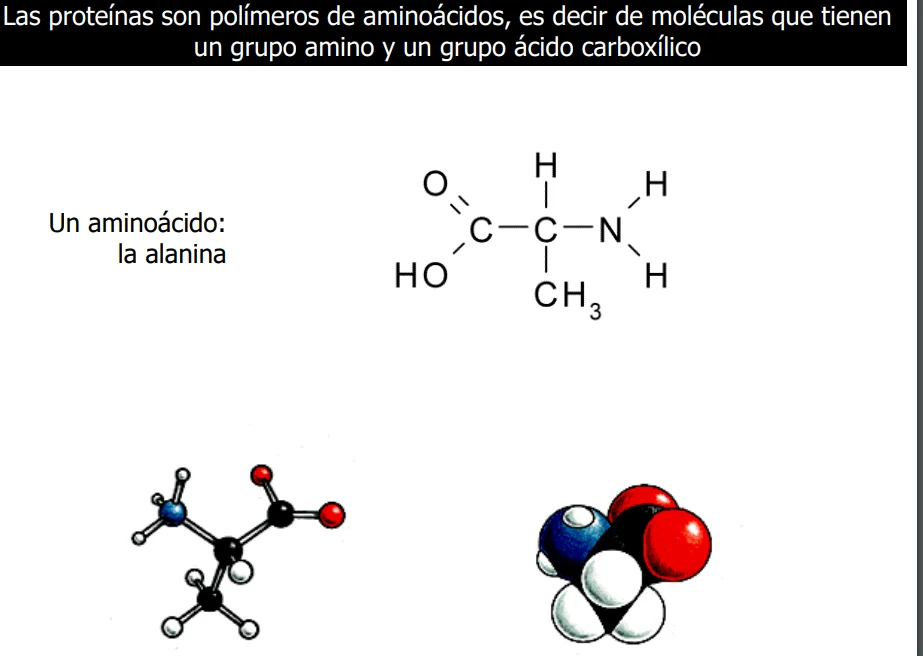
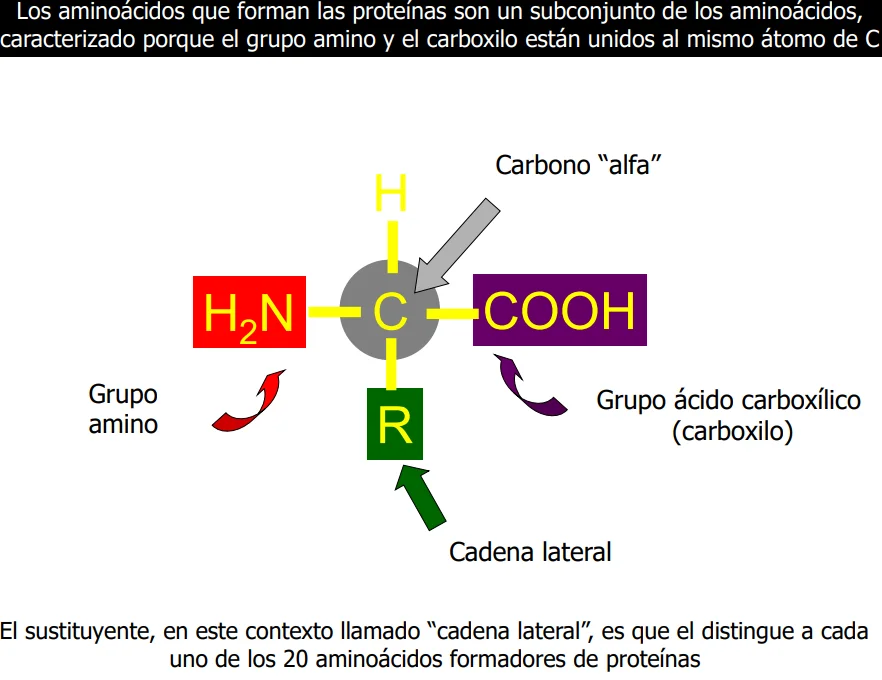
Los aminoácidos se conectan entre sí mediante uniones amida, formando péptidos. 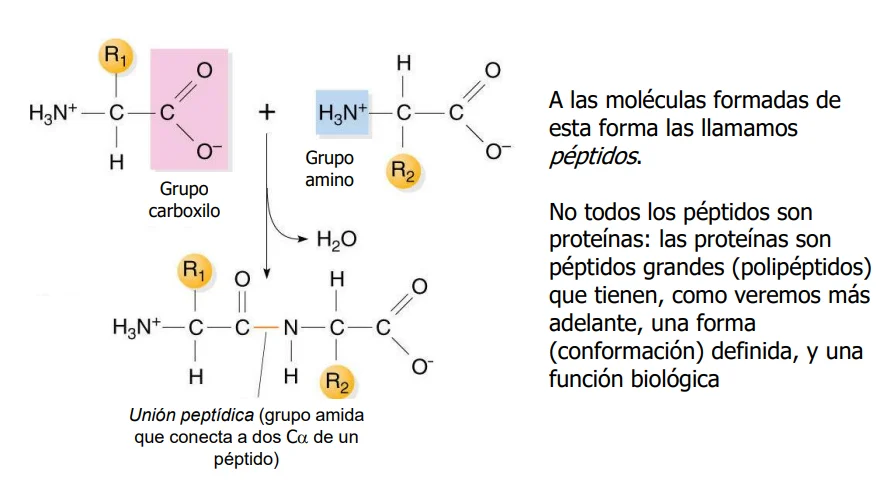
A partir de 2 aminoácidos se pueden formar 2 dipéptidos diferentes según cuál esté primero
Los péptidos tienen un extremo amino (N terminal), y un extremo carboxilo (C terminal)
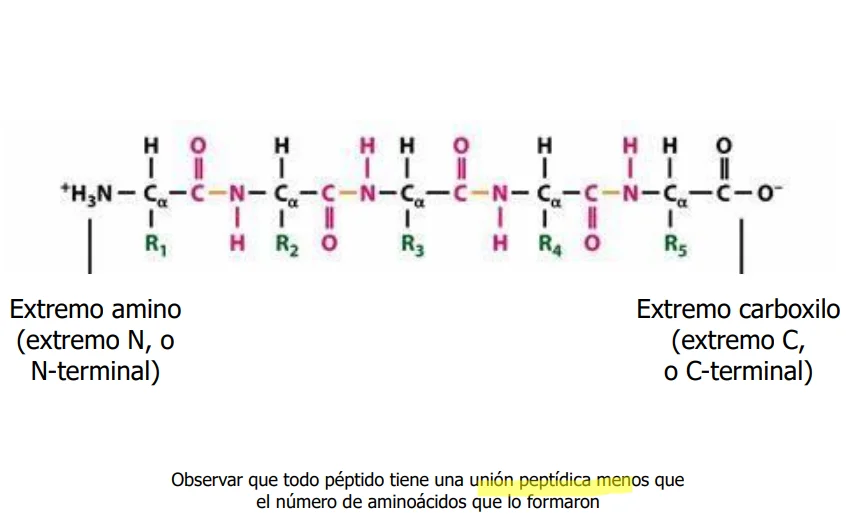
Al igual que en los ácidos nucleicos, se forma un esqueleto principal, y las diferentes cadenas laterales. 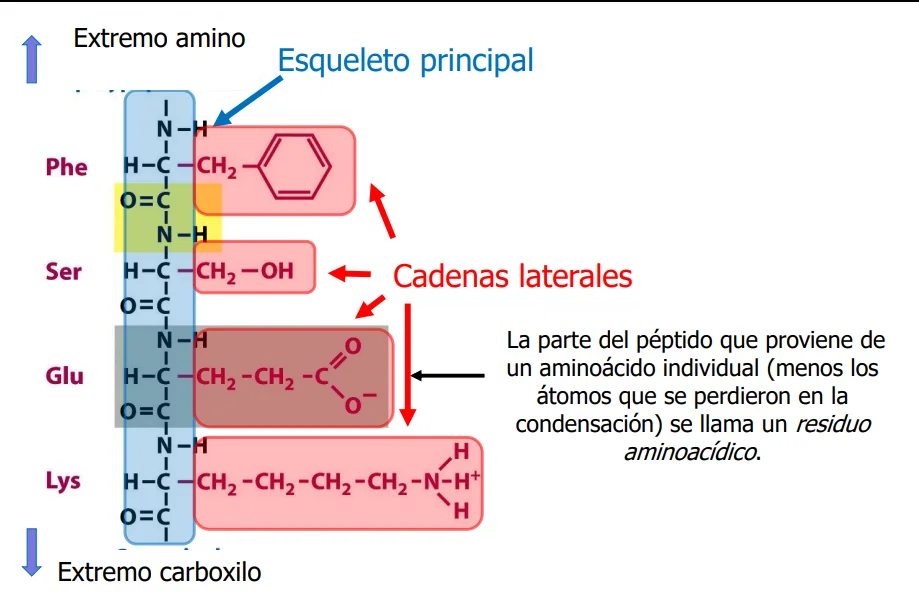
Por lo tanto, cada péptido se caracteriza por sus cadenas laterales, y se escribe de extremo amino a extremo carboxilo. La mayoría está entre 100 y 2000 residuos.
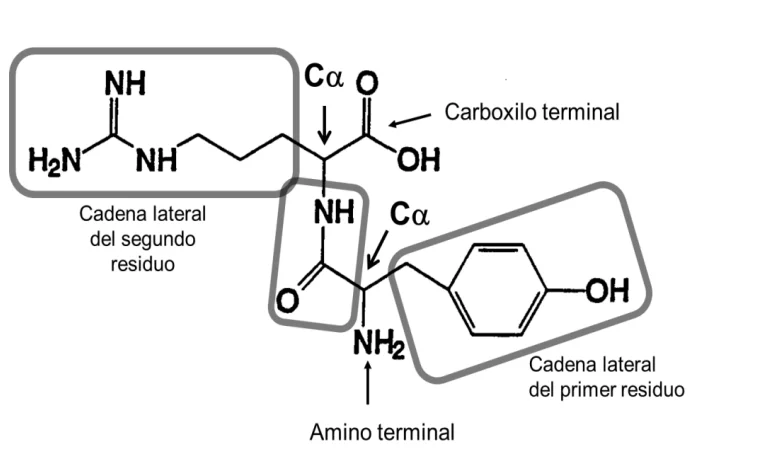
Cada secuencia de aminoácidos corresponde con una forma, y por lo tanto función, proteica.
Su conformación va a estar dada por el plegamiento de su esqueleto principal formado por enlaces covalentes simples.
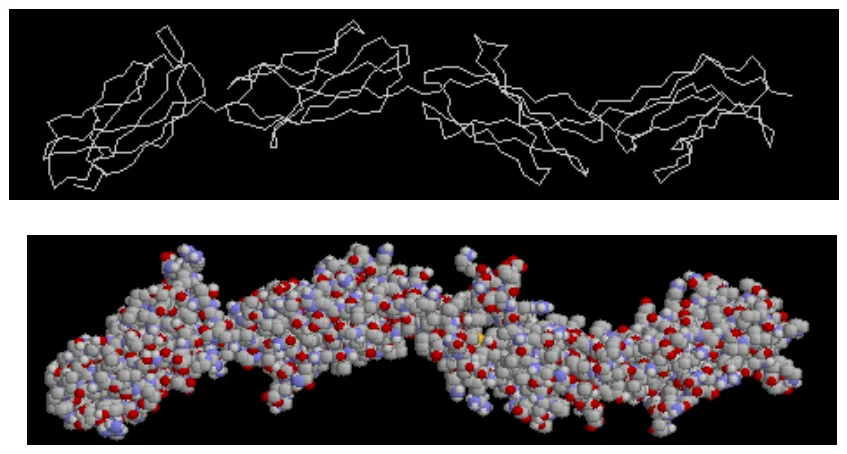
La evolución ha ido seleccionando las proteínas con una conformación más estable y definida.
Pero si las exponemos a cambios de ph, temperatura etc, podemos desnaturalizarlas haciéndolas perder su conformación nativa.
En su plegamiento buscan "esconder" las partes hidrofóbicas, y maximizar los enlaces de hidrógeno, atracciones iónicas de Vander Waals etc.
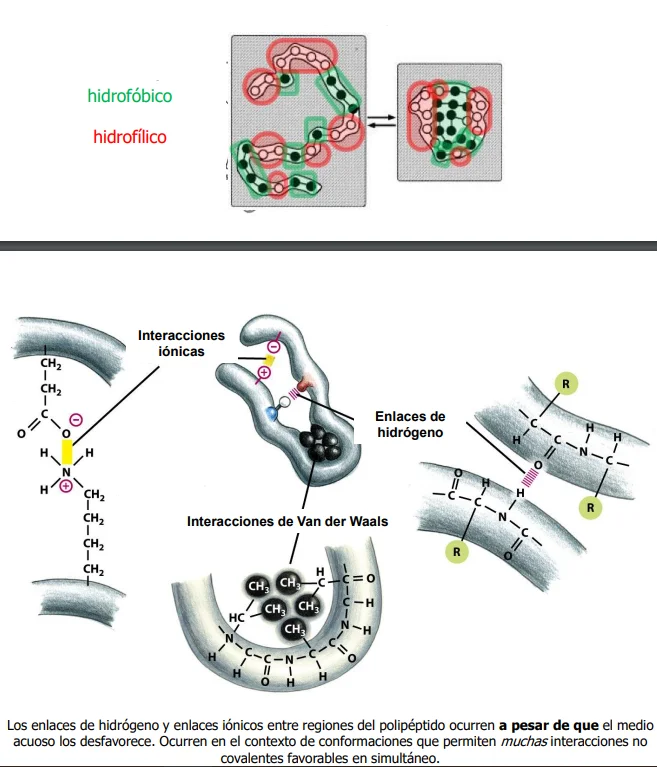
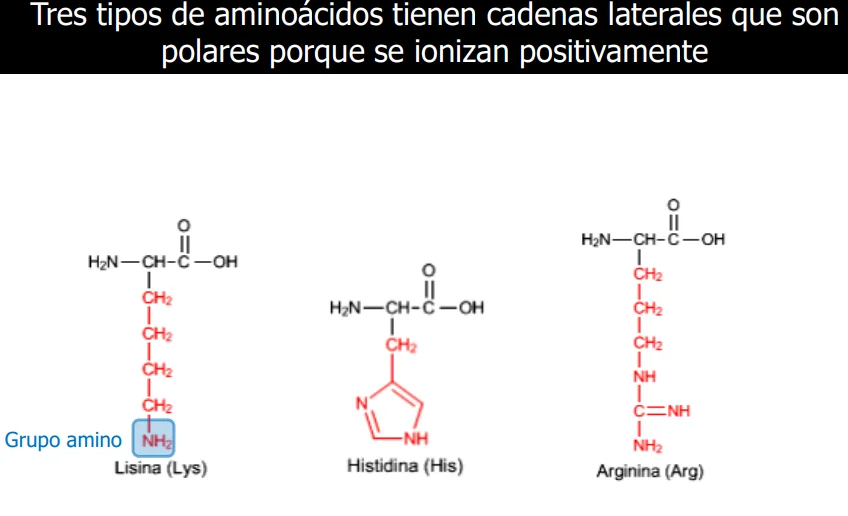
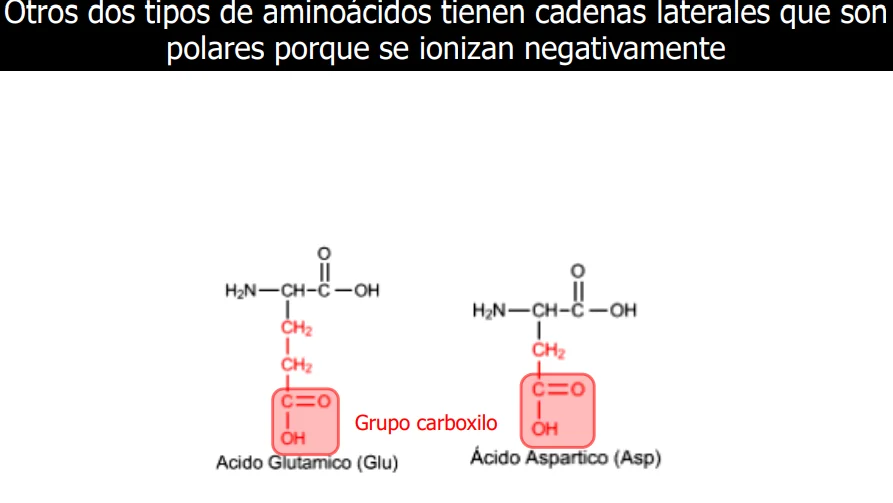
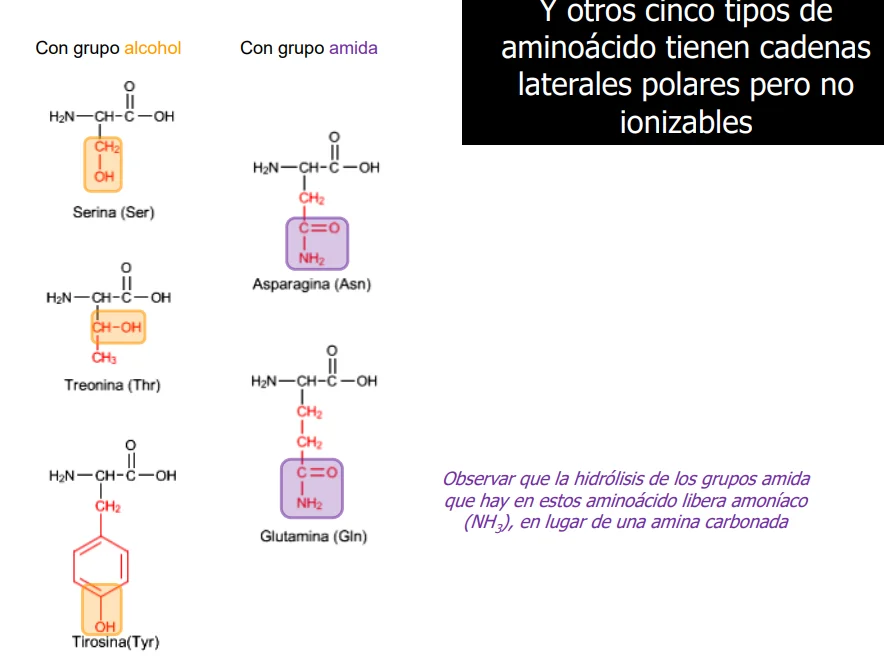
El resto son apolares.
Como los elementos capaces de formar enlaces de hidrógeno del esqueleto principal están siempre, independientemente de la secuencia, y son los que dan forma a las estructuras repetitivas entre diferentes proteínas.
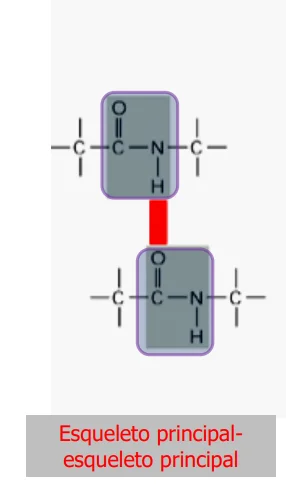
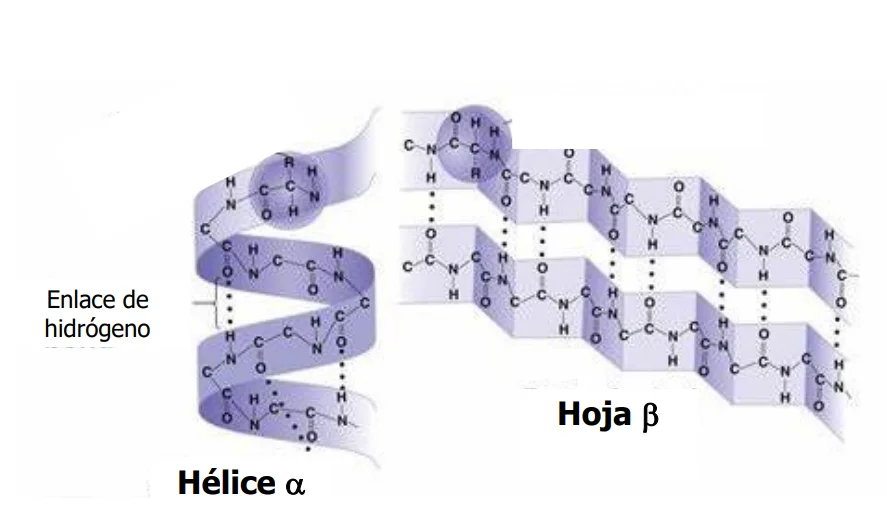
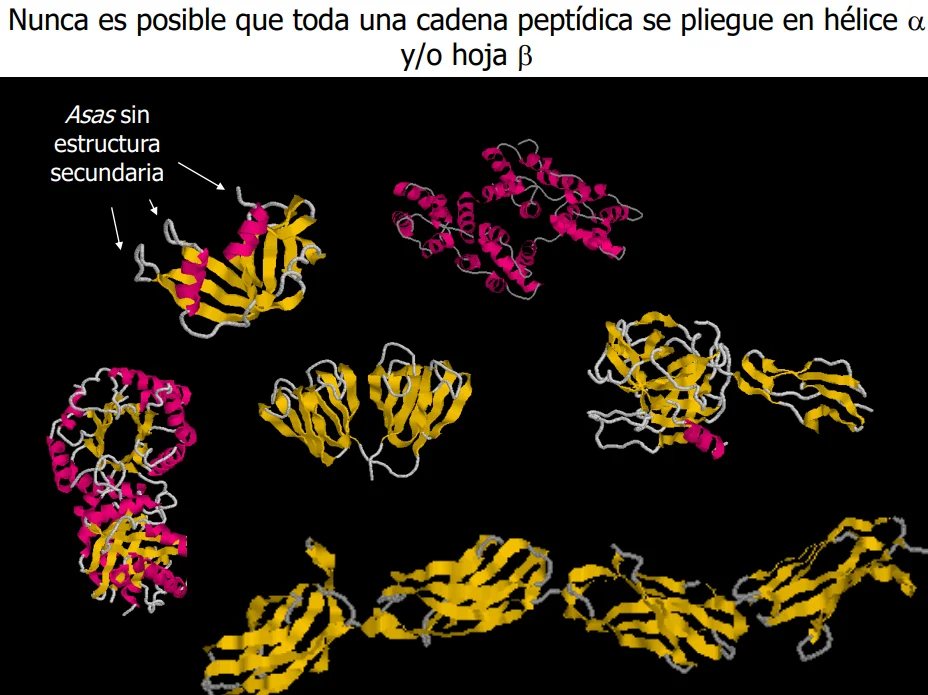
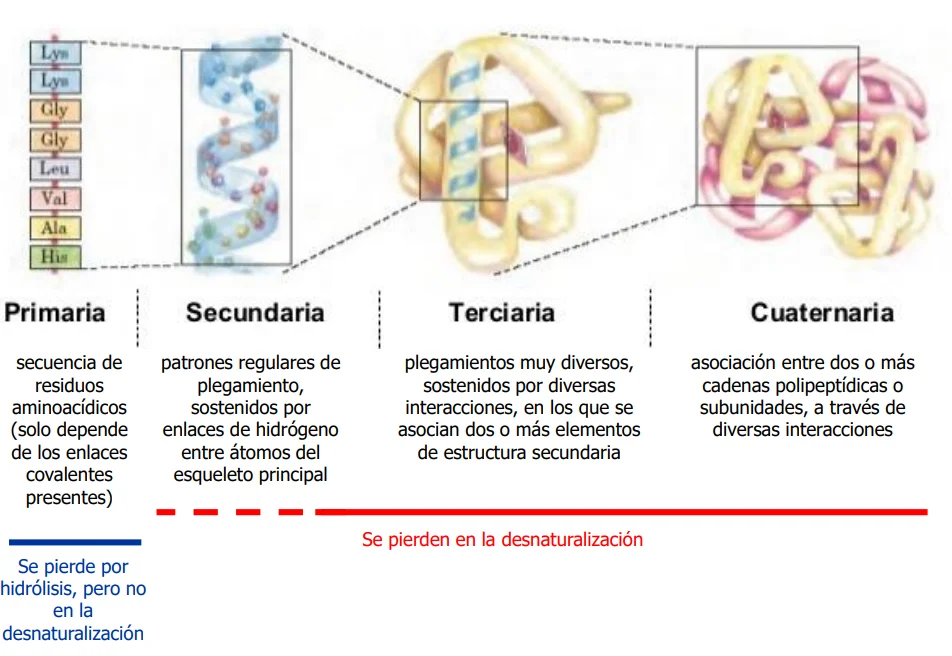
Al estudiar la proteína podemos "separar " su estructura en 3 niveles:
Primaria es la secuencia,
Secundaria es El plegamiento en Ha y Hb
Terciaria son las asociaciones entre Ha y Hb (Mediante todas las interacciones, y en todas las partes, no solo el esqueleto.)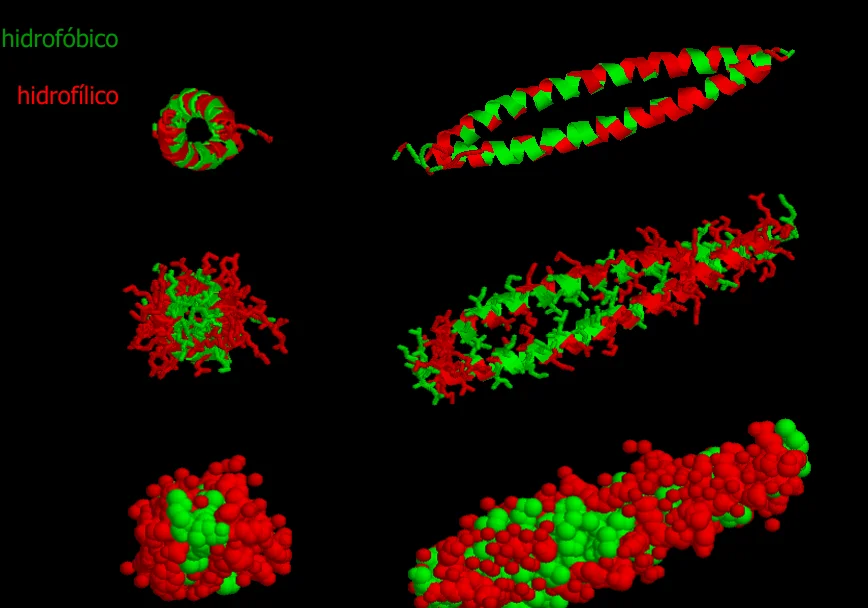
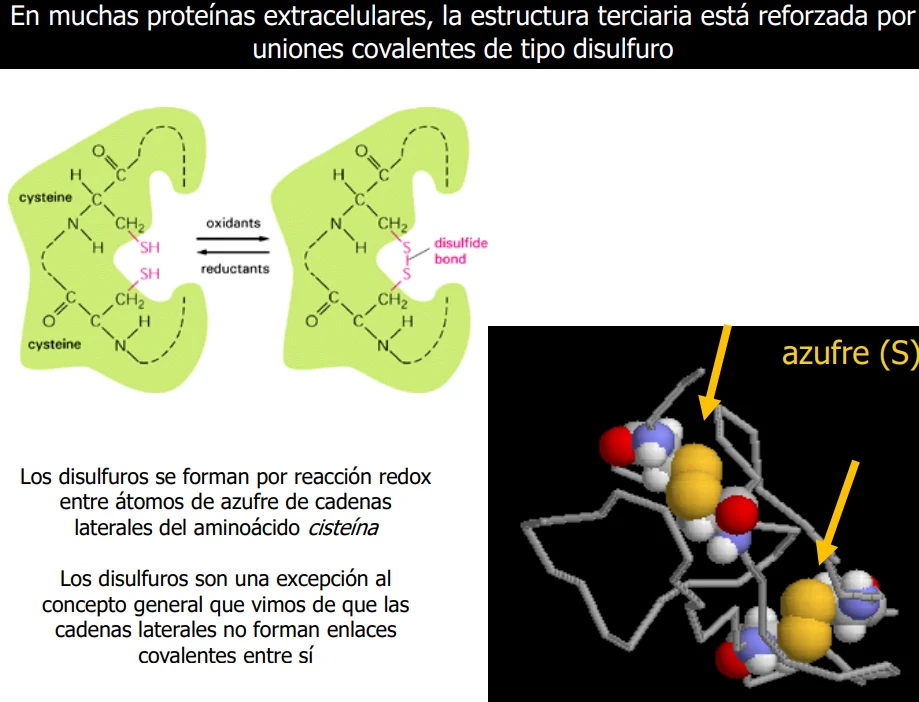
La estructura cuaternaria es la unión de varias "subunidades proteicas" mediante las mismas fuerzas que la terciaria)
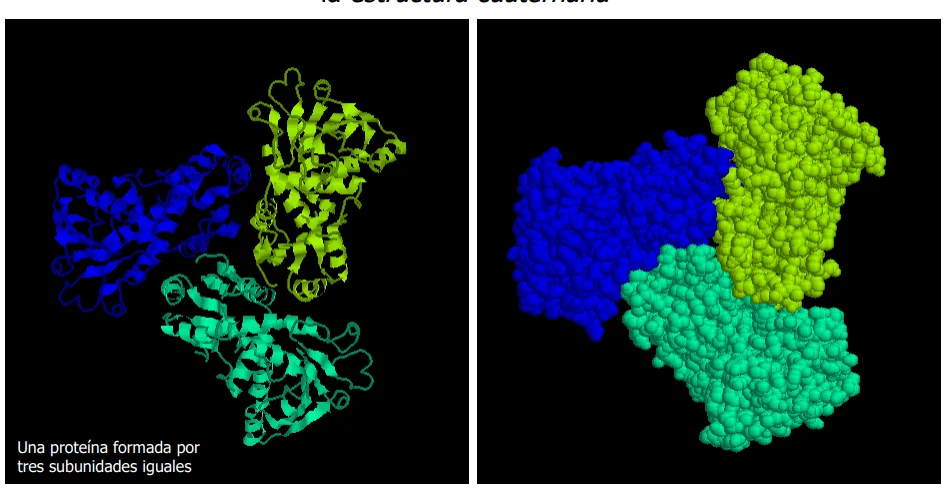
(pueden ser iguales o diferentes.)
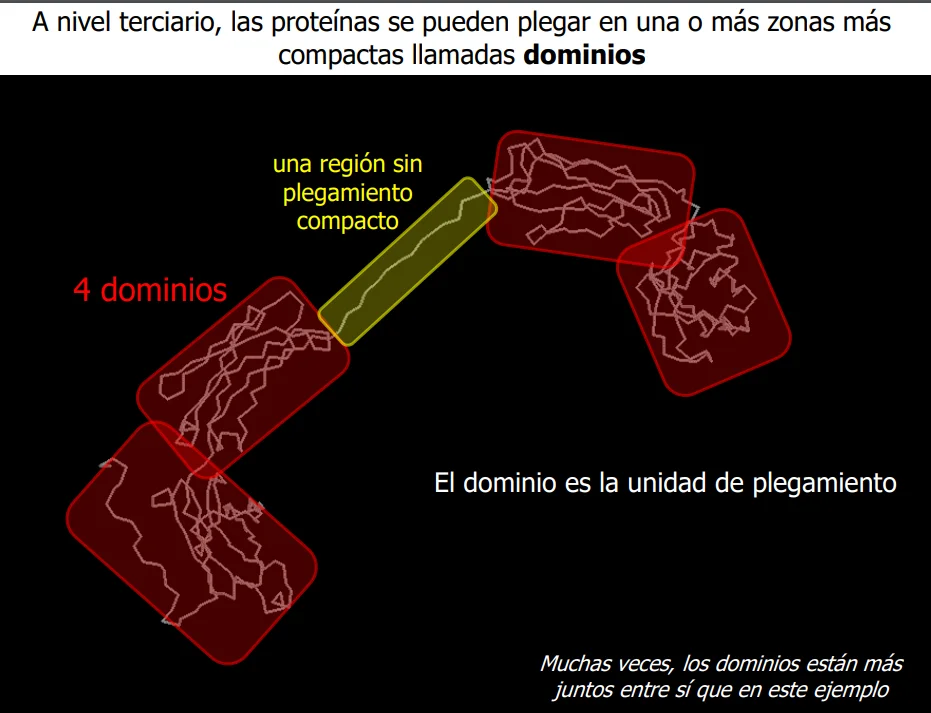
Las interacciones entre dominios son mucho menores que las intradominios.
Las partes sin plegamiento sirven como "bisagra".
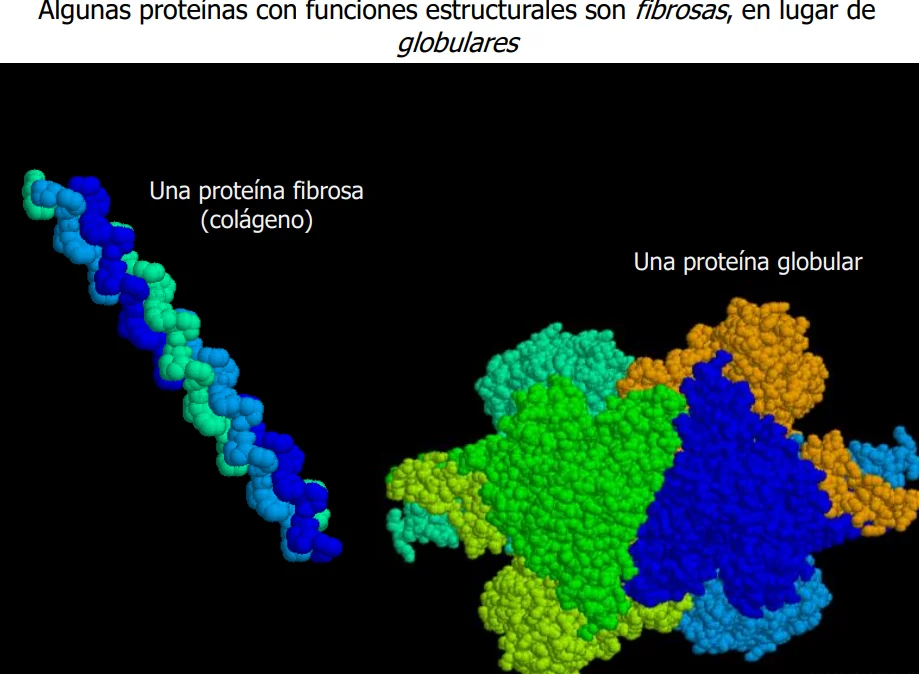
Además las proteínas pueden tener dominios fibrosos y dominios globulares.
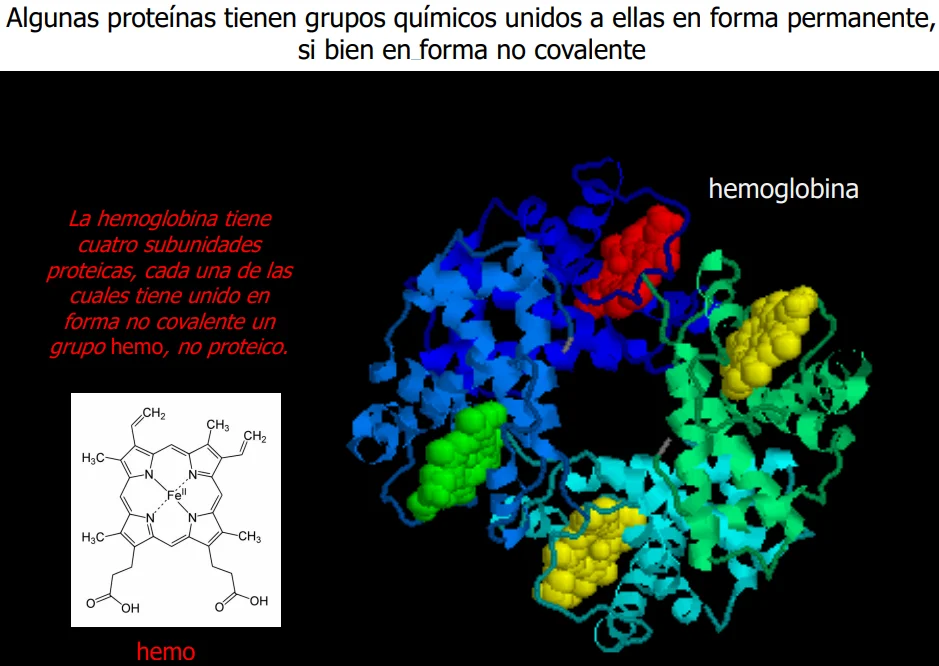
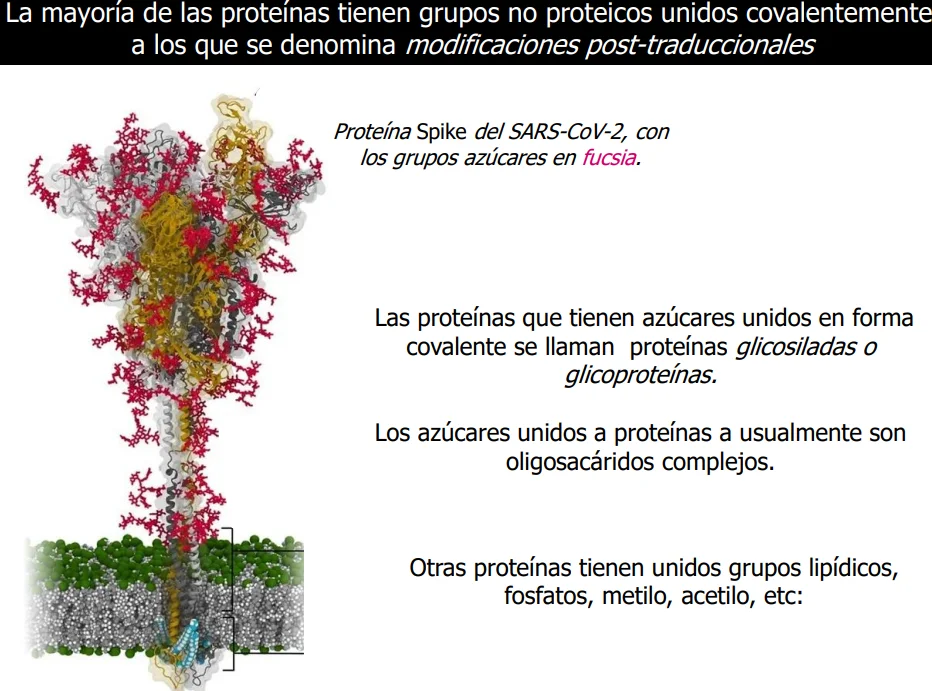
Las proteínas que tienen grupos no proteicos unidos covalentemente, decimos que tienen modificaciones post-traduccionales.
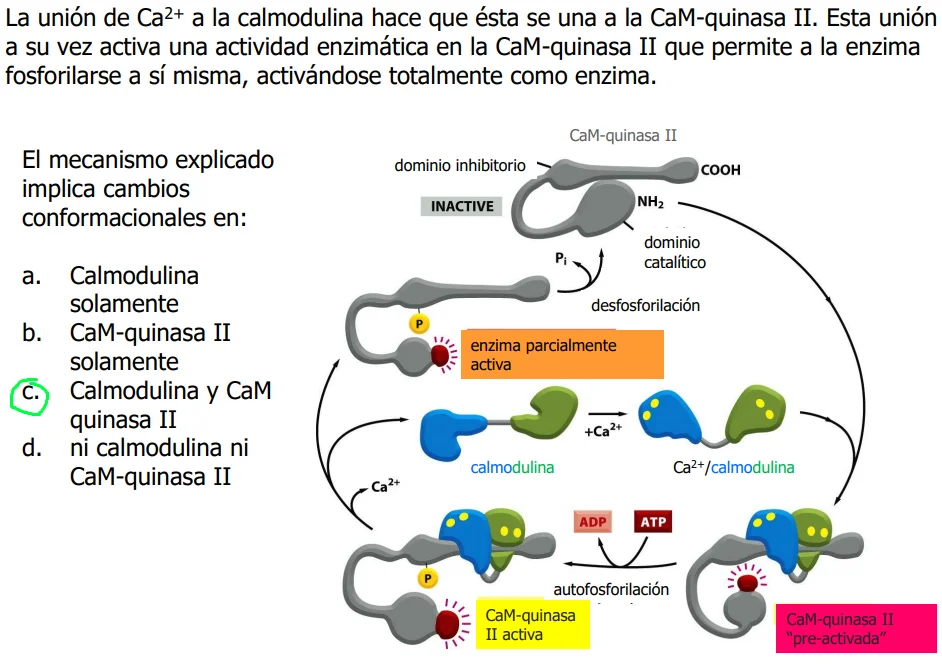
Cambios conformacionales.
La mayoría de las proteínas son capaces de hacerlos, según diferentes factores, ejemplo: recibir luz, o asociarse en algún sitio específico.
Estos cambios llevan también a cambios de función.
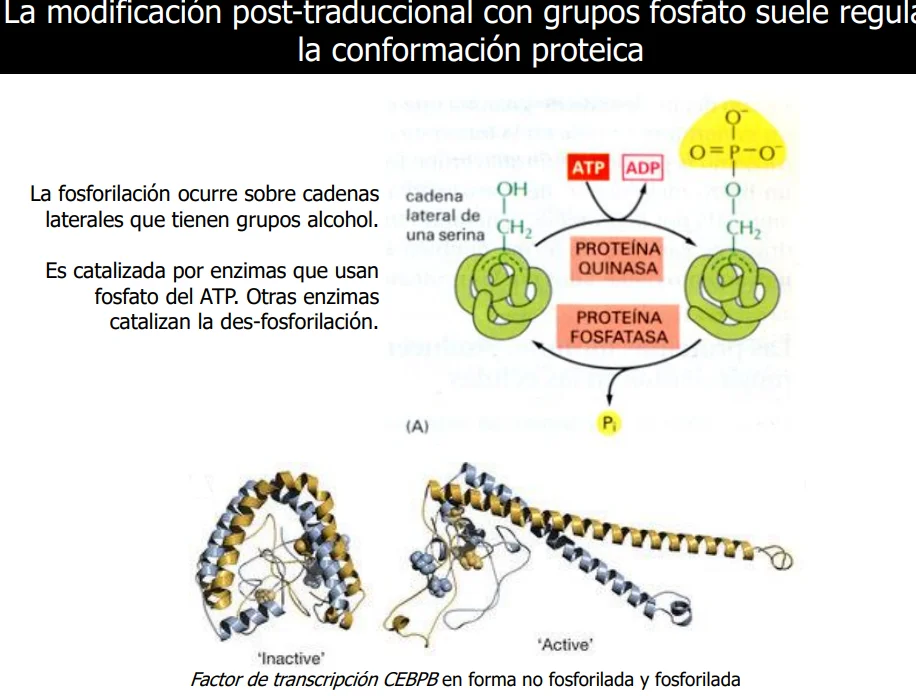
La modificación Post traduccional con fosfatos suele regular la conformación proteica.
FUNCIONAMIENTO DE LAS PROTEINAS
Cumplen sus funciones gracias a la especificidad de sus uniones con otras moléculas.
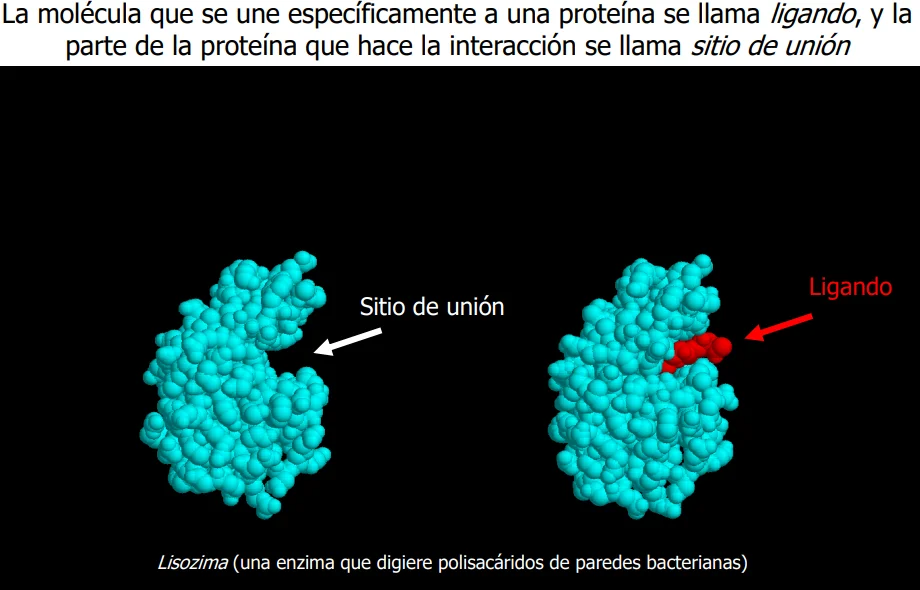
La especificidad se basa en la formación de múltiples interacciones no covalentes simultaneas.
Estas interacciones tanto con cadenas laterales como con el esqueleto, y con todos los tipos de interacción no covalente.
Entre el sitio de unión y el ligando específico hay complementariedad de forma y propiedades químicas: esto hace posible la formación de numerosas interacciones no covalentes simultáneas. Esto no es posible si en lugar del ligando hay otra molécula. Tampoco es posible si la proteína está desnaturalizada.
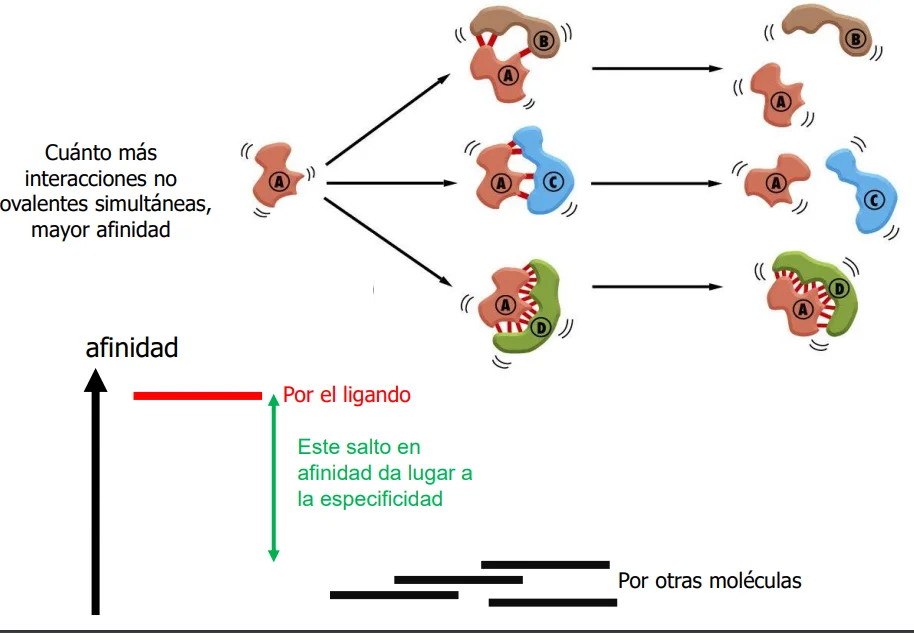
En muchos casos el ligando de una proteína es otra proteína.
Hay 4 TIPOS DE UNIÓN PROTEÍNA-LIGANDO
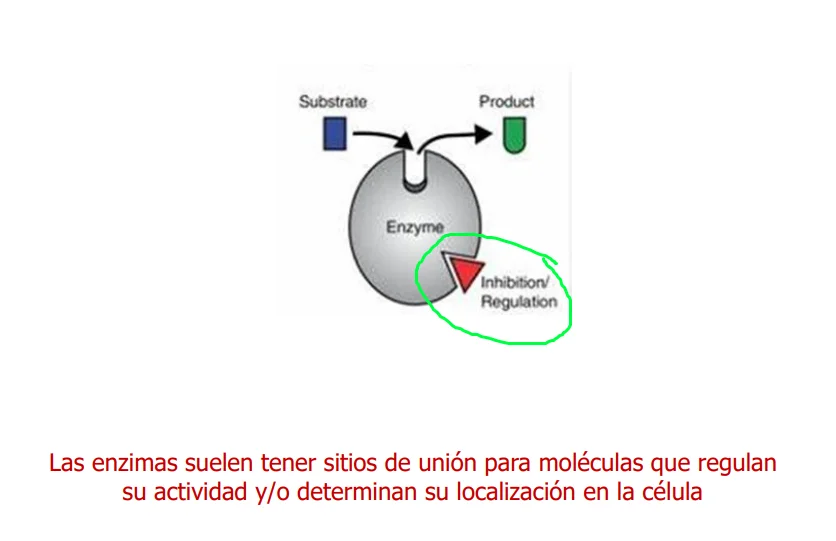
Catálisis enzimática (Modificación del Ligando,(en este caso llamado sustrato), resultando en un producto.) 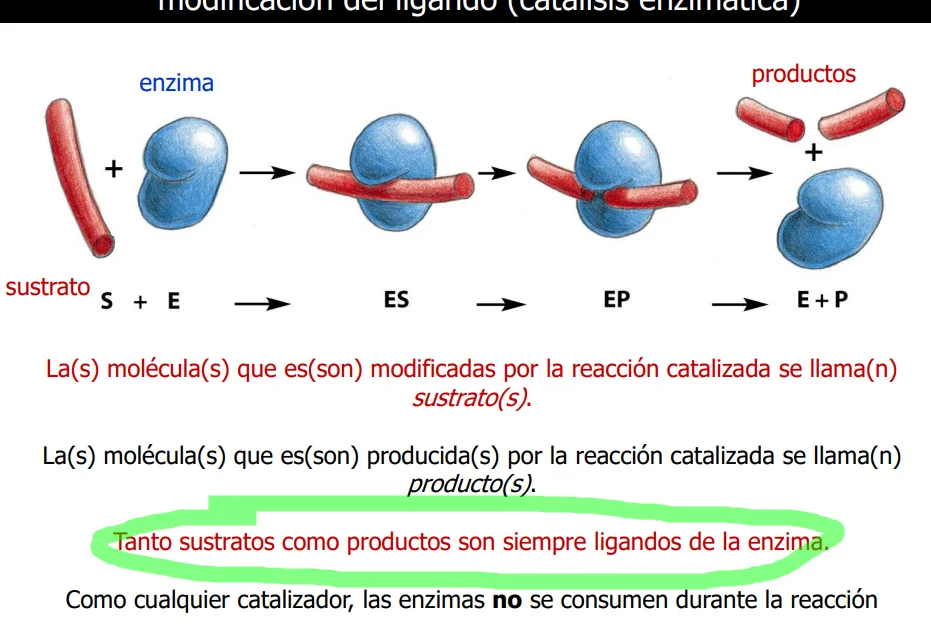
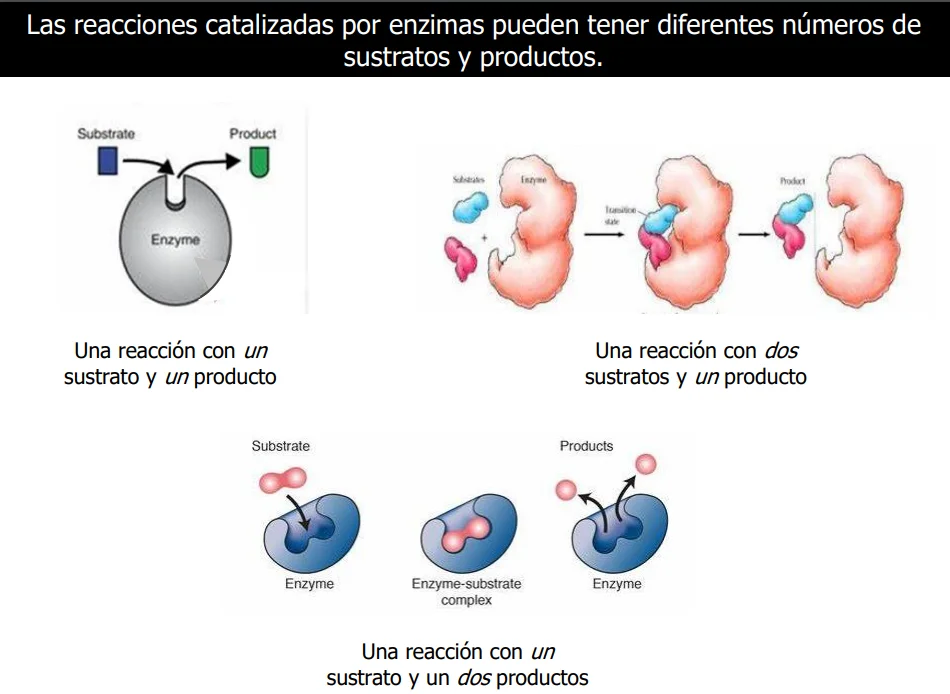 El sitio de la enzima se llama sitio activo
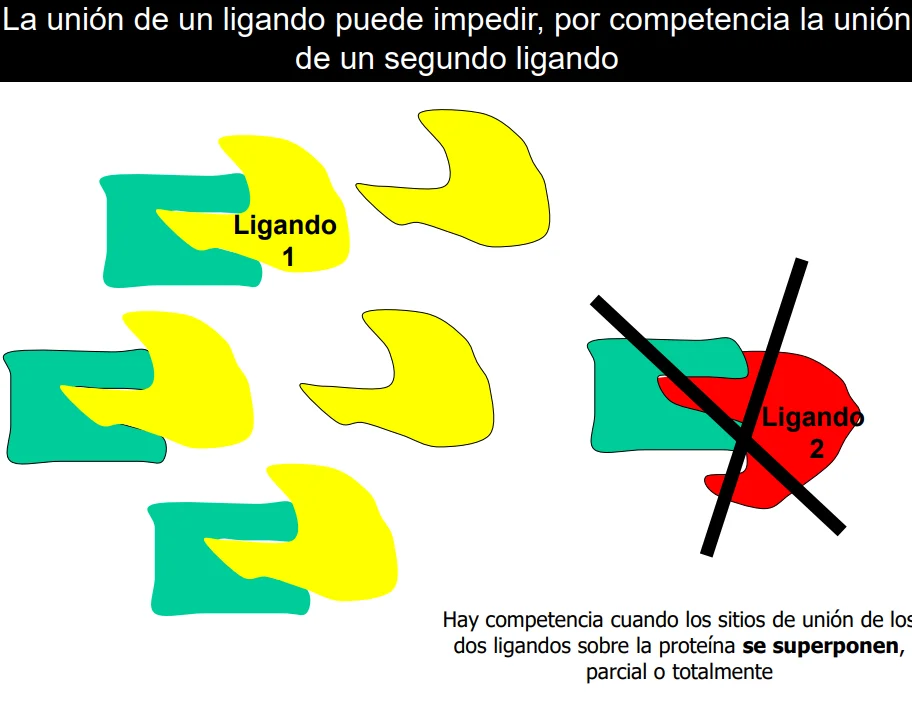
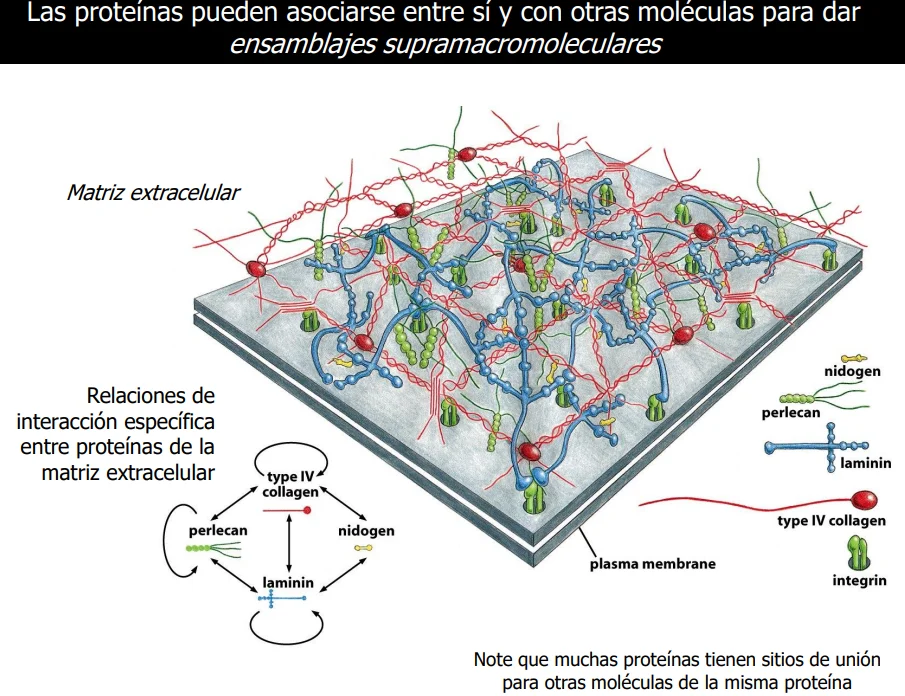
Otro tipo es el CAMBIO DE LOCALIZACIÓN.
Proteínas quedan "pegadas" al ligando. También pueden asociarse entre si para fijar su localización en redes de ensamblaje supramoleculares.
Otro tipo es el CAMBIO de CONFORMACIÓN
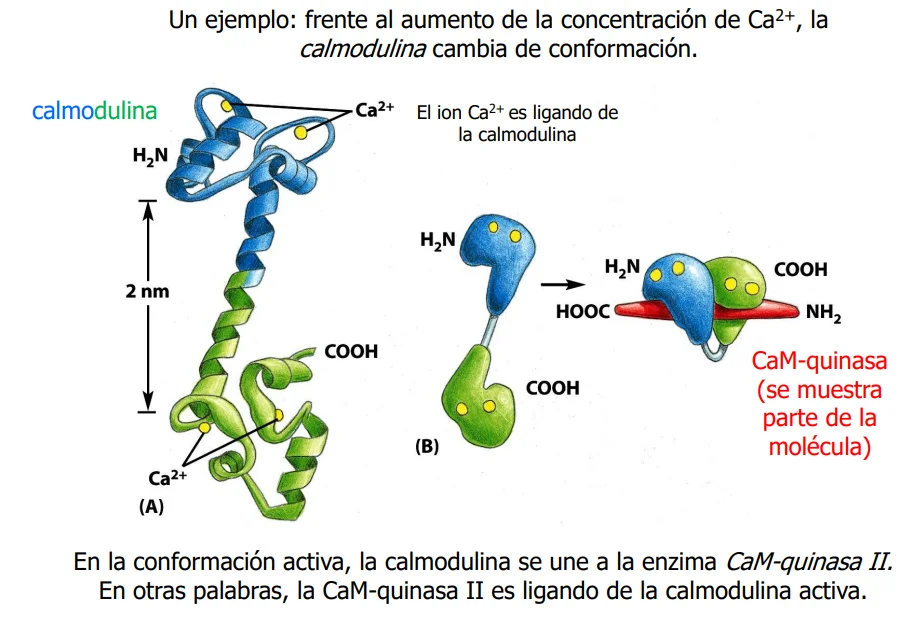
Puede llevar a ciclos enzimáticos.
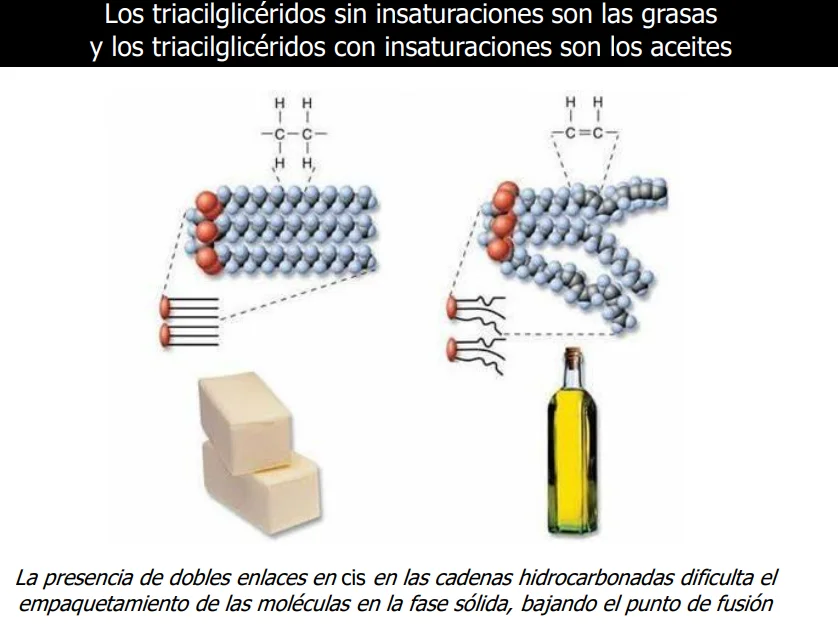
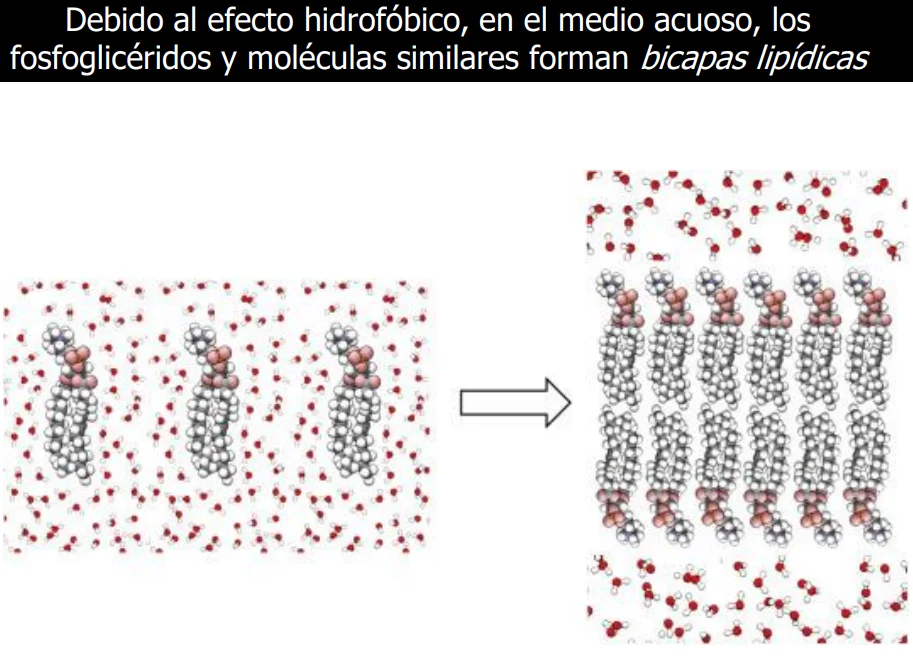
Son las moléculas que son enteramente, o casi enteramente Hidrofóbicas. 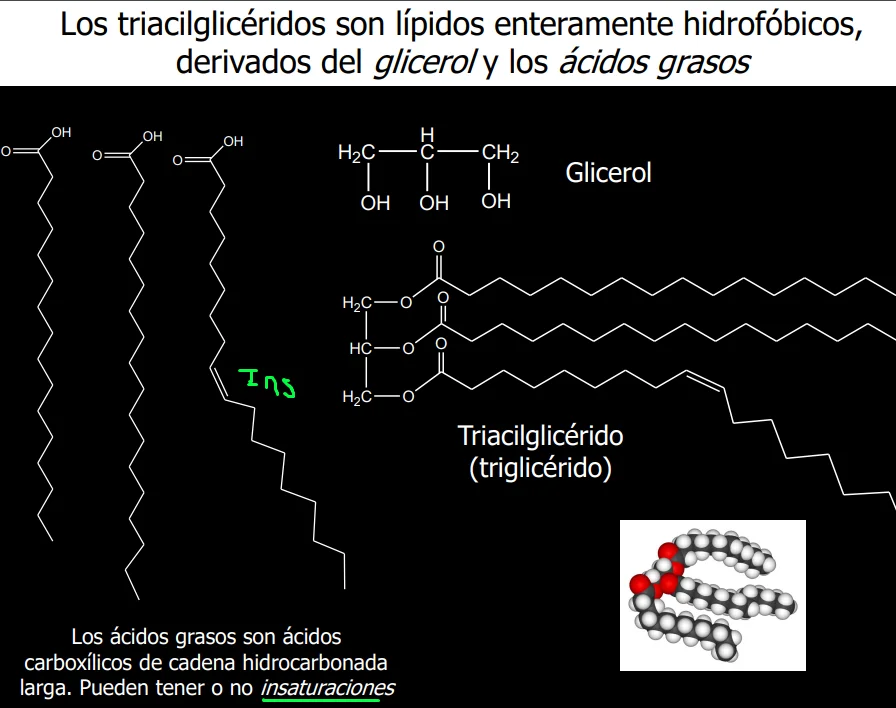
Los Triacilglicéridos forman gota lipídicas en medio acuoso.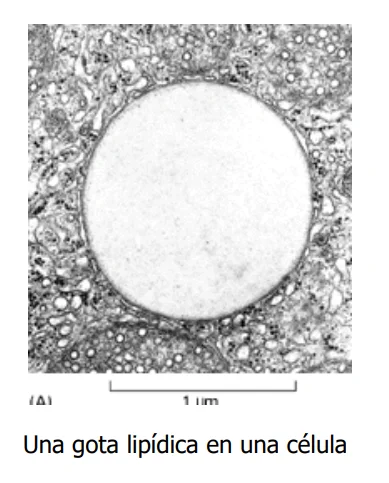
Los fosfoglicéridos son como los triacilglicéridos, pero una de sus "patas" está esterificada con un fosfato, y este unido a una cabeza polar.
Los anfipáticos de una sola cola hidrofóbica forman Micelas 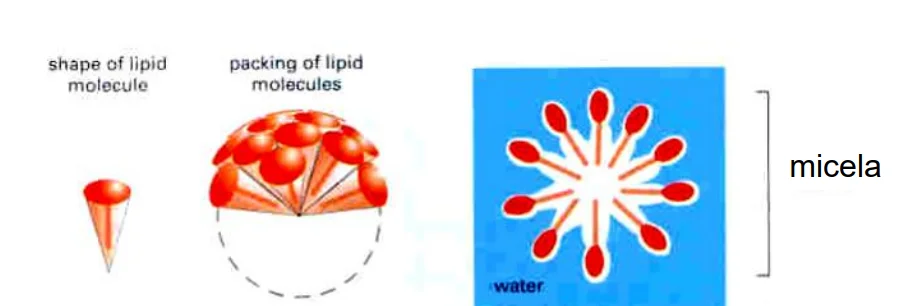
Las Bicapas lipídicas tienden a cerrarse sobre si mismas, separando dos espacios de agua.
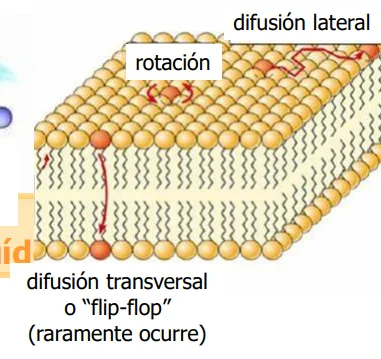
Los fosfolípidos en una capa lipídica pueden moverse y rotar, pero solo en la capa en la que se encuentran. Por su capacidad de movimiento las membranas no son rígidas.
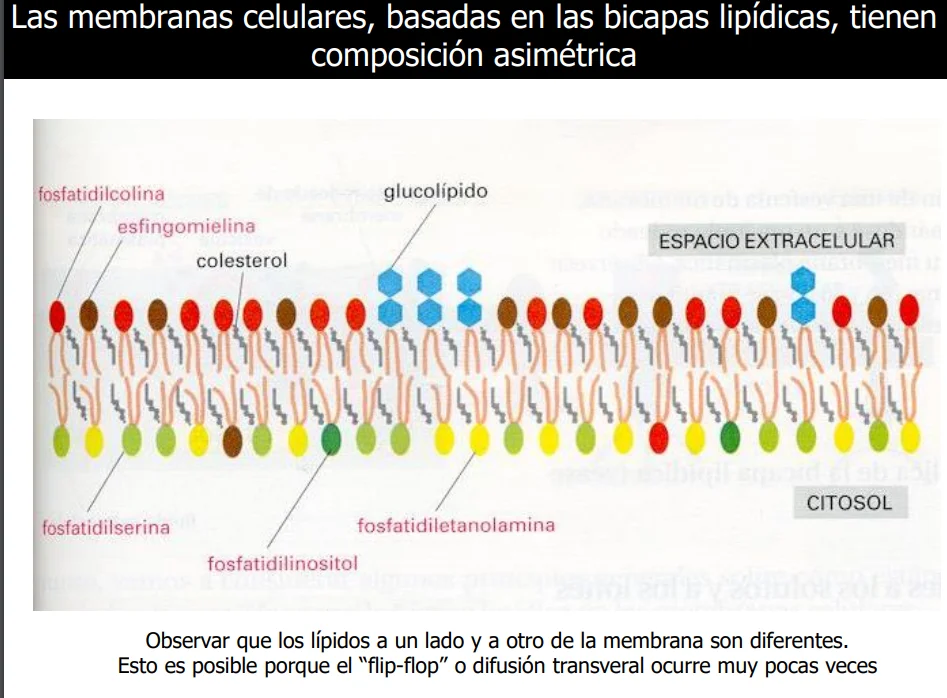
Las membranas celulares, además de fosfolípidos tienen proteínas de varios tipos, las que son transmembranas exponen una superficie hidrofóbica. Aunque no todas las proteínas asociadas a la membrana son transmembrana.
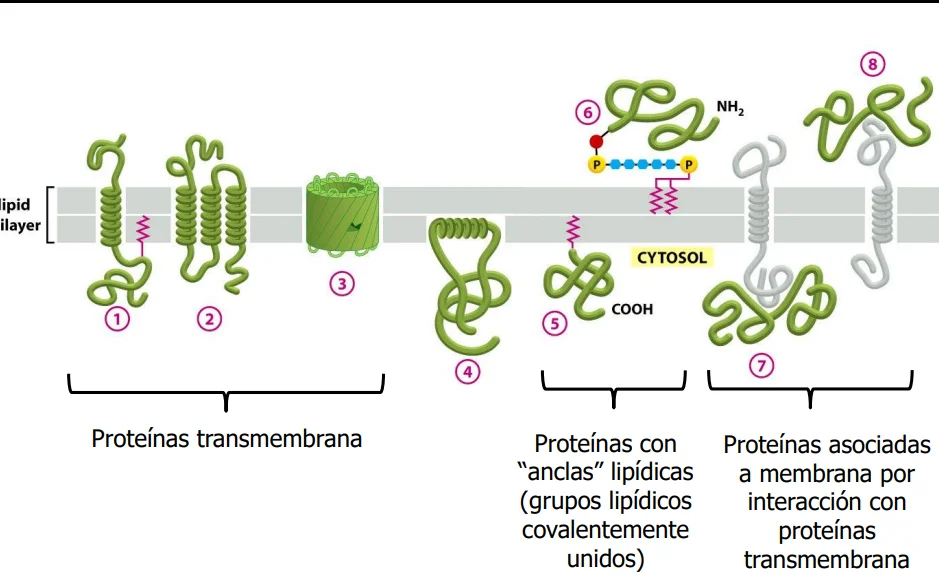
Son estas proteínas las que le otorgan muchas de sus funciones a la membrana.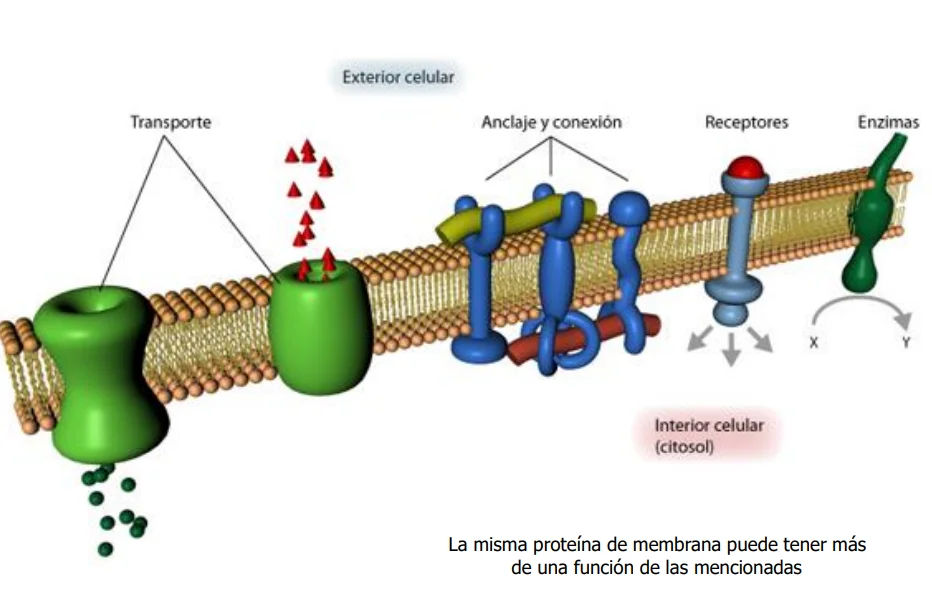
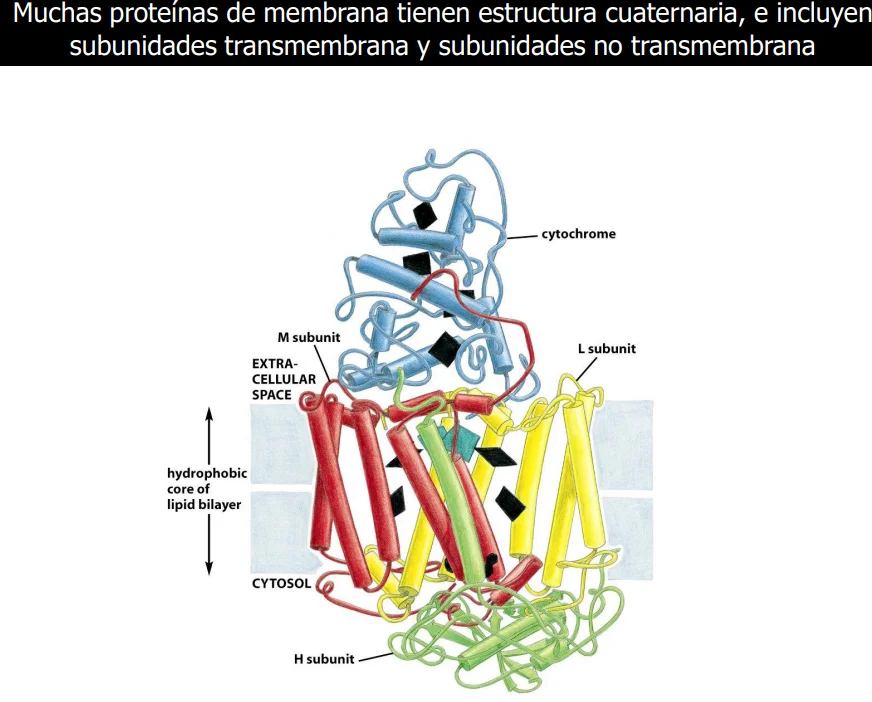
Muchas de ellas además tienen estructura cuaternaria, y tienen partes transmembrana y no transmembrana, con diferentes funciones.
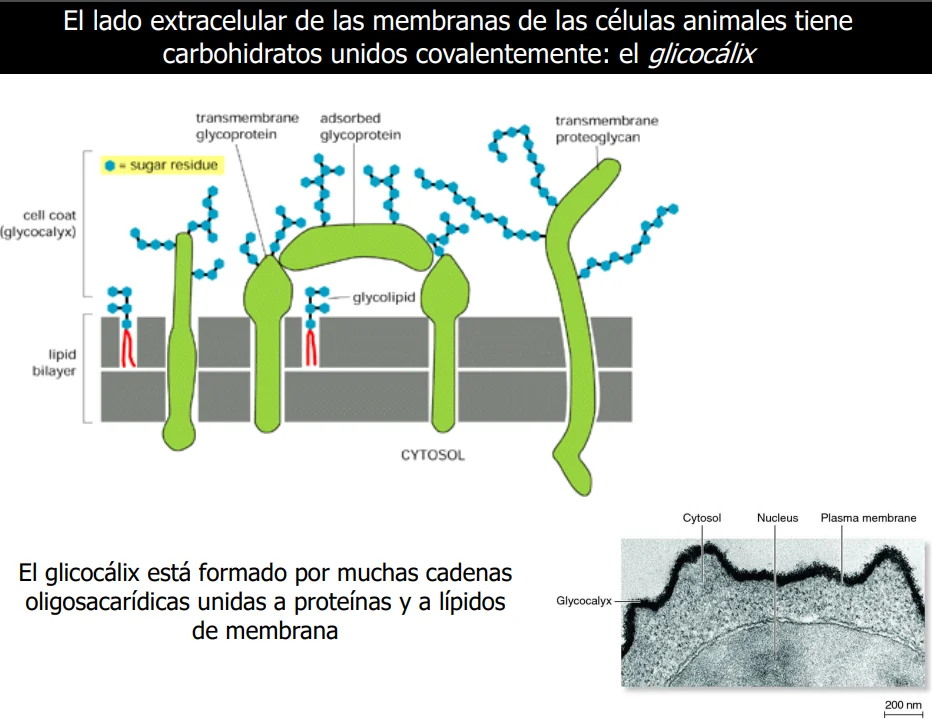
El lado extracelular de las membranas tiene carbohidratos unidos covalentemente, el glicocálix, "como pelitos útiles para el reconocimiento de células."
Generalmente las proteínas tienen cierto movimiento por la capa, pero está limitado por la interacción con otras proteínas.
El FLUJO DE LA Materia y la Energía
La Energía no se crea ni se destruye, es conservativa. (Se convierte de una forma a otra.)
Siempre fluye hacia lo más "Disperso" o con Mayor Entropía. Y los procesos tienden a un equilibrio en su estado con mínima energía potencial.
Todas las formas de vida requieren energía para mantenerse y reproducirse. La obtienen mediante transformaciones químicas. Las células se pueden ver como un complejo sistema que transforma materia y energía para crear y mantener un orden.
Las reacciones del Metabolismo están encadenadas como "líneas de producción"
Si bien muchas reacciones diferentes ocurren cada segundo en un espacio microscópico, no todas las reacciones del metabolismo ocurren al mismo tiempo. El metabolismo está integrado y regulado.
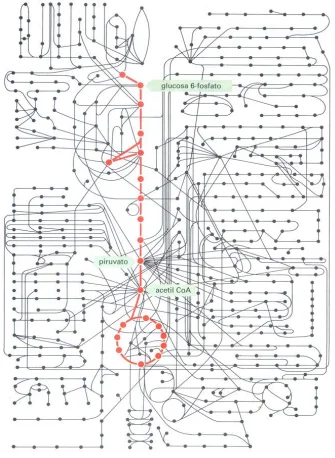
Es importante entender cuando una reacción es energéticamente favorable y cuándo ocurre a una velocidad apreciable, esto es lo que gobierna cuáles pasan y cuales no.
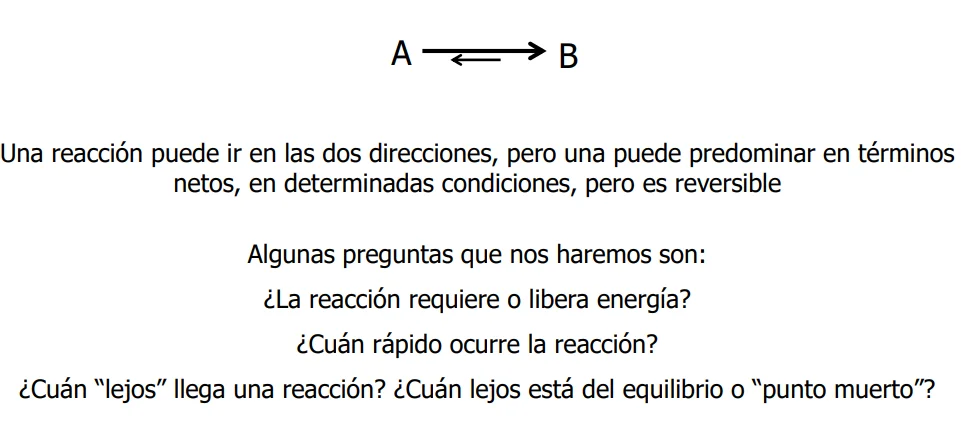
Las moléculas tienen Cierta Energía Potencial en sus Enlaces Químicos y cinética debido a sus movimientos.
Parte de esta energía puede ser usada en transformaciones químicas. Esta energía se llama energía libre (G) y la que no puede ser usada es llamadaEntropía.
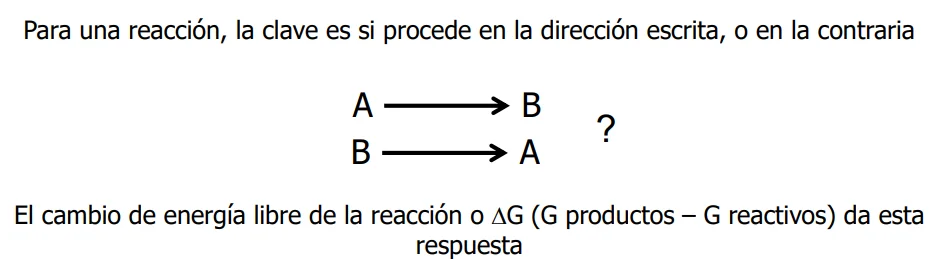
Si el delta G es negativo (Los productos tienen menor energía) la reacción procede en la dirección escrita y libera energía.
Si es positivo la reacción procede en la dirección inversa a la escrita, (O requiere energía para ir en ese sentido).
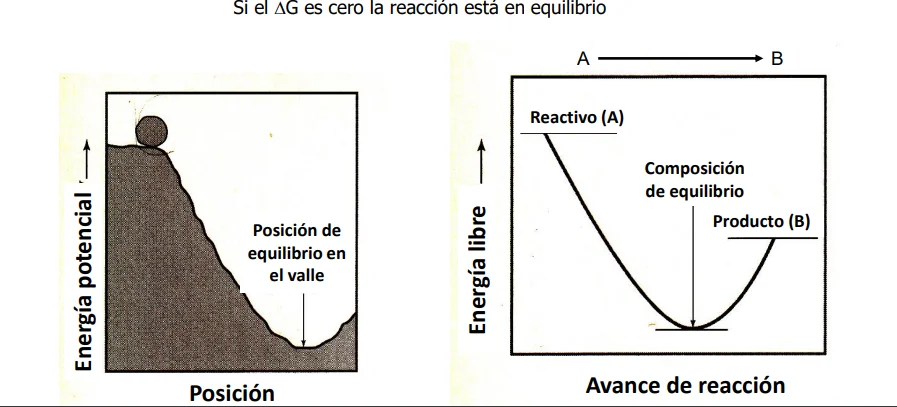
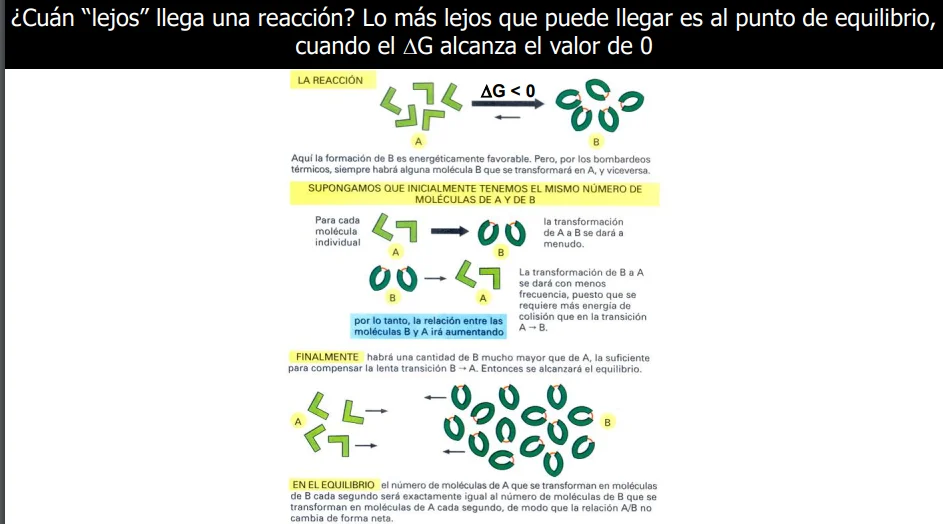
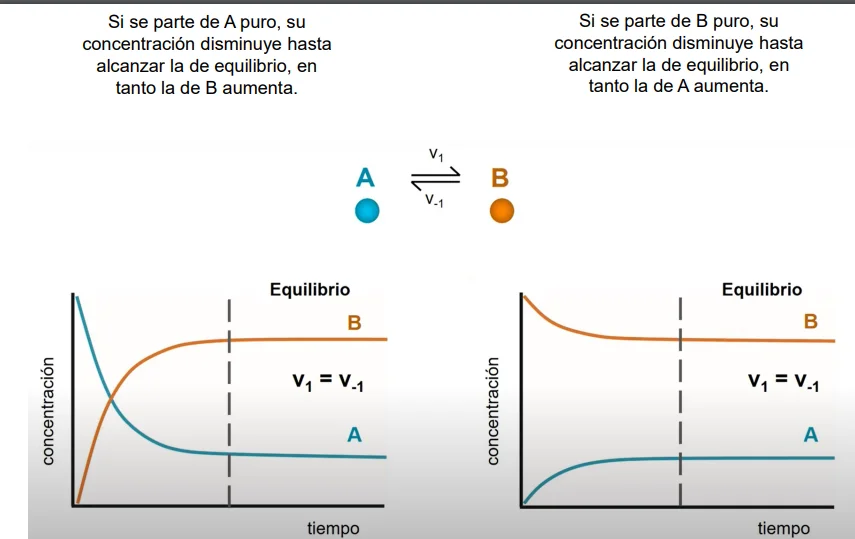
En el equilibrio se alcanza una relación entre productos y reactivos llamada Constante de Equilibrio.
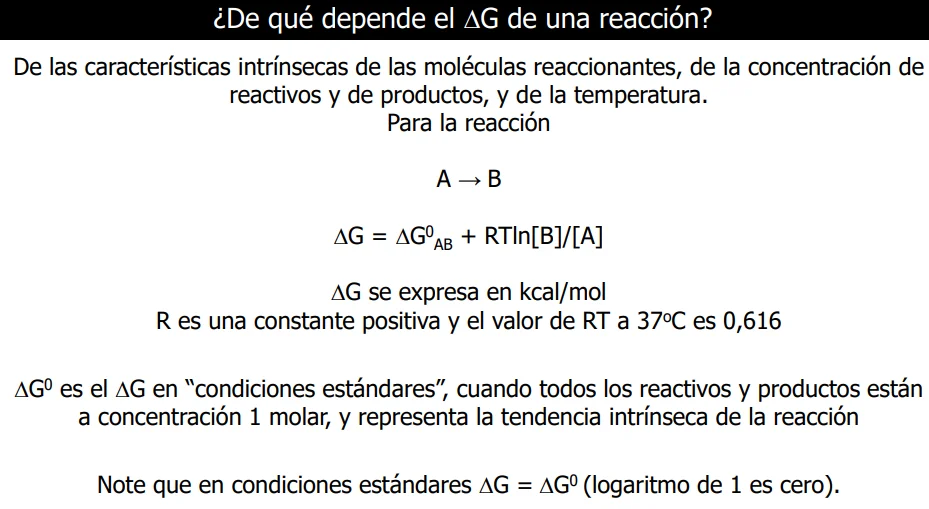
Entonces. 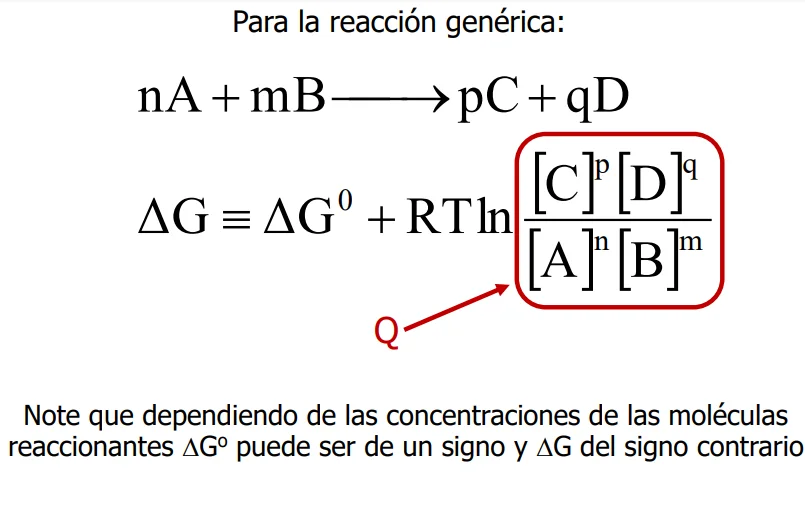
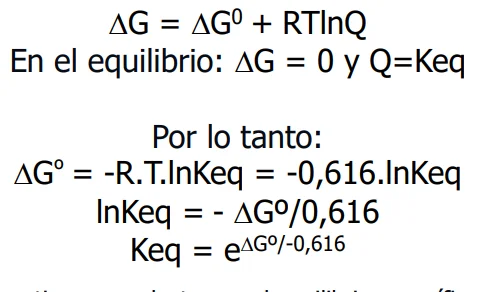
Si Delta G Menor a 0, Keq Mayor a 1. (si es favorable, va a haber más productos.)
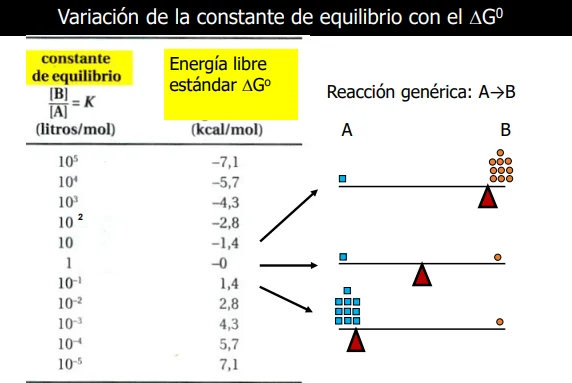
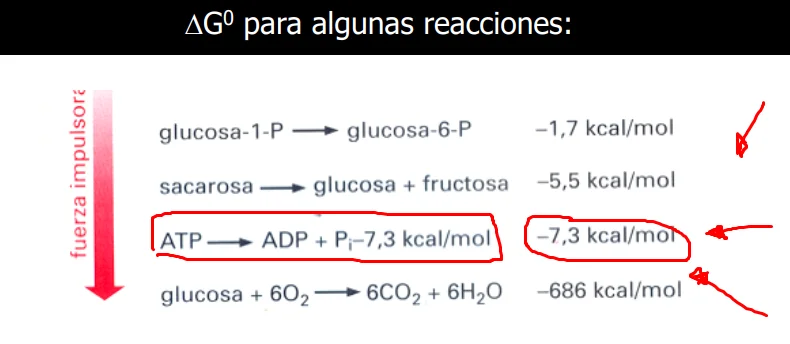
En las reacciones secuenciales el delta G es aditivo.
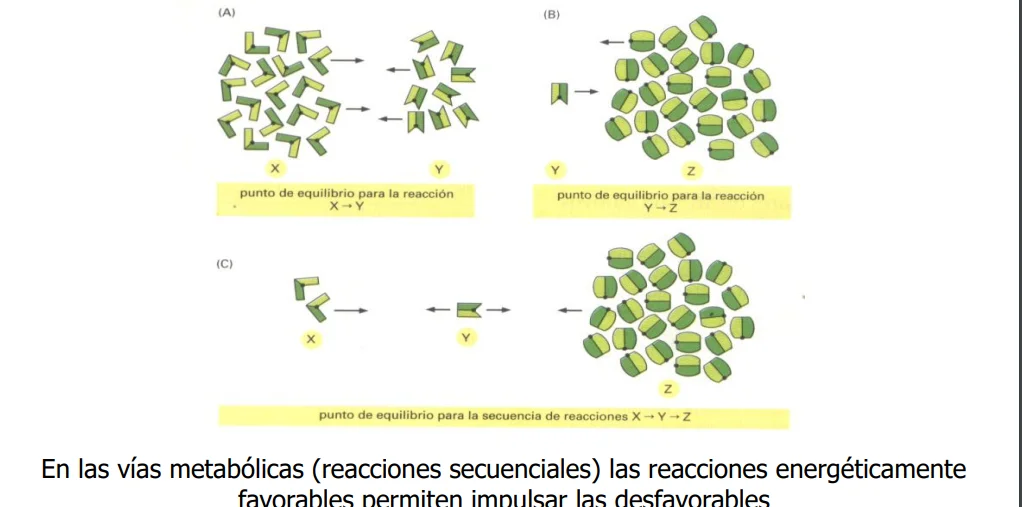
"Los pocos Y que surjan de la desfavorable a partir de x van a ser rápidamente transformados en z, lo que va a hacer que se vea beneficiado el cambio de x a Y "
También puede ocurrir un acoplamiento mediante medios físicos de las reacciones.
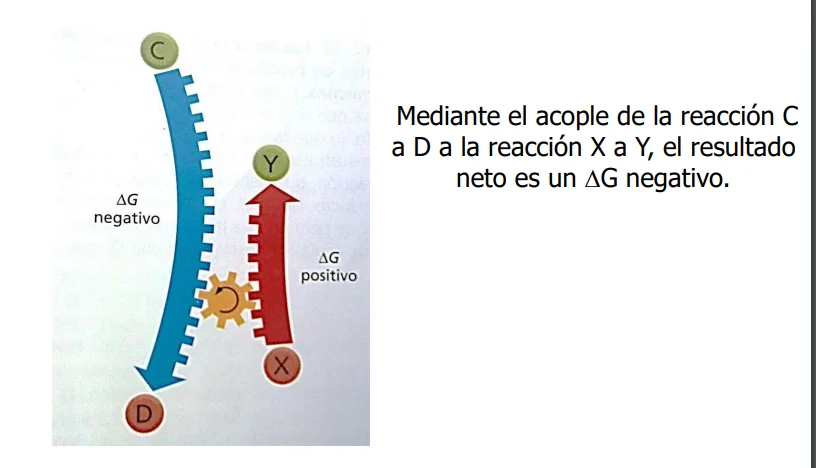
Las que permiten el acople son las enzimas, que generalmente mediante hidrólisis de ATP catalizan el resto de reacciones.
En las células las moléculas que almacenan la energía de los alimentos es justamente el ATP en sus enlaces químicos. La Inter conversión ADP-ATP es fundamental en la mayoría de seres vivos.